
序言
在时间的洪流中,化石是沉默的证人,诉说着过往生命的辉煌与哀愁。1699年,威尔士的海滩上,一块鱼龙的残片首次见天日,随后的1708年,另一块脊椎的遗迹再次显现。那时的人们对自然的认知尚浅,将这些奇异的发现视为大洪水的遗留。直到1811年,玛丽·安宁在英国的侏罗纪海岸揭开了鱼龙的秘密。
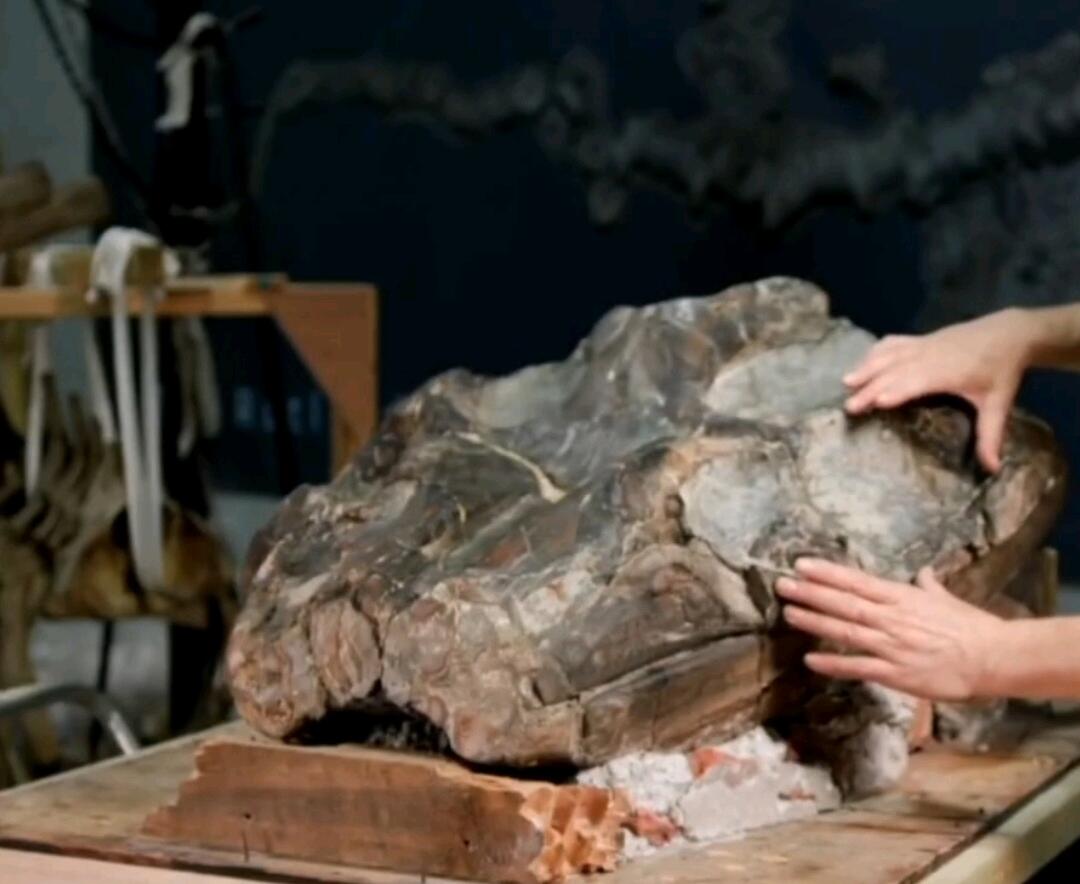
此后她相继发现了三具其他鱼龙的化石。
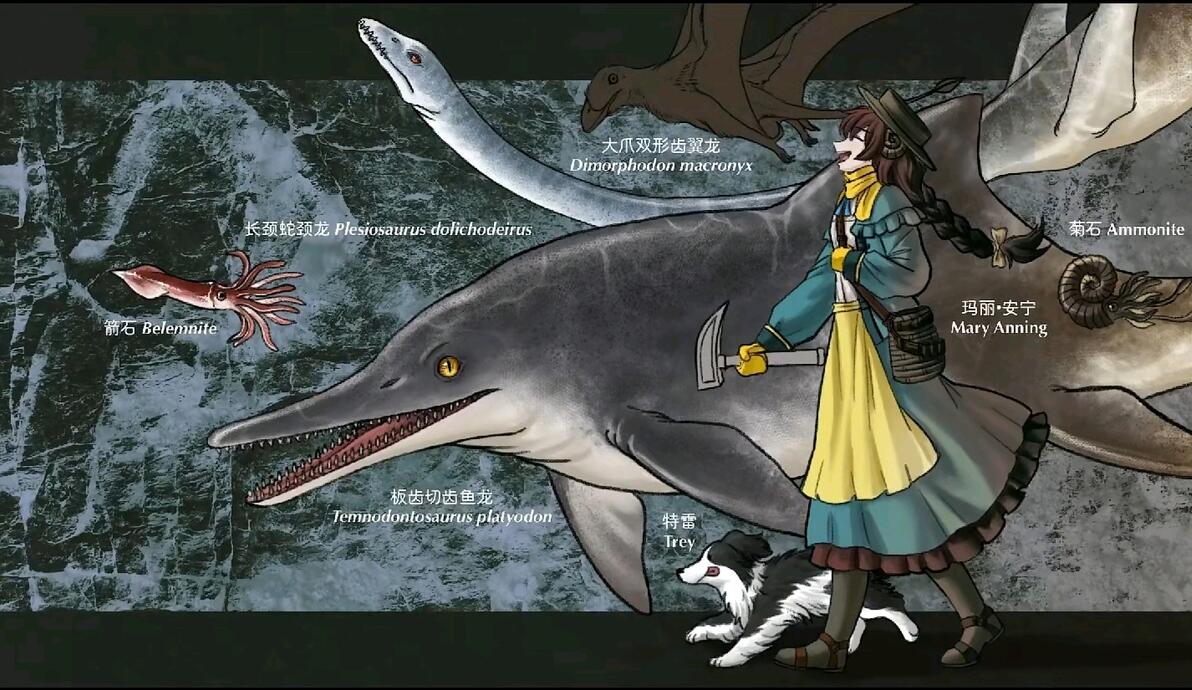
玛丽·安宁的发现是生物会灭绝的关键证据。在她的时代,人们广泛认为生物是不会灭绝的。任何古怪的发现都被认为是地球上尚未被人类发现的生物所造成的。玛丽·安宁发现的奇异化石对于这种论调是沉重的打击,也让人类真正理解地质时代早期的真实情况,为古生物后续的研究打开了新的大门……而这具头骨化石的主人也有了一个脍炙人口的名字——切齿鱼龙(Temnodontosaurus)
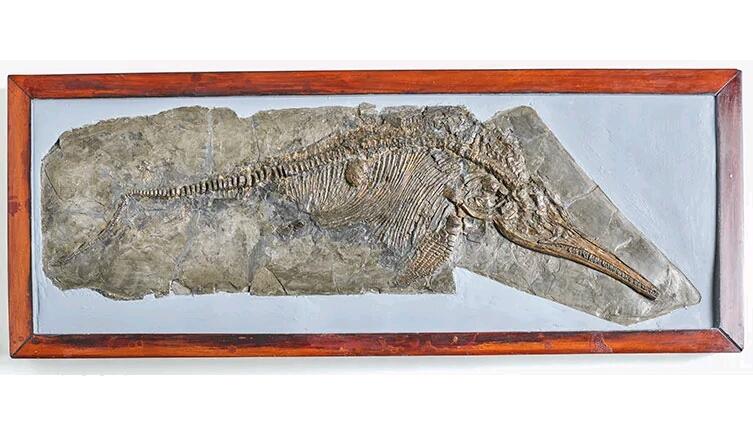
然而,鱼龙化石的研究并不是一帆风顺的,世界上第一具完整的鱼龙化石早在1819年就进入了人类的视线。当时,化石的公布者Everard Home将其命名为“海神鱼龙”("Proteosaurus")。这使得人们对鱼龙的外形第一次有了大概的认识。1854年 由雕塑家本杰明 沃特豪斯霍金斯所做的众多古生物雕塑在第一次世界博览会中展出。尽管以现在的眼光来看,他们的复原错误百出。但是这些古怪的生物足矣引起当时人们的好奇,并在诸多维多利时期的绘画中出现。
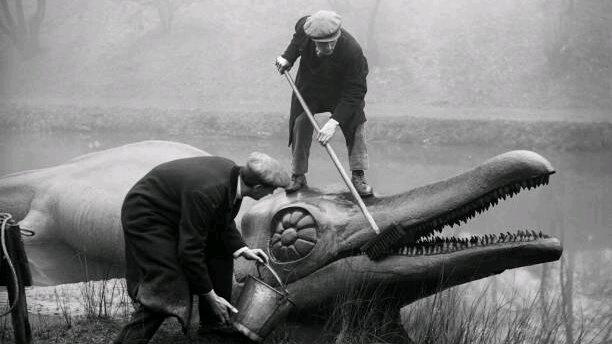
然而,同棘龙正模一样,海神鱼龙的原化石在第二次世界大战中被损毁,但幸运的是:科学家发现两件海神鱼龙铸模标本被分别贮藏在两个不同的博物馆里。这使得科学家可以重新对它进行描述。
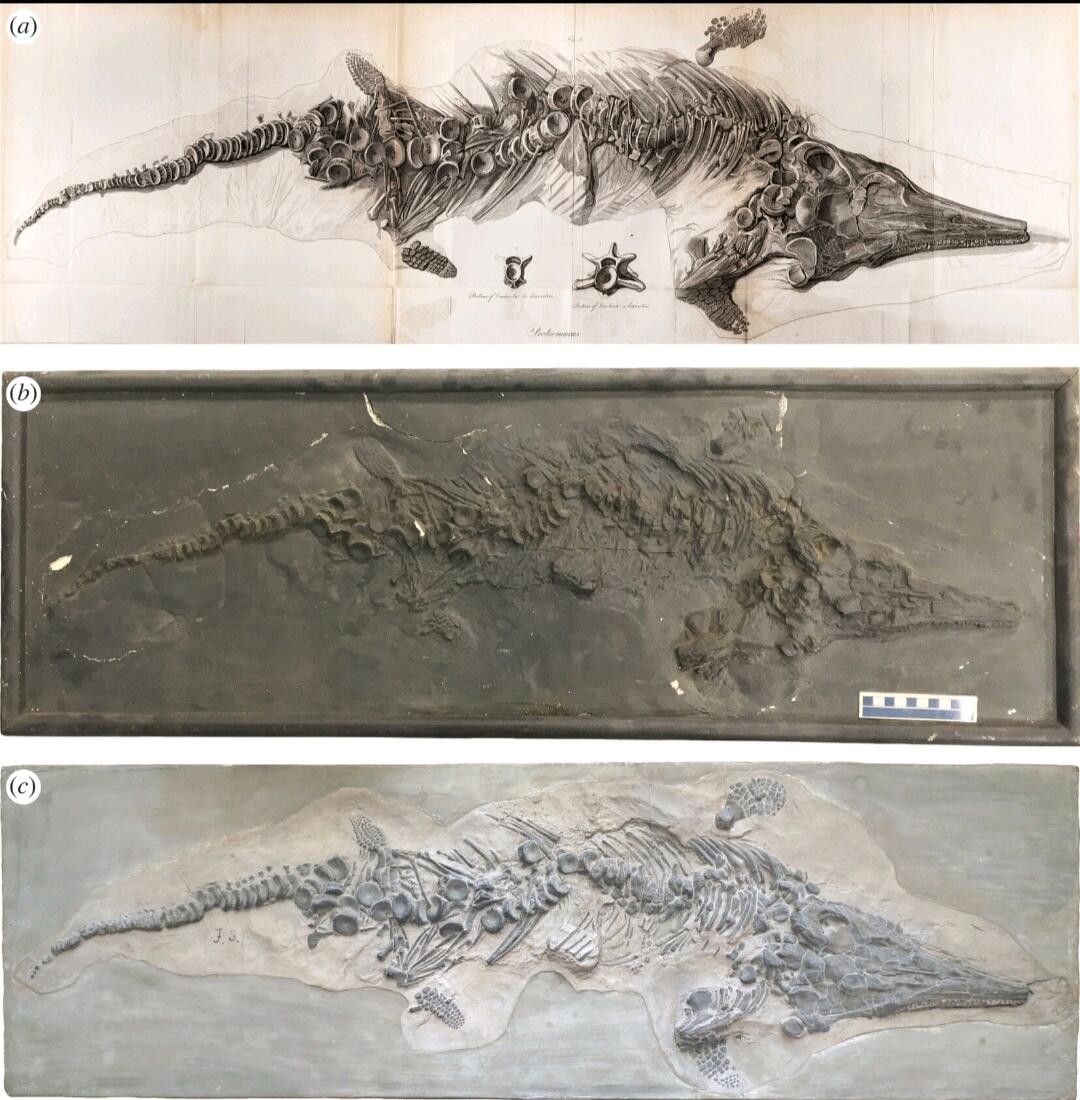
两件铸模的标本长度存在些微的长度差异,平均长度为90厘米(从吻尖到尾尖)。尽管两件铸模都没有准确地反应出化石的原始保存状态,但其左肱骨的形状、右前肢鳍指骨的数目和后鳍近端趾骨的分叉状态都十分类似于鱼龙属(Ichthyosaurus)。然而,由于铸模没有保留任何可用的头骨和颅后特征,所以只能将其归为鱼龙属未定种而不能归为任何一个已知种。尽管化石不尽破碎,但他们都阐述了一个事实:鱼龙,这一尘封于古老地层中的生灵,曾在蔚蓝深海之中自由翱翔。
灼热序始
你是否听说过这样的地狱,炽热的地幔柱如同从伤口撕裂般的从地表喷涌而出,将近大半个俄罗斯的面积都被炽热的岩浆所吞没,黑色的烟雾笼罩整个大气层,随之伴随而来的缺氧与酸雨,肆意的破坏着整个生态系统,95%的物种都陨落于此,这便是著名的“二叠纪末大灭绝”。
而有一种观点认为鱼龙的祖先开始就要面临这地狱般的考验,根据2023年3月14日对鱼龙化石的发现和研究,科学家们提出了一个新的观点:鱼龙型下纲早在二叠纪末大灭绝之前就已经下水了,但种群规模较小。
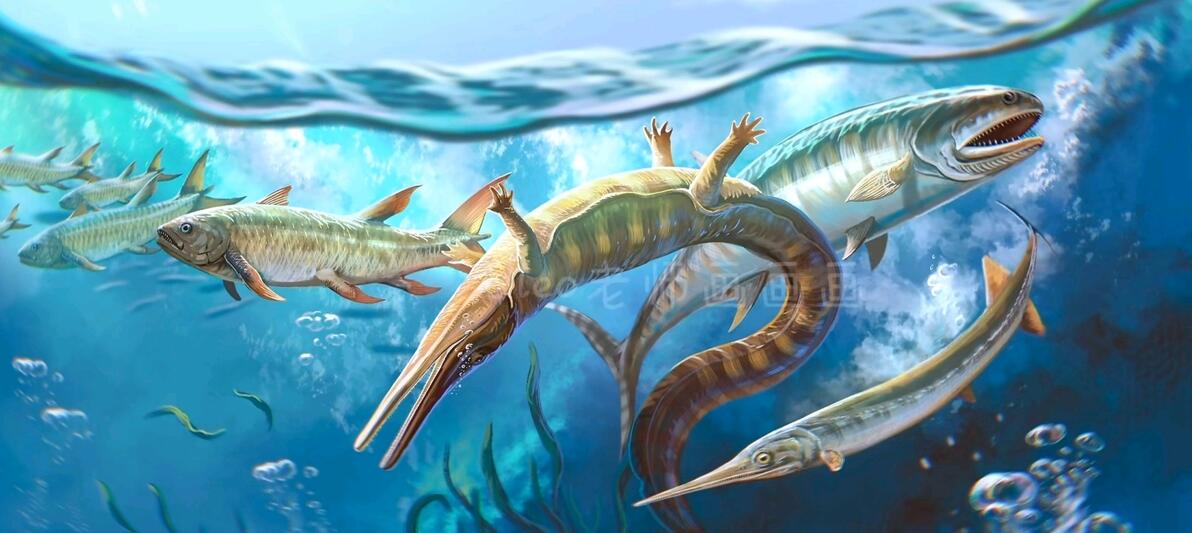
早三叠世的奥格尼克期,二叠纪末大灭绝的余焰还未燃尽,在斯密斯亚—斯帕斯亚期之间,海洋里繁荣的海生两栖动物惨遭重创,空出来很多生态位,以前的观点认为:鱼龙形下纲直到史密斯-斯帕斯物种更替事件之后才兴起,并开启他们的远洋旅途。
然而,科学家们发现了斯密斯—斯帕斯边界之前的鱼龙化石,
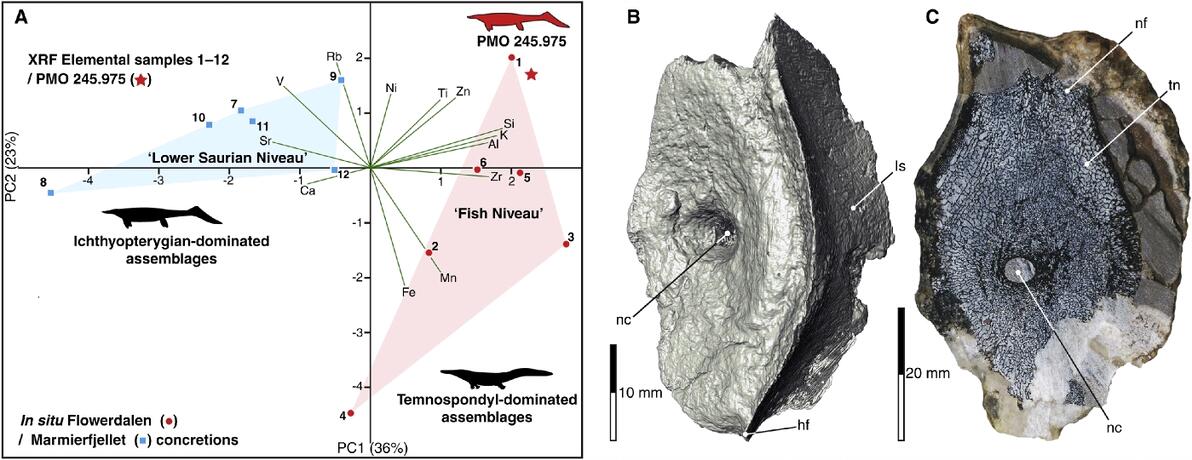
标本出土于2.5亿年前的地层之中,早于史密斯-斯帕斯边界,他距离二叠纪末大灭绝仅有200万年,属于鱼龙超目, 科学家也因此提出了一个极具开创性的观点:鱼龙形下纲早在二叠纪末大灭绝之间就已经下水,而不是在中生代早期作为补充生态空缺的存在出现。
在二叠纪末大灭绝中奇迹般存活的鱼龙祖先类群快速涌入大海,在接下来的数百万年里快速演化,形成了包括鱼龙超目在内的多个进化支系。
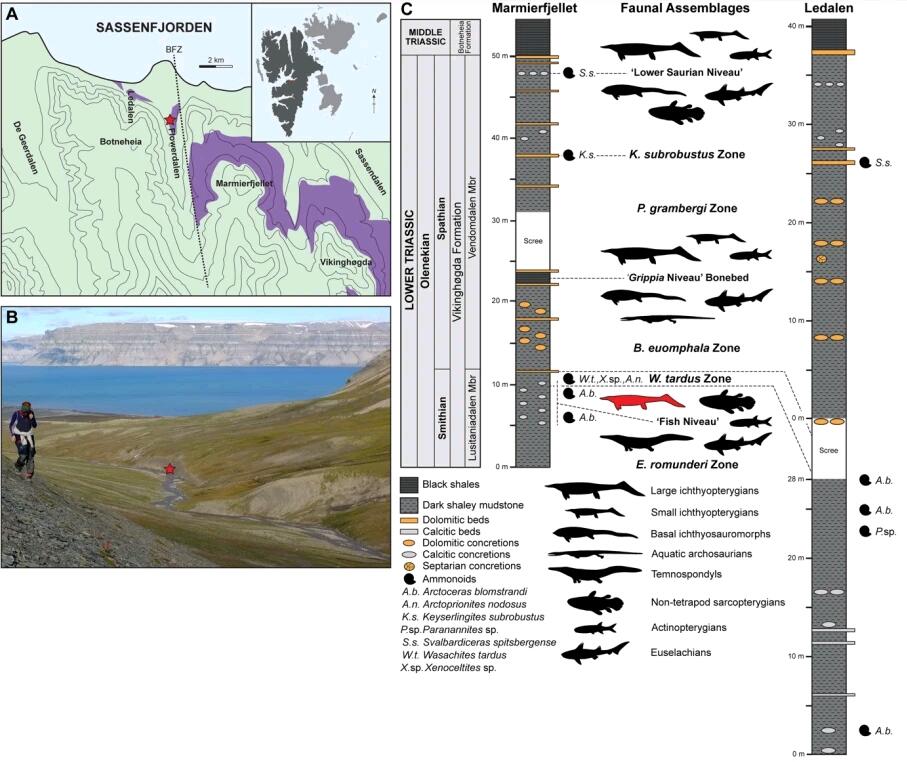
此外,鱼龙的骨骼结构和解剖特征也表明它们适应了高速游泳和深潜的需求,这可以解释为它们为了在新的海洋环境中寻找食物和避免捕食而进行的适应性演化,发展出了具有远洋能力的物种。
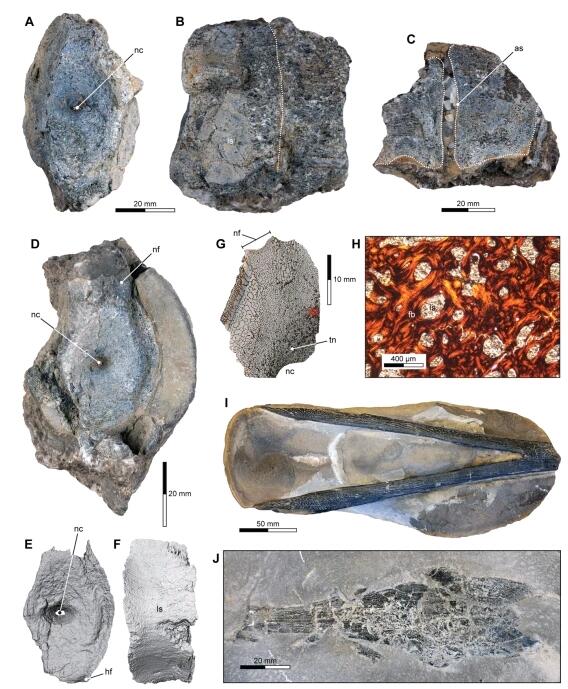
通过对鱼龙化石的研究,科学家们发现了许多支持这一观点的证据。科学家报告了一个来自早三叠世挪威维京赫格达组(Vikinghøgda Formation)的鱼龙超目,这个编号为PMO 245.975的样本包含11块椎骨以及一些零碎材料,预测其体型在3米左右,骨组织内部由松质骨组成,包含一个向四周放射的骨小梁网络,这些是个体成年的特征,并且象征着快速生长、代谢增加的远洋习性。
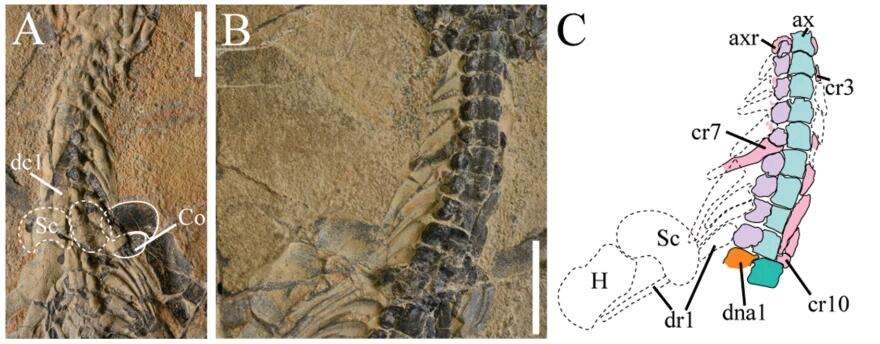
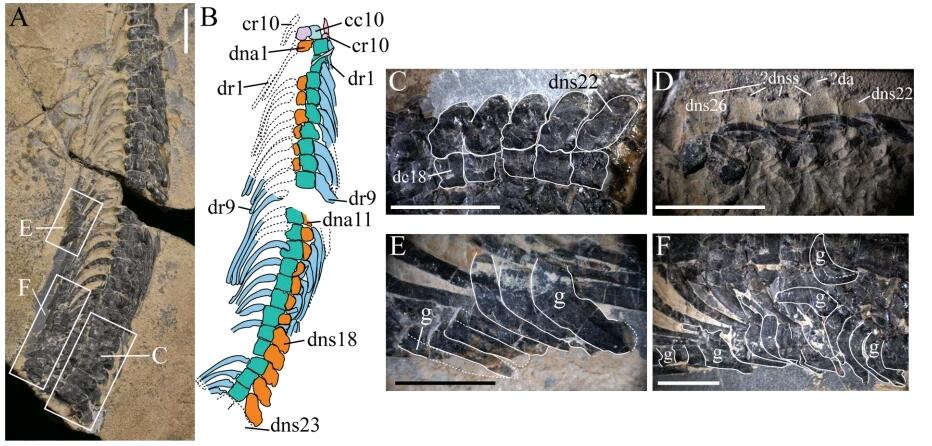
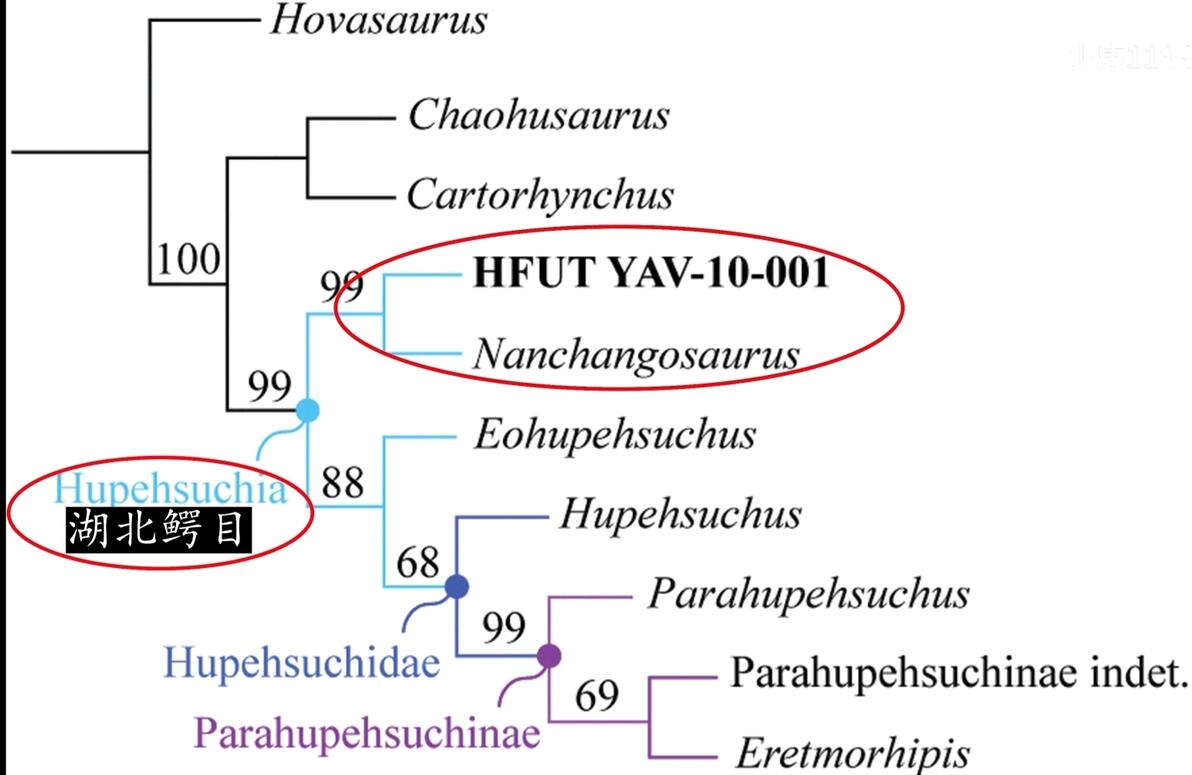
更何况在2024年5月,科学家描述了一件来自我国下三叠统嘉陵江组(Jialingjiang Formation)的新湖北鳄目(Hupehsuchia)标本,这个编号为HFUT YAV-10-001包含头骨以及许多颅后骨骼
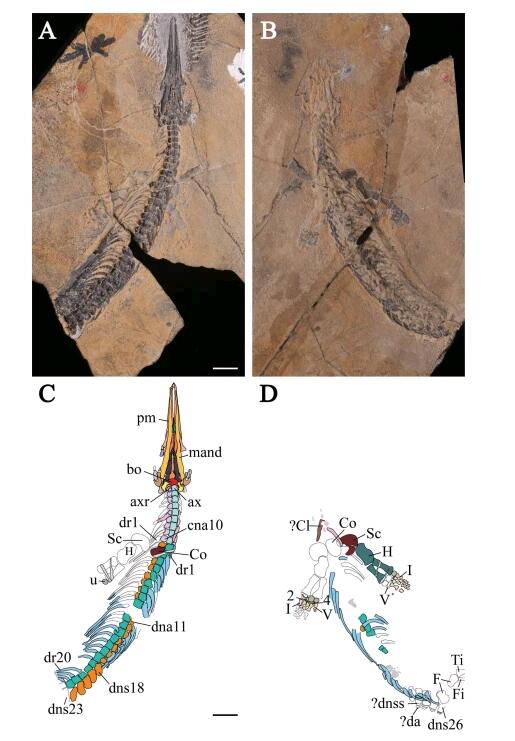
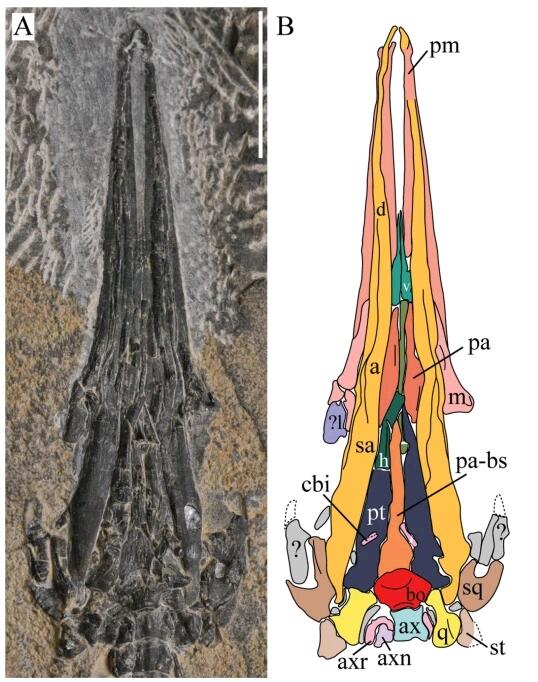
通过形态比对,科学家认为该标本属于南漳龙属孙氏南漳龙近似种(Nanchangosaurus cf. suni),系统发育分析也支持其为南漳龙的姊妹演化支。
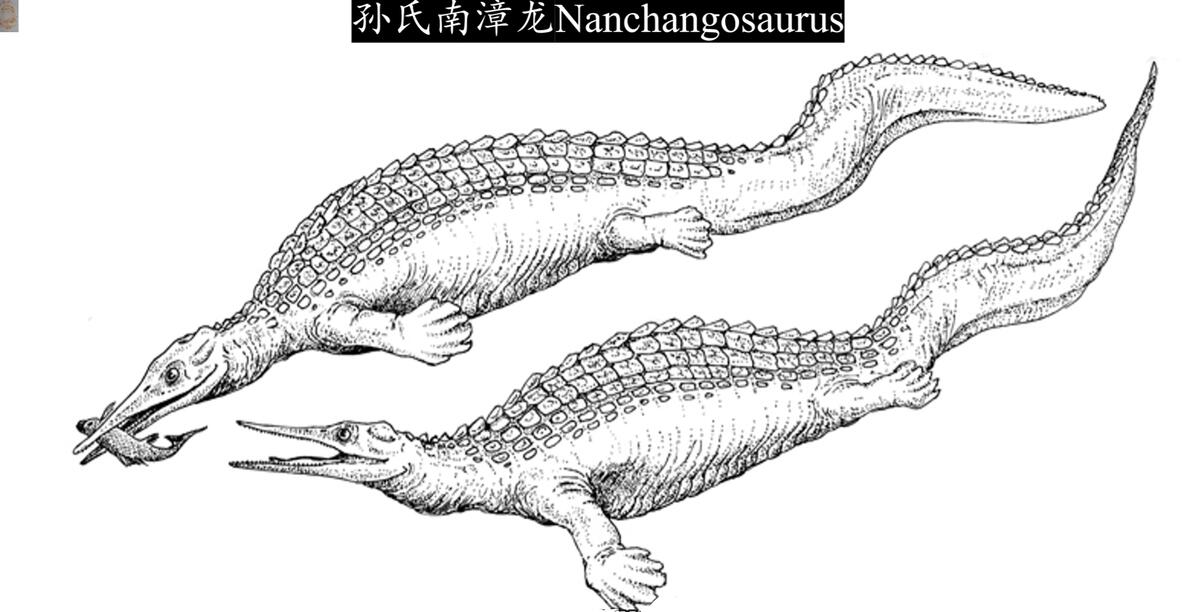
它和孙氏南漳龙都具有相同的颈椎数量和神经棘模式;不过相比于HFUT YAV-10-001,孙氏南漳龙的前鳍肢更短,由于HFUT YAV-10-001要比孙氏南漳龙正模更小,这更可能是种内变异或性二态。
最后,科学家指出:由海龙类(Thalattosauria)、鳍龙形下纲(Sauropterygomorpha)以及其姊妹群赫尔维蒂龙(Helveticosaurus)和鱼龙形下纲(Ichthyosauromorpha)组成的中生代海爬分支是主龟龙类(Archelosauria)下的一个单系群,这或许表明这些形态各异的中生代还有爬行动物具有一个共同的祖先,鱼龙从单独成纲被合并到了主龙形类。
然而,尽管这一新的鱼龙演化史观点更为“合理”(貌似在二叠纪末大灭绝中活下来的概率……一言难尽),科学家们仍然需要进一步的探索和发现二叠纪的鱼龙化石,以更好地理解鱼龙的演化历史。未来的研究可能会涉及更多的化石发现、古生物学技术的发展以及对海洋环境变化的进一步了解,从而完善我们对鱼龙演化的认识,这层层叠叠的迷雾也将陆续揭开。
喙光滤影
朝霞洒在三叠纪早中期古特提斯海的海滩之上,在灭绝事件中缓过来的菊石在海里缓缓游过,突然,一个由角质喙构成的嘴巴咬住了菊石那坚硬的壳,等待这只菊石的只有无尽的绝望与脐齿鱼龙口中那球状的碎壳机器。
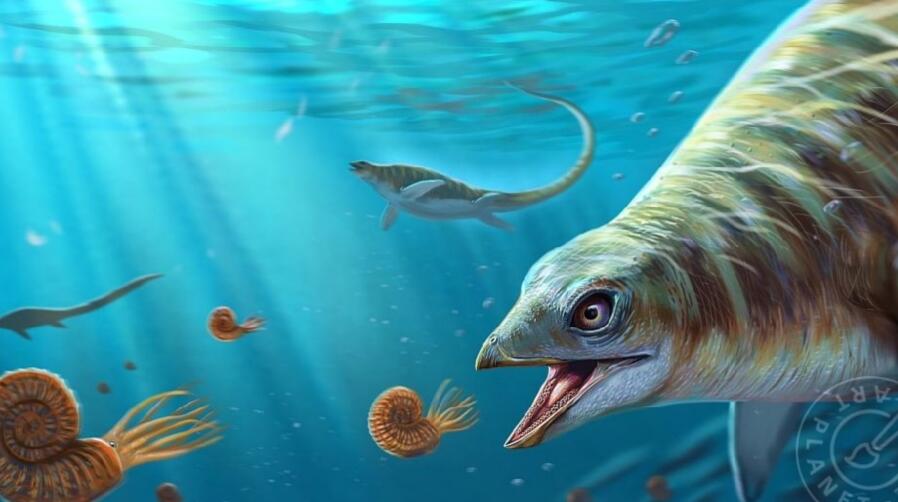
他们体长约为3.6米,属于脐齿鱼龙科,是鱼龙型小纲的基础位置。他们与其他三叠纪硬食性海洋爬行动物不同之处在于,它的下颌并不厚重,冠状突(牙齿上方的突起)发育程度较差。因此,它不会主要利用颌骨后端进行咬合。同时,刚体龙上下颌骨前端呈褶皱且无齿,这表明它的吻部可能附着着类似于海龟的角质喙。
形态空间分布显示,脐齿鱼龙科的形态与龟类相近,这暗示它们可能类似于今天的远洋型海龟,以自己的喙捕食多种猎物。伴随着喙光,转向遥远的东方——来自另外一个姊妹类群的湖北鳄亚目则带来了滤影。2023年8月科学家通过重新研究湖北鳄的头骨发现了一些有趣的事实。
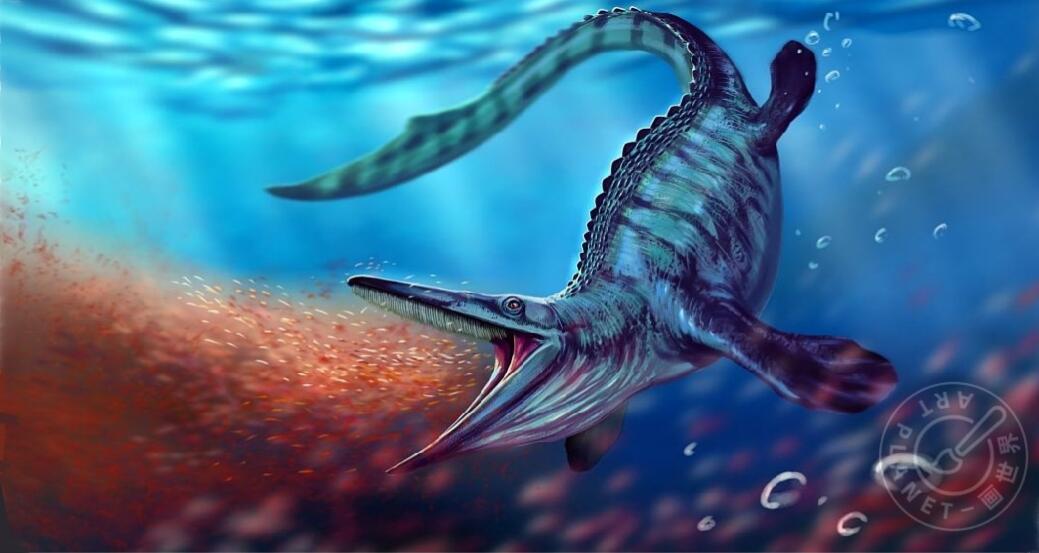
湖北鳄是一种属于基础鱼龙形下纲的海生爬行动物,其头骨的形态与现代的须鲸存在趋同。除了有明显拉长和上下颚,湖北鳄还增大了鼻子之间的间隙,扩大了口腔以便于进食,不仅如此,湖北鳄没有牙齿,但上颌唇侧的凹凸结构十分类似于须鲸类鲸须的附着点,这表明湖北鳄可能拥有类似于鲸须的软组织来进行滤食。主成分分析也表明它的头骨比起鹈鹕更加类似于须鲸。这一发现引发科学家们对湖北鳄可能具有滤食能力的推测。
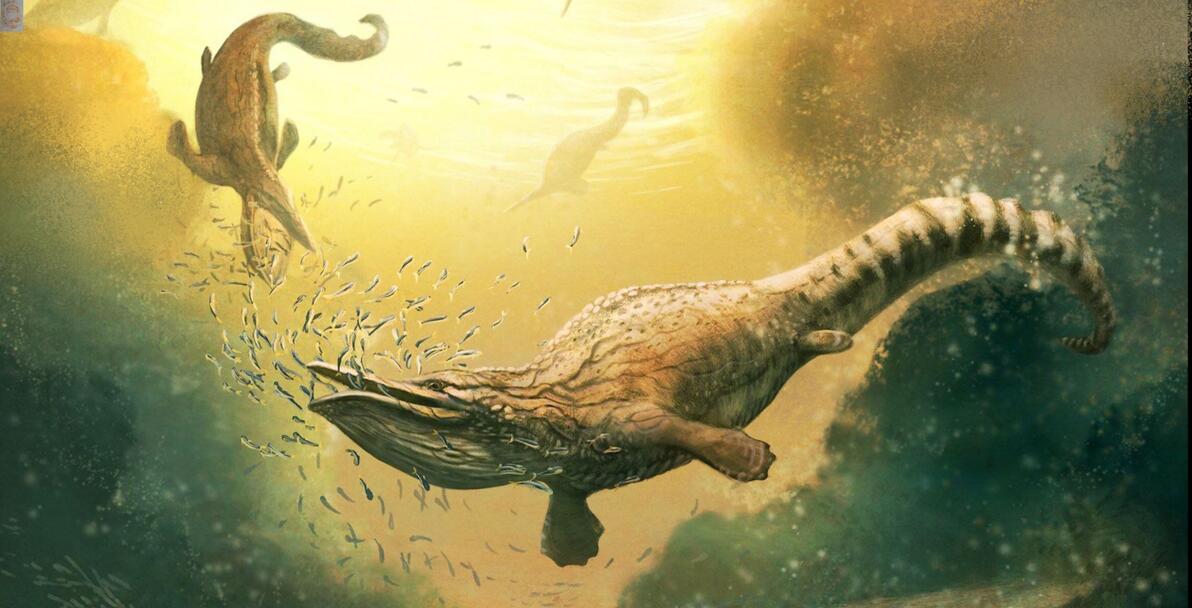
湖北鳄具有发达的鳍状肢和高耸的神经棘,这使得它在水中具有出色的运动能力。然而,相比于其他一些具有强大侧向运动能力的海洋动物,湖北鳄的侧向运动能力相对较弱。根据科学家的研究,湖北鳄更可能像弓头鲸和露脊鲸一样采用往返滤食的方式获取食物。
据推测,他们可能以一些节肢动物或浮游生物为食物。在二叠纪末的大灭绝事件后,海洋生态系统出现了恢复期。这个时期可能为湖北鳄演化出滤食形态提供了机会。许多海洋生物灭绝后,生态位的空缺为新的物种发展提供了可能。湖北鳄可能通过适应和利用当时出现的类似于今天磷虾的节肢动物或浮游生物作为其主要食源,最终演化出滤食的形态。
而他们的远房亲戚扁桨龙则演化出了形似鸭嘴的吻部,与鸭嘴兽有着异曲同工之妙,尽管头部占身体的比例极小 视力严重退化,但是他们也许会像鸭嘴兽一样依靠盲感捕猎,可能是已知最早依靠盲感捕猎的脊椎动物。
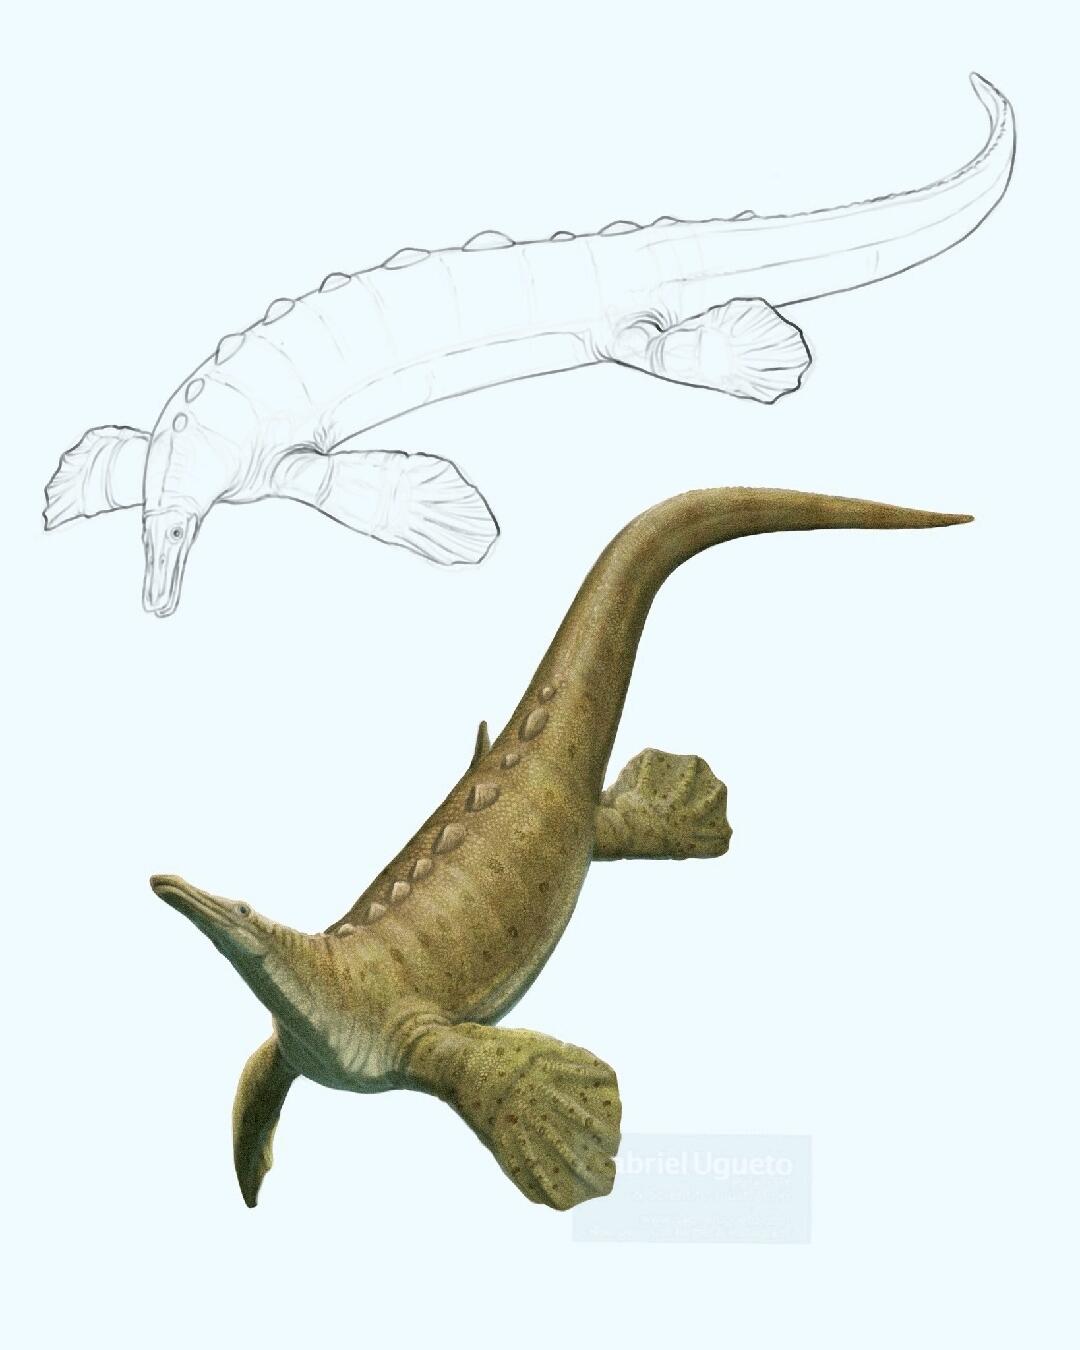
顾名思义,他们的四肢已经特化成了扁状的鳍桨,与湖北鳄一样,他们的背部也同样有有骨质突起,表面可能覆盖着角质。
初启征程
在灼热序始这一章中,我们讲述了先前在二叠纪末大灭绝中奇迹般存活的鱼龙祖先类群快速涌入大海,在接下来的数百万年里快速演化,形成了包括鱼龙超目在内的多个进化支系,发展出了具有远洋能力的物种。
例如处于鱼龙型小纲的基础位置的脐齿鱼龙科都出土于远洋沉积物中,所以所有成员都应该在远洋生活,包括之前被认为像海豹一样短吻龙其实也不会上岸。虽然脐齿鱼龙科的远洋巡航能力不强,但并不影响其成为高效的猎手,因为菊石本身也游不快。
为了适应远洋生活,鱼龙家族中的巢湖鱼龙则特化出了卵胎生的本领,只不过他们的生产方式与后期的鱼龙有很大区别,胎儿头部先出来的生产方式则导致胎儿则更容易呛水,窒息而亡。此外,根据目前已发现的化石,巢湖鱼龙有着明显的个体差异。当然,不排除性二态的可能
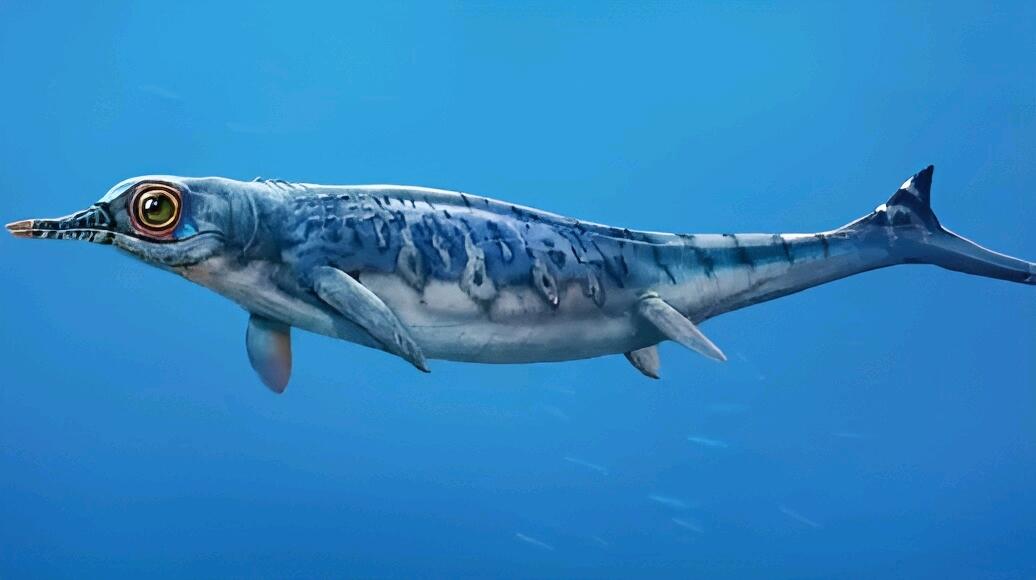
但是生命自会寻得解决方法,在美国内华达州发现了一只2.46亿年前的怀胎鱼龙化石显示,它在预产期前死亡时体内至少有3只未出生的幼崽。尽管这些幼崽已死亡,它们的头部位置表明它们可能是头部朝前出生的,和大多数陆地动物一样。但研究表明进化压力很可能导致鱼龙臀位分娩,这种生活在恐龙时代海洋中的爬行动物在水下分娩时会让幼崽出生后尽可能延迟独立呼吸时间。此外,这只鱼龙“马汀娜”很可能体长4.3米,牙齿长度2.5厘米,生活在开阔海域。据信,这是目前发现的第二古老的怀胎鱼龙化石。
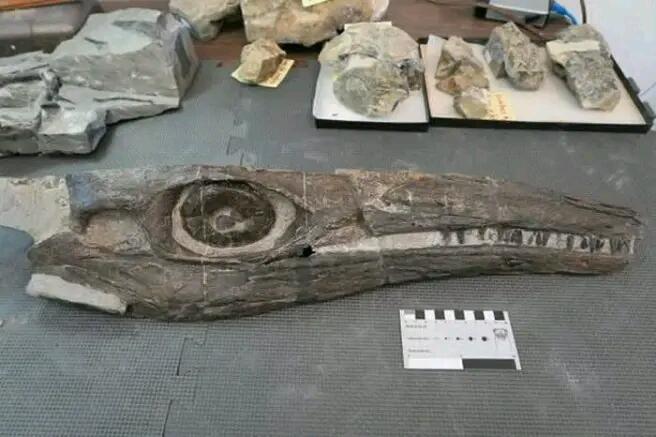
温润的特提斯海曾是儒艮的天堂,得益于当时大面积的浅滩,那里水草丰茂,细雨蒙蒙。而数亿年前的古特提斯海也曾是早期鱼龙的故乡。准备已久的鱼龙超目开启了环游整个北半球的旅途,其中有小日子过的“不错”的歌津鱼龙,
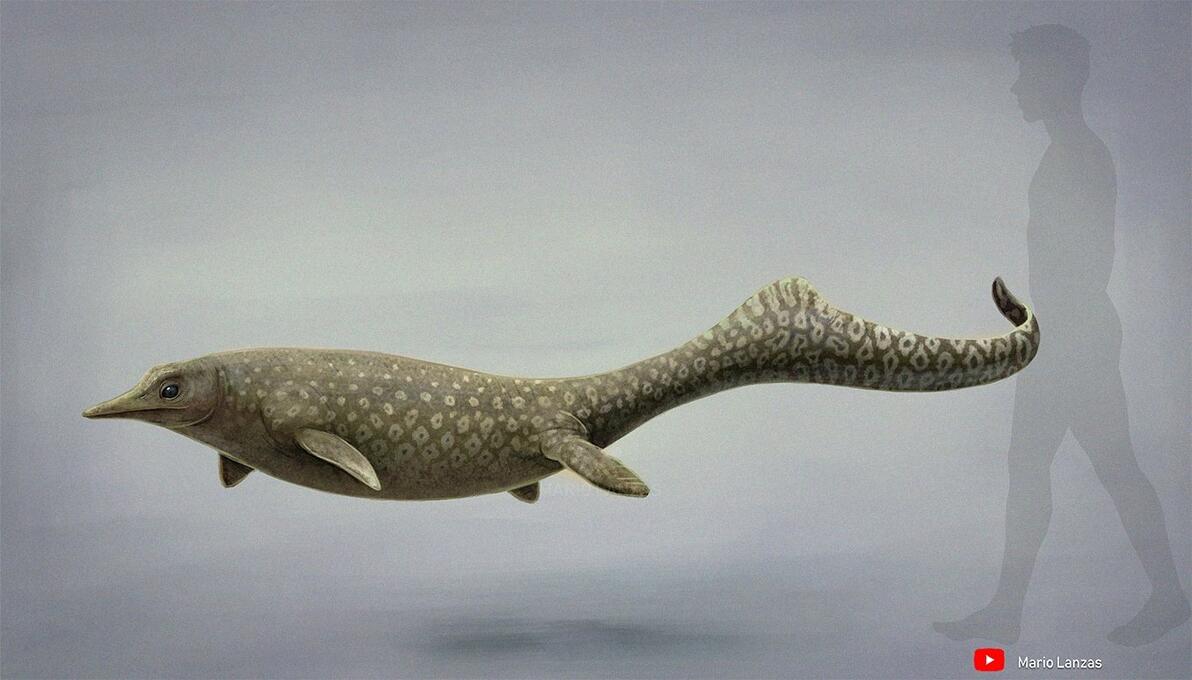
泰国的泰鱼龙,挪威的短尾鱼龙,和加拿大的狼獾鱼龙,他们的尾弯同晚白垩世的沧龙一样尚未愈合是一道优雅的抛物线,而进步的鱼龙类尾柄的骨骼呈愈合状形成锐利的折角。
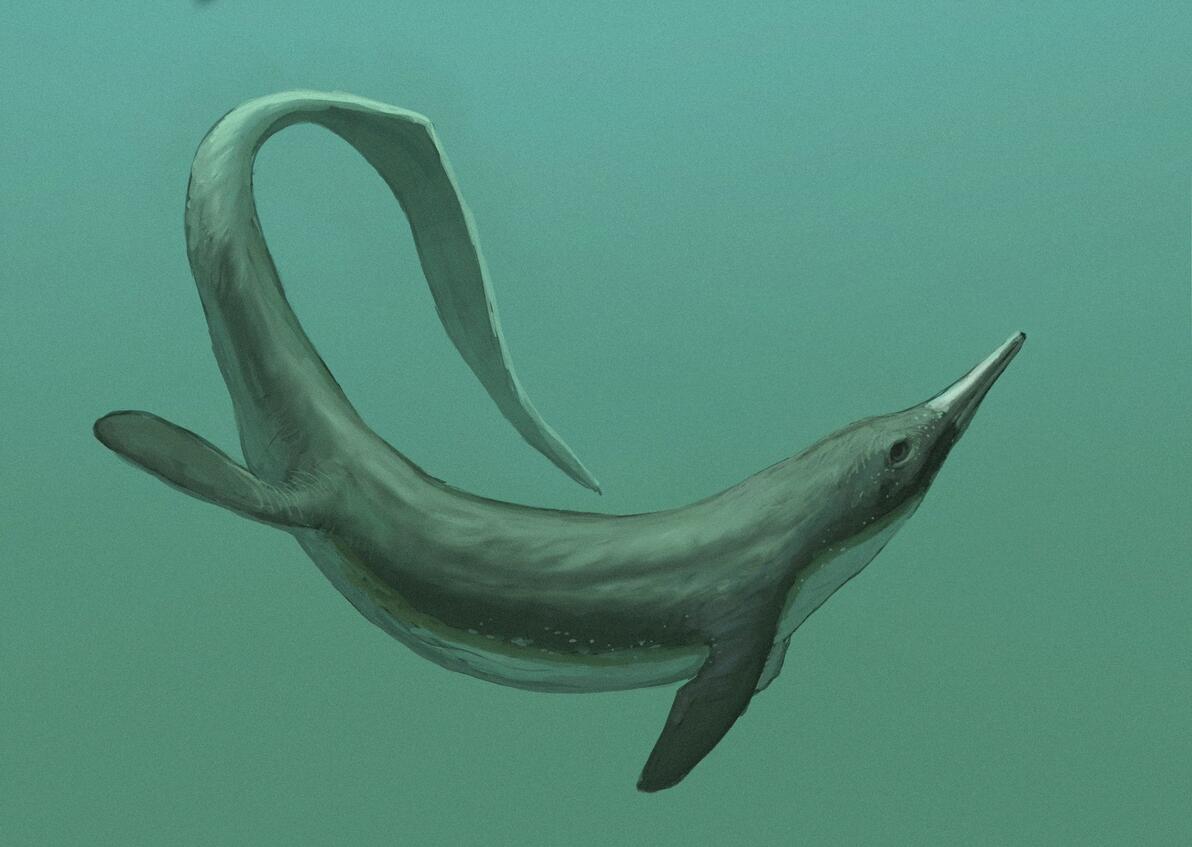
这也恰好说明了,鱼龙此时已经方方面面诠释了趋同演化。在体型方面,早期鱼龙也展现了相当的潜力。例如化石出土于罗楼组(Luolou Formation)的强壮 百色鱼龙(Baisesaurus robustus)。百色鱼龙生存于早三叠世的中国,正模标本CUGW VH107包含部分颅后标本。 百色鱼龙是一种基础的鱼龙形下纲成员,它的椎骨神经弓缺乏横突,背肋整体细而薄,腹膜肋正中存在一个尖突,这些都是它属于基础鱼龙形下纲的证据。
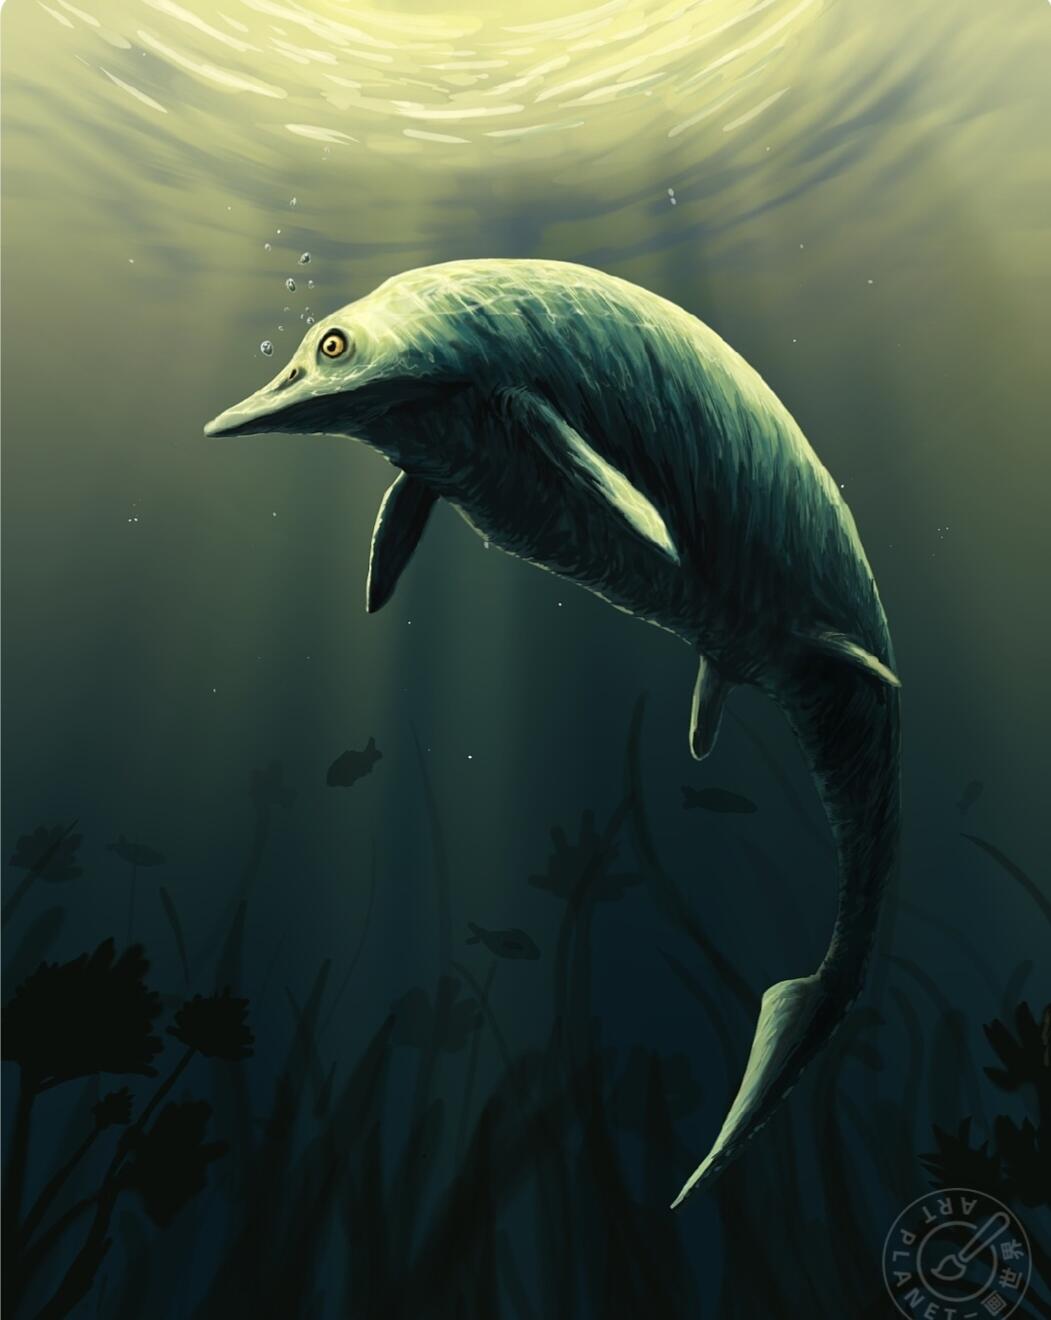
不过虽然原始,它仍然有着三米的体型,属于较大型的鱼龙类,肋骨显微组织研究显示它骨骼外层有平行排列的纤维骨,证明这个个体死前已经进入慢速生长阶段。 虽然没有做系统发育分析,但科学家认为百色鱼龙与另一种原始的鱼龙类歌津鱼龙(Utatsusaurus)类似而与其它同时期国内的原始鱼龙类不同,这表明在当时的国内可能存在多个鱼龙谱系。除此之外,百色鱼龙也是广西第一种被描述的鱼龙,它拓宽了鱼龙形下纲在国内的分布范围,对重建当地古环境有着重要的作用。这些早期鱼龙的多样性宣告着他们在生态位上的蓬勃发展。
时间推进到2.35亿年前的我国贵州地区,那里曾是古特提斯海的东部,由创孔海百合构成的水面森林在浮木上随波逐流,这里是黔鱼龙的庇护所,因为他们体型娇小,体长约在1.3至1.5米左右。同样娇小的还有在2024年发现的泸西 混鱼龙(Mixosaurus luxiensis),标本HFUT HL-21-08-002是一个几乎完整的个体。
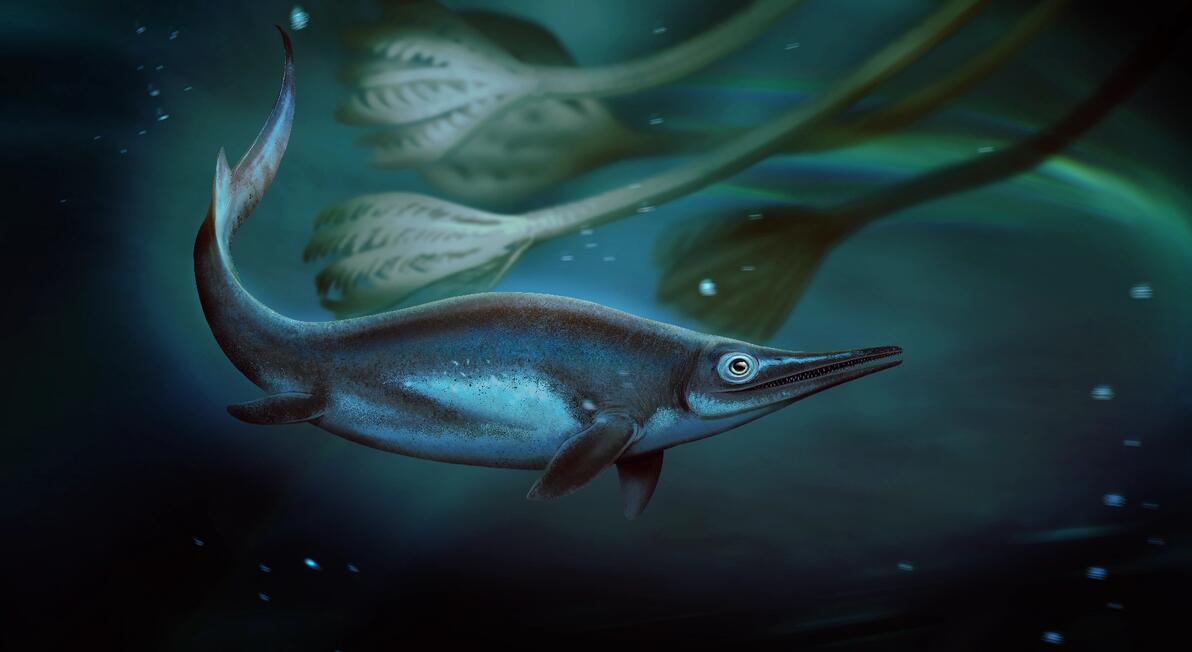
泸西混鱼龙是混鱼龙属的新种,其枕骨形态表明它是一个未成年的个体,推测长度只有75厘米,使得它是目前已知最小的混鱼龙属物种之一。其特征包括上颞孔平台仅接触到鼻骨最后缘,颅骨眶后部分是眼眶长度的一半,颧骨缺乏后腹侧突等等。系统发育分析显示:它可能与后面要讲到的混鱼龙模式种科纳利混鱼龙(Mixosaurus cornalianus)是姊妹演化支。
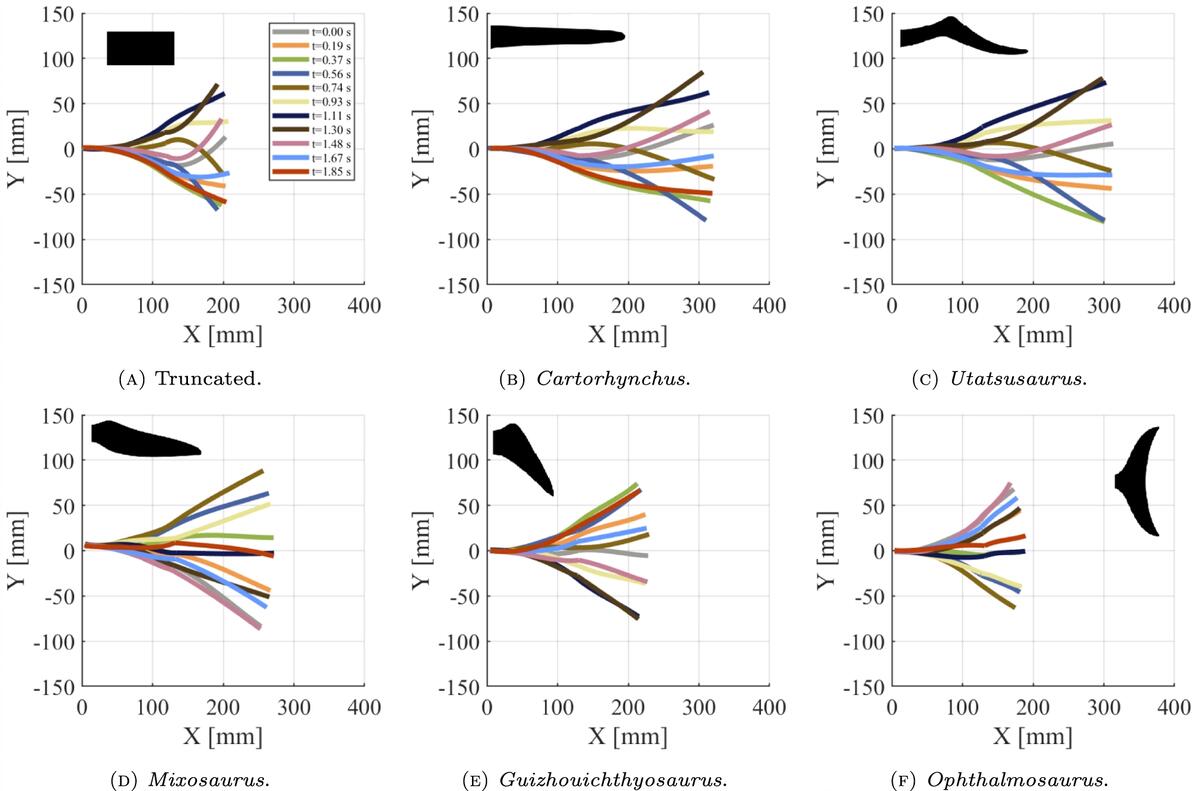
而在整个关岭生物群,体型更为巨大的贵州鱼龙在此守候 。科学家利用全新的软体机器人技术研究了包括贵州鱼龙(Guizhouichthyosaurus)在内的多种鱼龙类的运动,并探讨不对称尾鳍与浮力之间的关系。研究证实了歪尾有助于鱼龙类游泳平衡浮力带来的竖直方向的力,
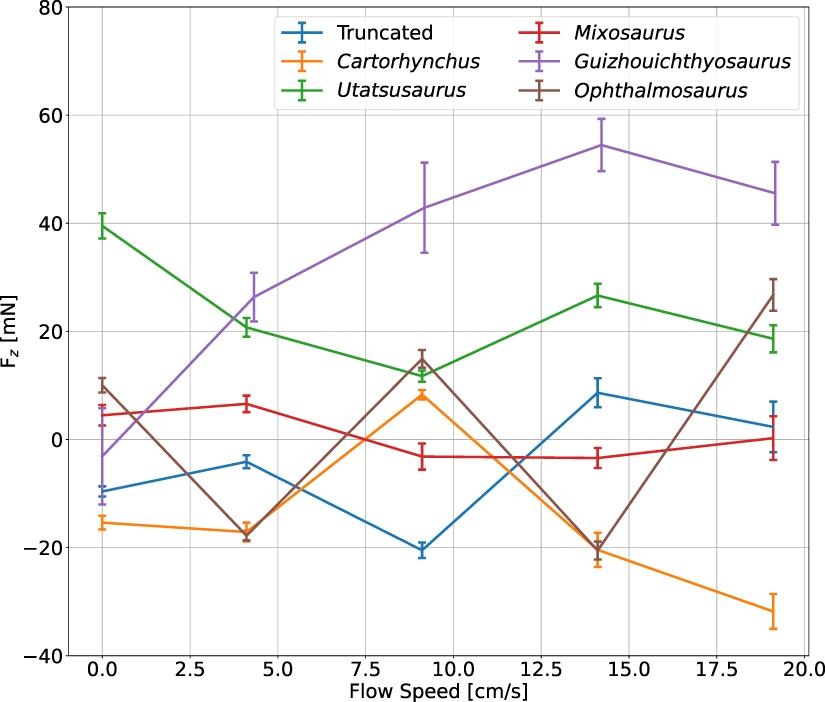
尤其是贵州鱼龙那样极端化的下歪尾,可以产生相当大的变桨扭矩,并保证它们能够在水体中平稳前进;歌津鱼龙(Utatsusaurus)、混鱼龙(Mixosaurus)亦是如此。
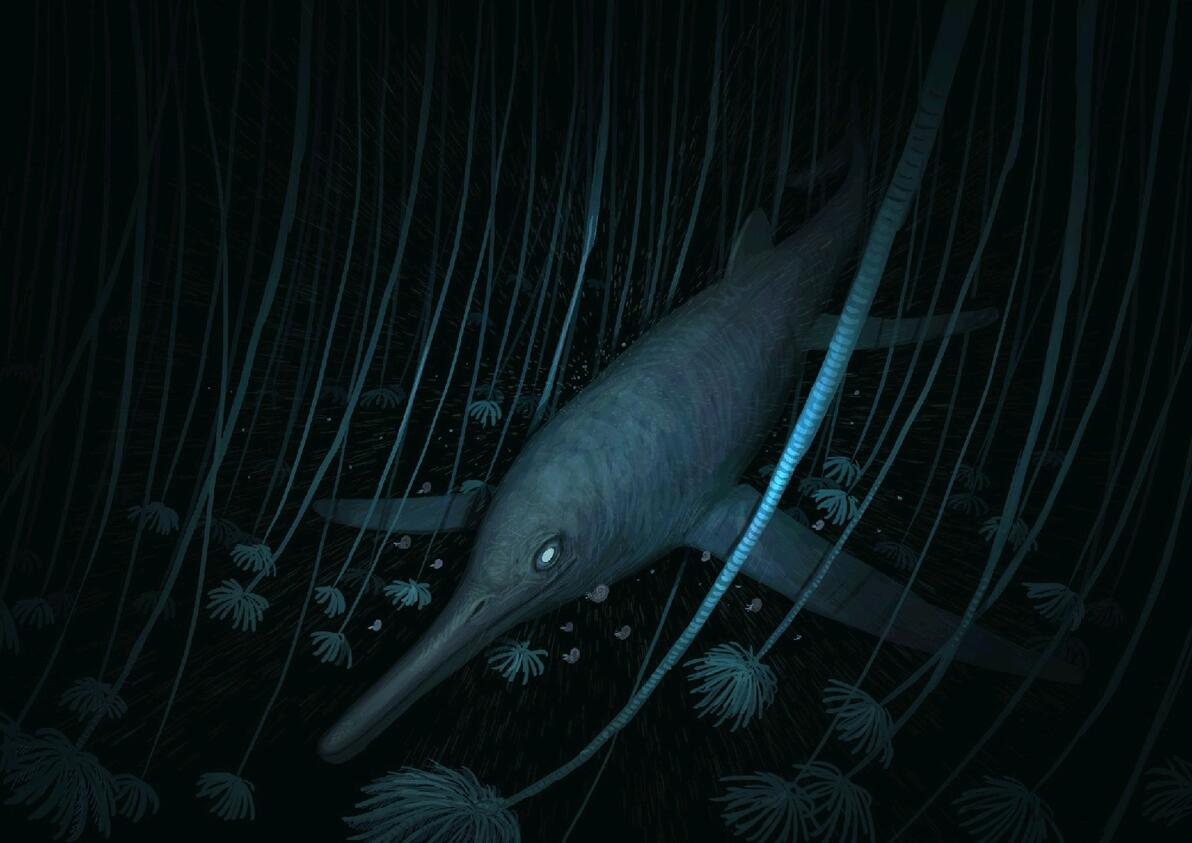
贵州鱼龙在昏暗的水域觅食
娇小的黔鱼龙绝不是身长约为5至6米贵州鱼龙的对手,但他们是眼睛比例最大的鱼龙,表明他们的视觉很发达能够看清昏暗海水里的动向。
因而,他们成为了当地数量最多,最常见的鱼龙。但此时,贵州鱼龙对于他们并不感兴趣,转而去挑战更为庞大的猎物——身长四米的新铺龙。然而,贪吃的代价是巨大的——在进食的过程中猎物的挣扎使他扭断了脖子,吞下没多久便与猎物一同命丧黄泉。
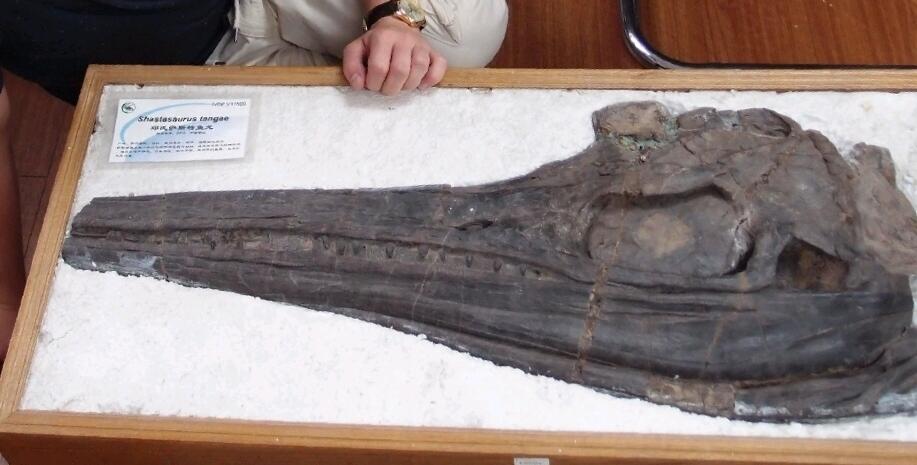
贵州鱼龙头骨化石
相比于暴躁的贵州鱼龙,这里最大的动物关岭鱼龙显然相对要温顺的多,平日里以柔软的头足类为食。他们身长可达11米,庞大的身体拍打着巨浪,巡视着这片水域……
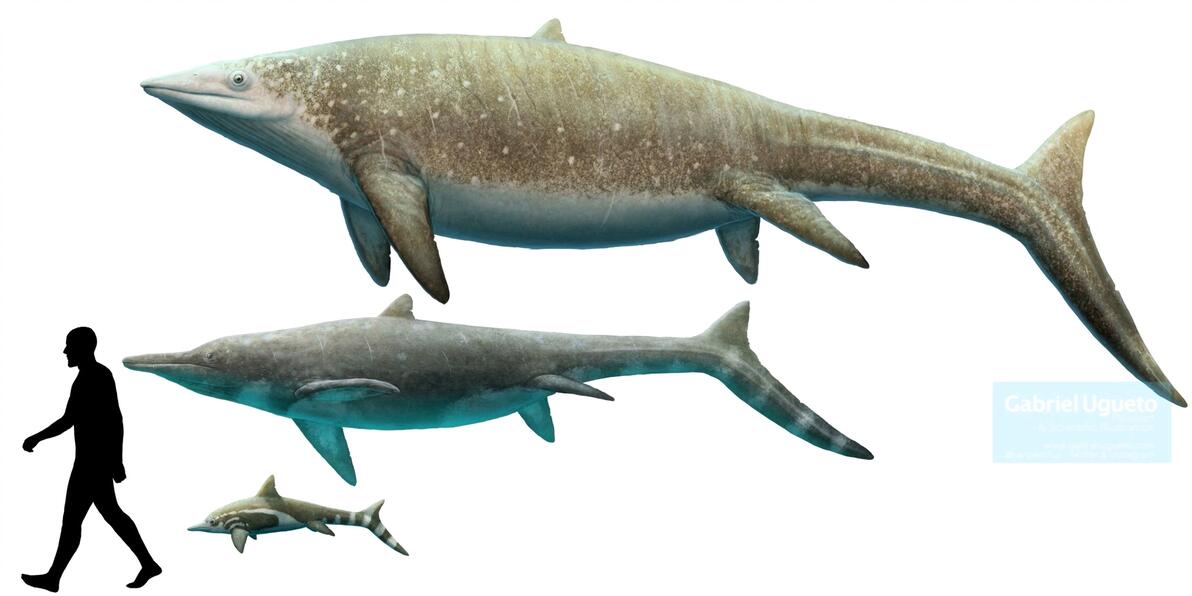
上中下图依次为关岭鱼龙、贵州鱼龙、黔鱼龙
约2.45亿年前中三叠世的安尼期,一片轻巧的身影成群结队的在海边游过,随着身影逐渐清晰,他们的身份也逐渐显露——混鱼龙(Mixosaurus)体长约为一米左右,数量庞大,种类繁多,在欧洲、北美洲和亚洲等地都有发现。
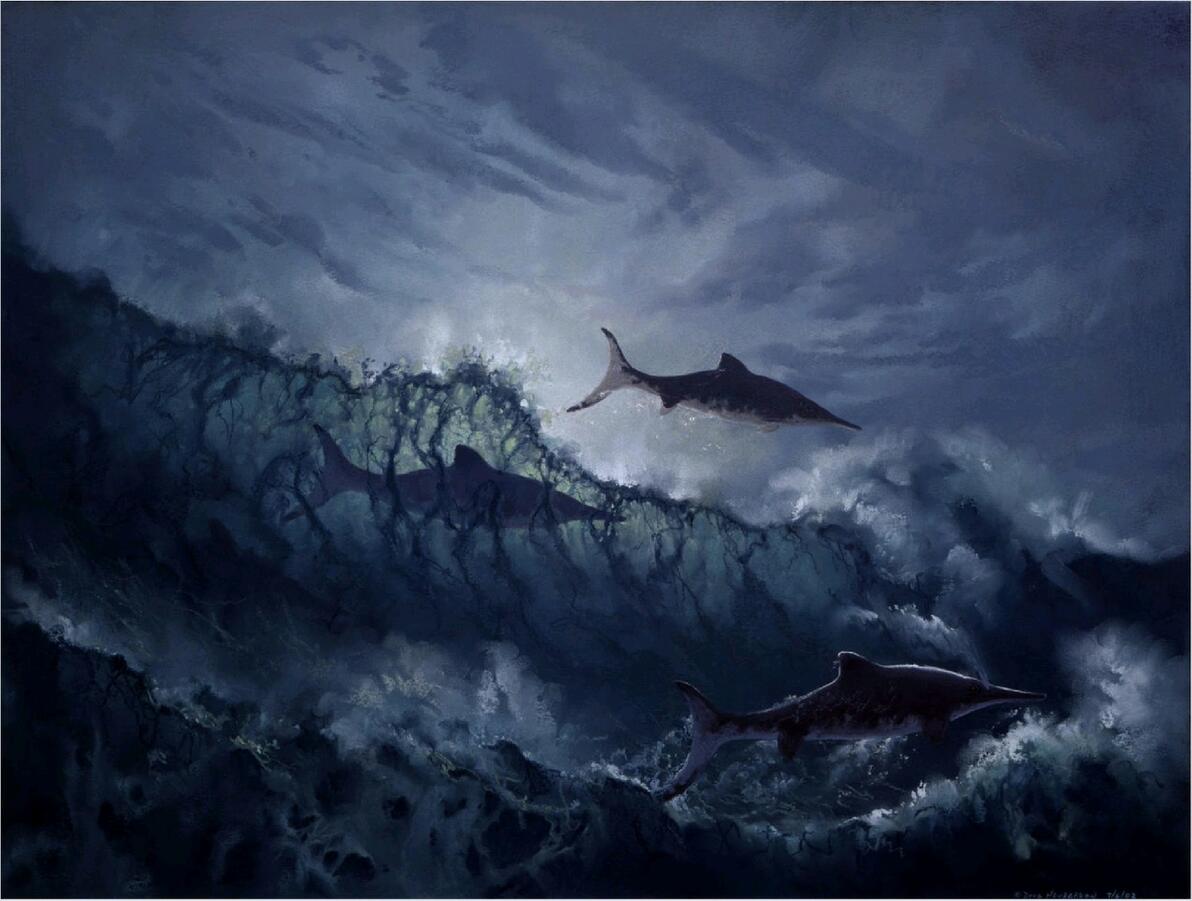
科尔纳利混鱼龙(Mixosaurus cornalianus)是混鱼龙的模式种,最早化石发现于意大利与瑞士的边境地区。此后,在德国、挪威的斯瓦尔巴群岛、中国、瑞士、美国等地发现了混鱼龙的其他新种,使得这个家族逐渐扩大。
混鱼龙家族的各个成员尽管各不相同,但是仍然具有许多共同的特征,包括呈三角形的头部、长而尖的吻部、大而突出的眼睛、以及特殊的齿列结构。它们的头部长有矢状脊,以附着更多的咬肌,锋利的锥状齿和粗壮钝圆的牙齿,能够适应不同种类食物的摄取。混鱼龙的身体形状介于鳗鱼和海豚之间,脖子较短,背部有四个较小的鳍状肢,尾巴较长且具有明显的尾鳍。
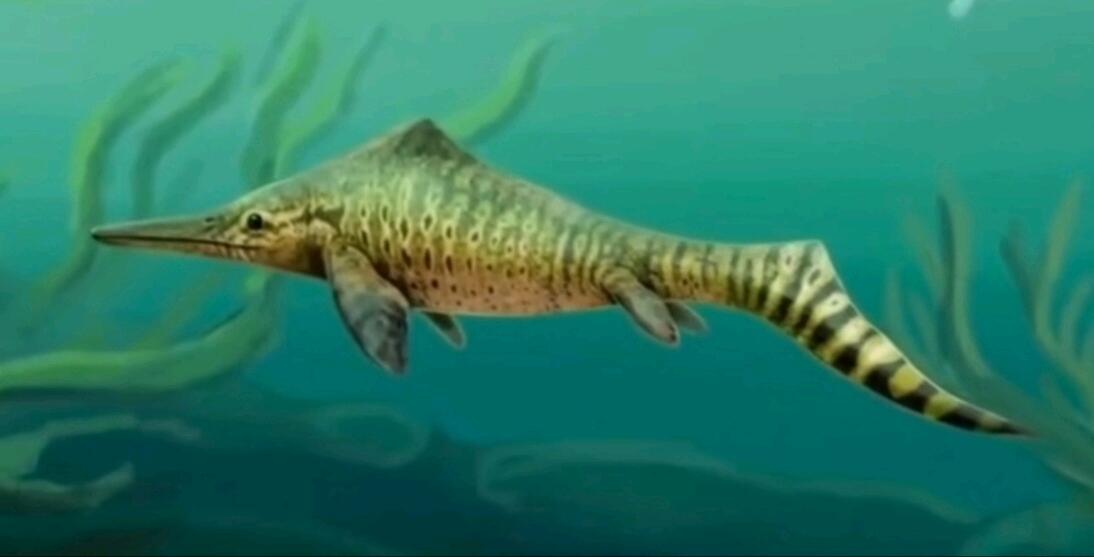
1965年,中国科学家根据采自贵州怀仁的一些零散的头骨骨骼化石材料,命名了混鱼龙的一个新种,茅台混鱼龙(茅台打钱!)这是中国首次发现生活在三叠纪时期的鱼龙类成员,可惜的是,茅台混鱼龙的化石较为破碎,人们无法对它进行更为深入的了解,不过幸运的是,同样发现于贵州的新店混鱼龙,它有着保存较为完好的骨骼化石,为人们提供了更多了解混鱼龙的材料。
在2020年的研究中,通过对混鱼龙的软组织化石进行分析,揭示了更多关于它们外部特征和食性的信息。例如,在科尔纳利混鱼龙的标本中,保存有无鳞的皮肤结构和胃内容物,这些发现证实了混鱼龙具有多样化的食物习性。保存完好的软组织也揭示了混鱼龙不仅有发育良好的尾鳍,还有背鳍。鱼龙背鳍的演化历史就此推前了大约五千万年。
三叠巨影
在混鱼龙群嬉戏的身影中,一个庞然巨物打断了宁静,他有着鳗鱼般的身材,吻部又窄又长,几乎超过了头骨长度的一半。他们便是作为鱼龙顶级掠食者化的开端之一——杯椎鱼龙。
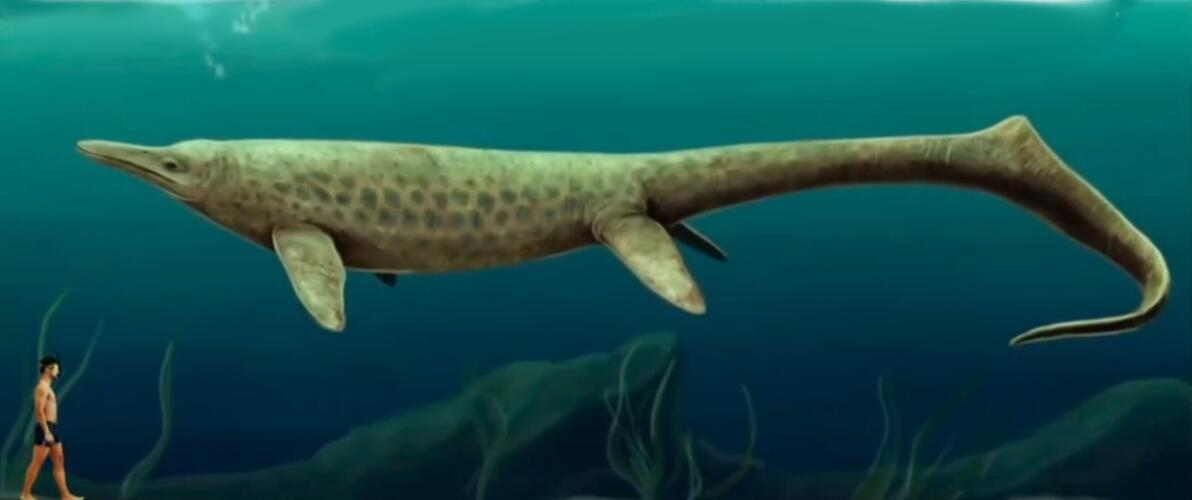
作为顶掠,大型化自然少不了。他们的体长通常约为5到8米。在当时的海域里,已经算得上是巨无霸了。尽管身体不是更符合流体力学的流线型,但是他们鳗形的身材依旧能够迅速穿行于浅海水域,细长而窄呈锥形的头部,便是他们减小阻力的关键。他们的牙齿非常锋利,适用于捕食和撕咬猎物。但奇特的是,它的上颌和下颌牙齿数量并不一样。它上颌的齿裂长,牙齿数量多。这些牙齿呈圆锥状,齿尖略朝后弯曲。牙齿表面有纵向纹路,而它下颌的齿裂短,只在齿骨的前半部分有牙齿。
而他们作为鱼龙兴起的产物之一,分布范围广那是必须的。包括发现于德国的德国杯椎鱼龙,发现于瑞氏的布赫瑟杯椎鱼龙,杯椎鱼龙属下,原来还包含发现于中国的亚洲杯椎鱼龙,但是现在已经被归属萨斯特鱼龙属,被称为邓氏萨斯特鱼龙,除此之外,人们在南美洲大洋洲也发现了疑似杯椎鱼龙的化石。
从身体的比例来看,他们的眼眶孔是鱼龙家族中最小的,意味着他的视力不会太好。尽管杯椎鱼龙的视力相对较差,但作为顶级掠食者,它们具有敏锐的听觉和嗅觉。这些感官帮助它们在水中追踪和定位猎物,从而更有效地捕食。
而另一边,祖先圆凸齿鱼龙也不甘示弱,体长也达到了近五米,与那些专攻头足类的鱼龙相比,同型且圆锥状的牙齿,较为粗短的头部显现出掠食者的特征。
要说把在早期鱼龙中真正在掠食方面上有一席之地的,那当属———食蜥海帝鱼龙。他们的后颞孔发达,颅型咬力自然不容小觑。占上颌骨比例大,菱形带有两个切削刃的牙齿能够轻而易举的咬碎猎物的皮肉以及相对来讲细小的骨头,相当于如今虎鲸的生态位。他们共同诠释了鱼龙向顶级掠食者演化的开端。
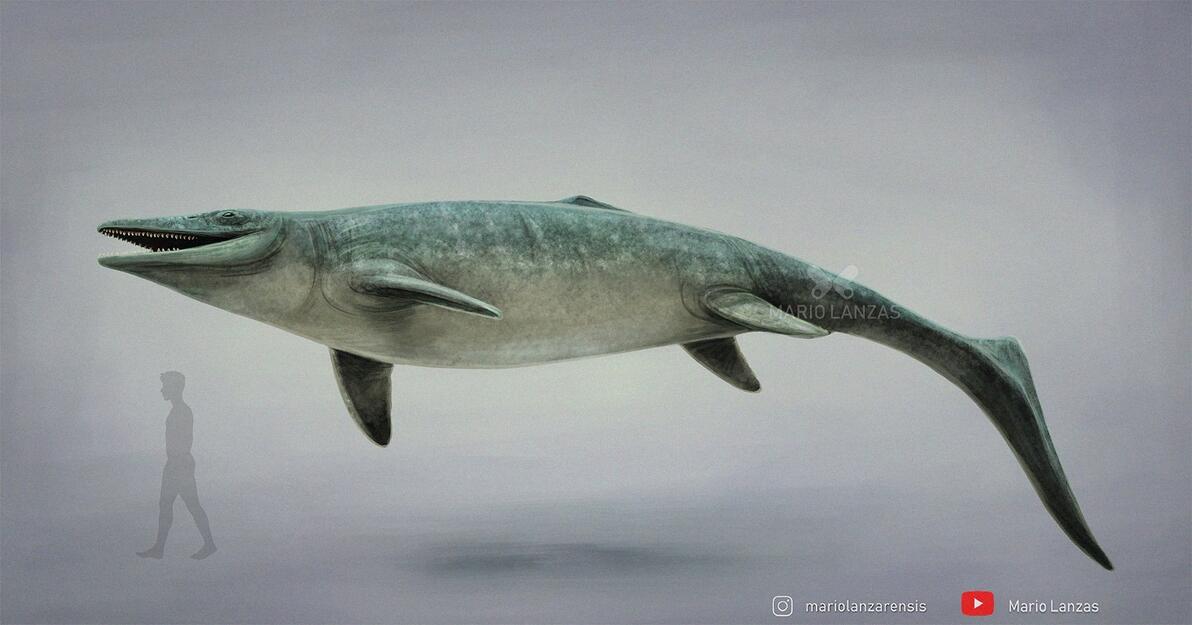
与食蜥海帝鱼龙共存于同一片海域的杨氏杯椎鱼龙则有着三角钢琴般大小的头骨,
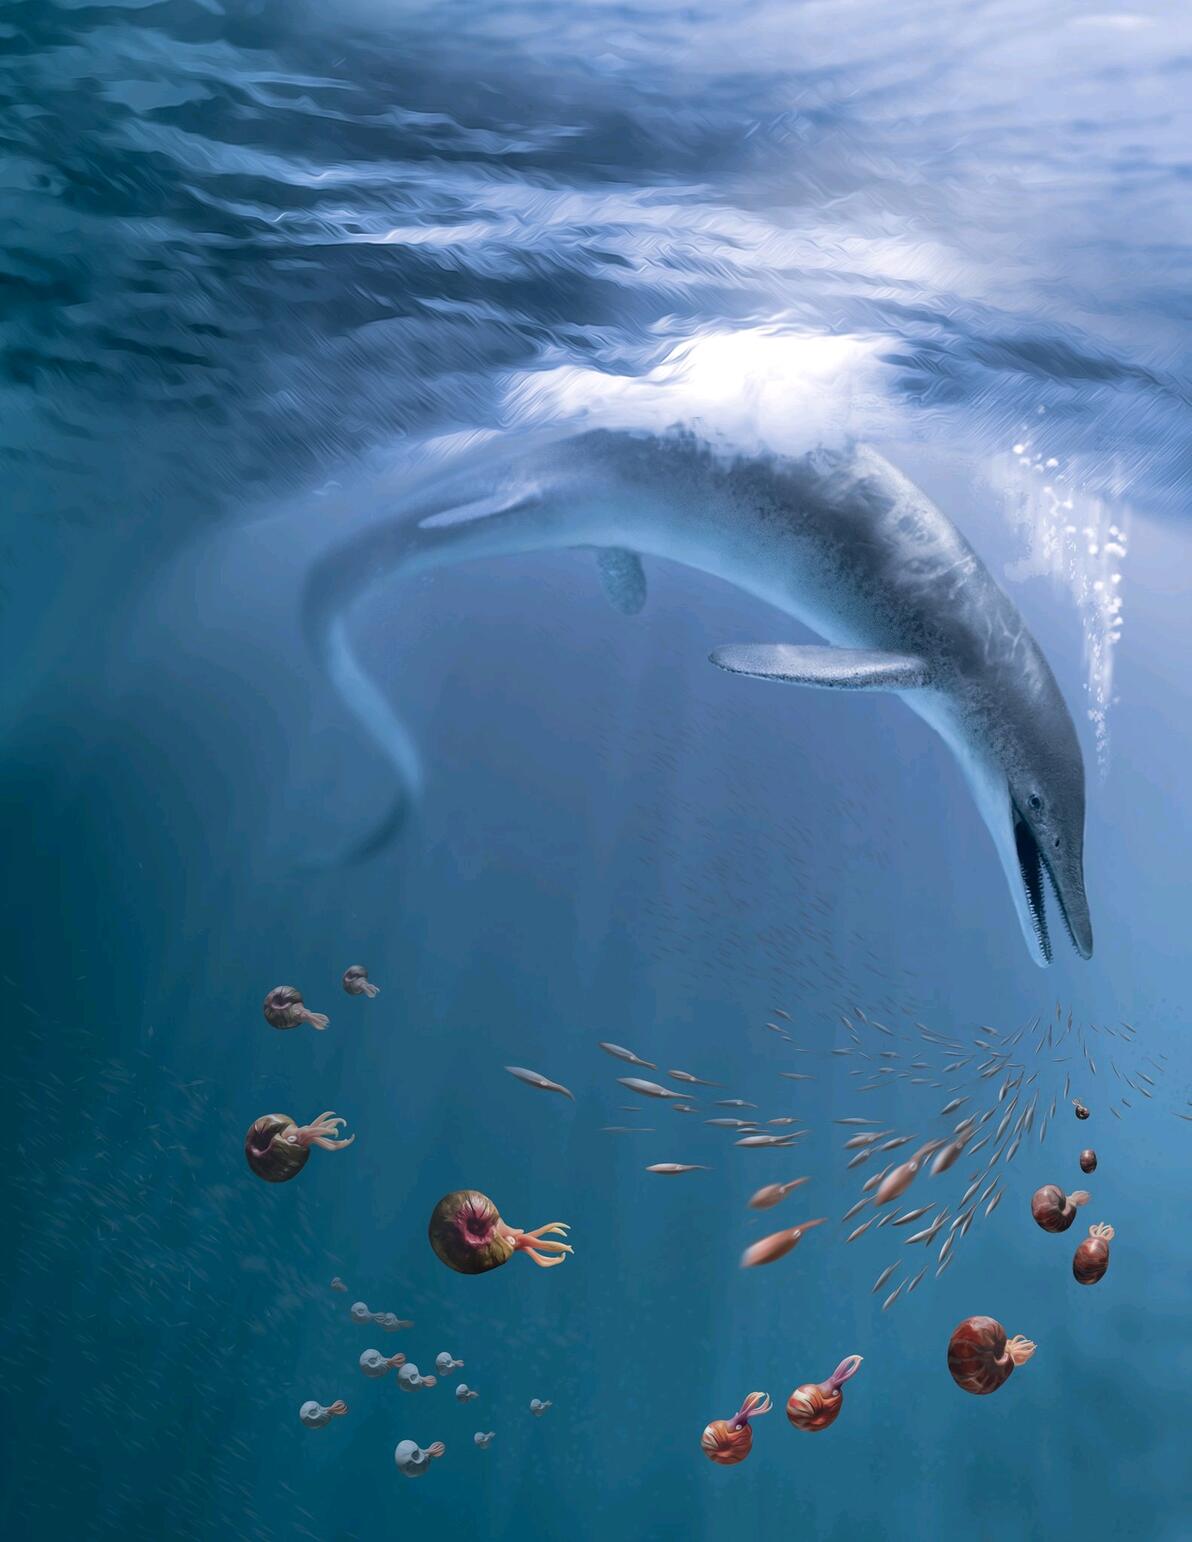
在他的建属论文中描述道“他的身体很可能与抹香鲸一样大,体长足足17.6米,而海帝鱼龙身长仅8.6米。在现代海洋中,许多巨型鲸鱼是以巨量的鳞虾和其他浮游生物为食,但是在鱼龙的时代,养活巨型鲸鱼的现生浮游生物并不存在,这可能表明那些古老没有足够的能量支持如此庞大的捕食者。为此,科学家构建给杨氏杯椎鱼龙所处地层的食物网,当地有着丰富的菊石提供足够的能量来支持庞然巨物。但是杨氏鱼龙可能并不直接以菊石为食,因此科学家们提出了一个脑洞大开的观点:杨氏杯椎鱼龙捕食除海帝鱼龙的所有鱼龙。”
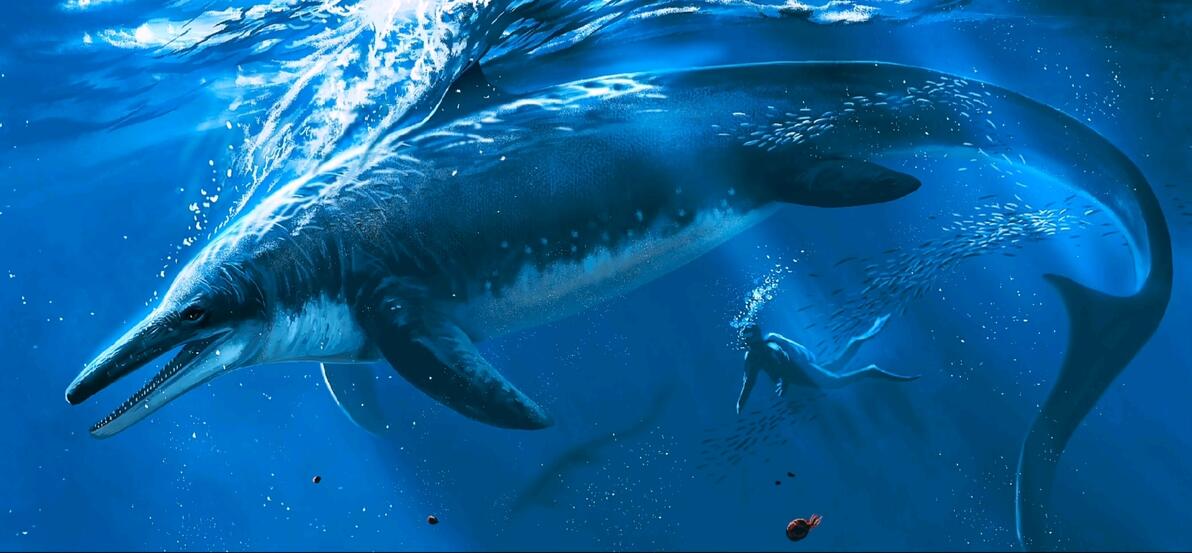
然而,论文描述的估算方法也是漏洞百出。目前杨氏杯椎鱼龙的化石材料跟海帝鱼龙正模的尺寸拉不开差距,不考虑化石变形的情况下,海帝正模FMNHPR3032保留下来的鼻孔后的头骨部分(>93厘米)甚至还要略长于杨氏杯椎鱼龙正模(91厘米)。两者的颈椎长度也没有明显差异(海帝约60mm vs 杨氏58-62mm),只有在颈椎高度上明显大于海帝正模(海帝约100mm vs 杨氏约130mm)。而海帝的8.6米是最保守的估计(实际上不可能,海帝的头骨如果只有1.2米那复原图根本就没法画出来,所以在描述海帝体型的时候用的都是>8.6米),而杨氏的17.65米是基于肱骨尺寸的非常粗略的大致估计(95%置信区间 12.48至24.96米),最滑稽还是这里面的作为体型估测参考的尼科尔杯椎鱼龙的体长本来就是基于佩里诺杯椎鱼龙混合选模UCMP 9950 + UCMP 9947(全长>9.1米)估算的,在这里居然拿来反推了佩里诺杯椎鱼龙UCMP 9950,而且体型比此前对化石的认知要要大上许多(估测居然有12.5米,要知道UCMP 9950与海帝正模头骨保留部分相同的位置只有海帝的57%)。
杨氏杯椎鱼龙的质量估测也并不是本文中独创的计算方式,而是基于Gutarra et al. 2019关于鱼龙形态与水力学研究的推算,如果基于这个研究计算的话21米长的西卡尼可以达到惊人的81.5吨,这是因为该研究里大型鱼龙的模型就是基于通俗肖尼鱼龙构建的,西卡尼在研究中经常被算作肖尼鱼龙属,所以就直接通过肖尼鱼龙放大了,自然质量变得巨大无比,也间接导致了杨氏杯椎鱼龙的估算过重。
而如果考虑到可能相似的头骨的大小和牙齿形态上的差异(海帝带有明显切割边缘的扁平牙齿齿冠>5cm,杨氏钝圆突型牙齿最大牙齿齿冠3.7厘米),海帝鱼龙的猎物尺寸反而应该是比杨氏杯椎鱼龙明显要大的,虽然不可否认的是杨氏杯椎鱼龙的捕食能力确实很高,但是在研究里并没有深入形态生态学与食性,只是粗略地默认模型中的鱼龙能捕食不到自己体重一半的猎物,那自然被估测到四十多吨的杨氏杯椎鱼龙能吃整个地层里的其他所有物种。
而在此后的时间当中,鱼龙也迎来了他们演化史上第一个空白期,目前我们还不得知晓期间发生了什么,导致于鱼龙种群在短时间内崩溃,但就是在这么个鱼龙本该短暂走向低谷的空白期中,却迎来了鱼龙的体型巅峰,如果说之前的杨氏杯椎鱼龙是使用了卫星大法,那么萨斯特鱼龙科才是真正比肩巨鲸的庞然巨物。
被误解的饕餮
自鱼龙开启他们的远洋征途之时,便与头足类产生了难舍难分的演化之旅。就像BBC展现的那样,广漠的海域中捕捉鱿鱼的鱼龙们划过道道弧线,流线型的身躯洋溢着生命的张力。但如此热爱头足类的他们怎么也不会想到,一亿年后的智人将此作为一种调侃式的话题去大肆宣扬。
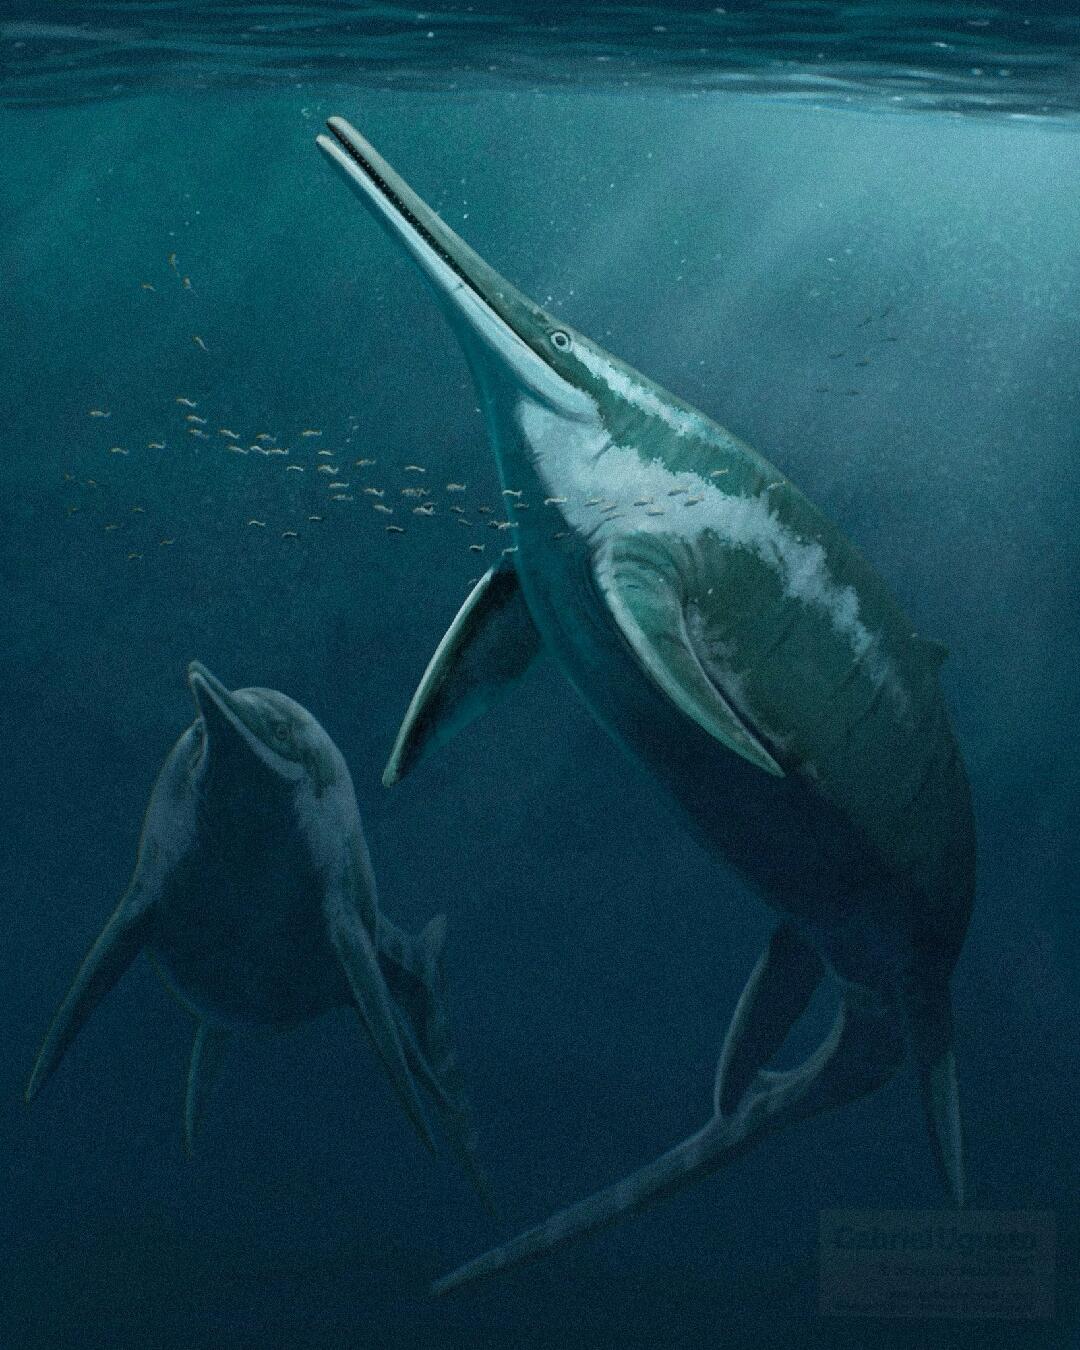
不知从何时起 ,互联网上便流传着“嘬鱿鱼”的说法。早些年,秀尼鱼龙因为尚未发现牙齿化石,而被推测为满口无牙,特化捕食头头类的吸食性主义者,搭配上某位知名百大up那中二又充满激情的解说,不明事理的斗兽小鬼们便给鱼龙扣上了“鱿鱼就会败北”的帽子,但在2016年的简报中已经提到,秀尼鱼龙拥有带有切削刃的牙齿。并且鱼龙的舌骨结构也不支持采取吸食的捕食方式。
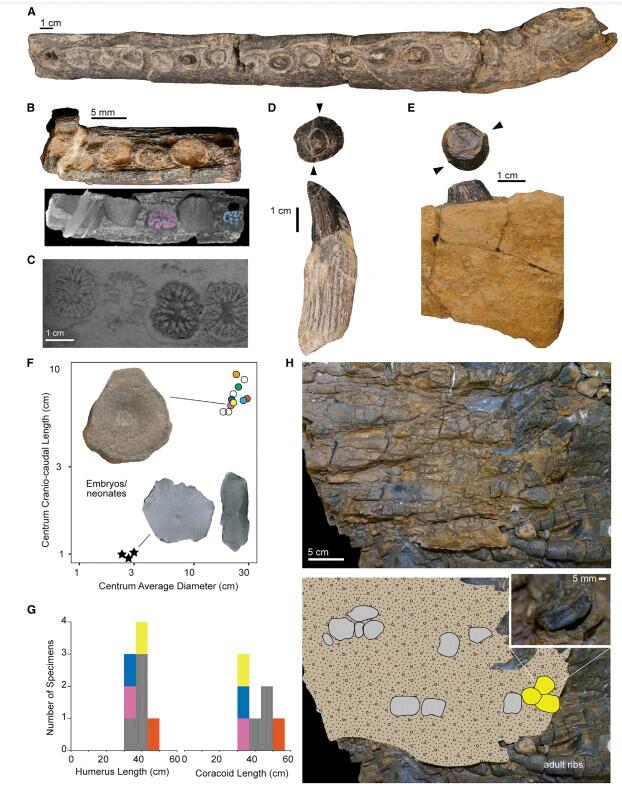
最近,关于秀尼鱼龙牙齿的正式论文发表,强调了其切割能力,并认为它是巨食性的掠食者,其食谱中至少包含部分大型脊椎动物。尽管秀尼鱼龙的牙齿擅长切割,但之前在其胃内容物中发现了软体动物的硬壳,这表明它的食谱涵盖了多个营养级别,不仅仅吃大型动物,也不仅仅以鱿鱼为食。比起温和的巨鲸,它更像是一个被误解的饕餮,来者不拒。
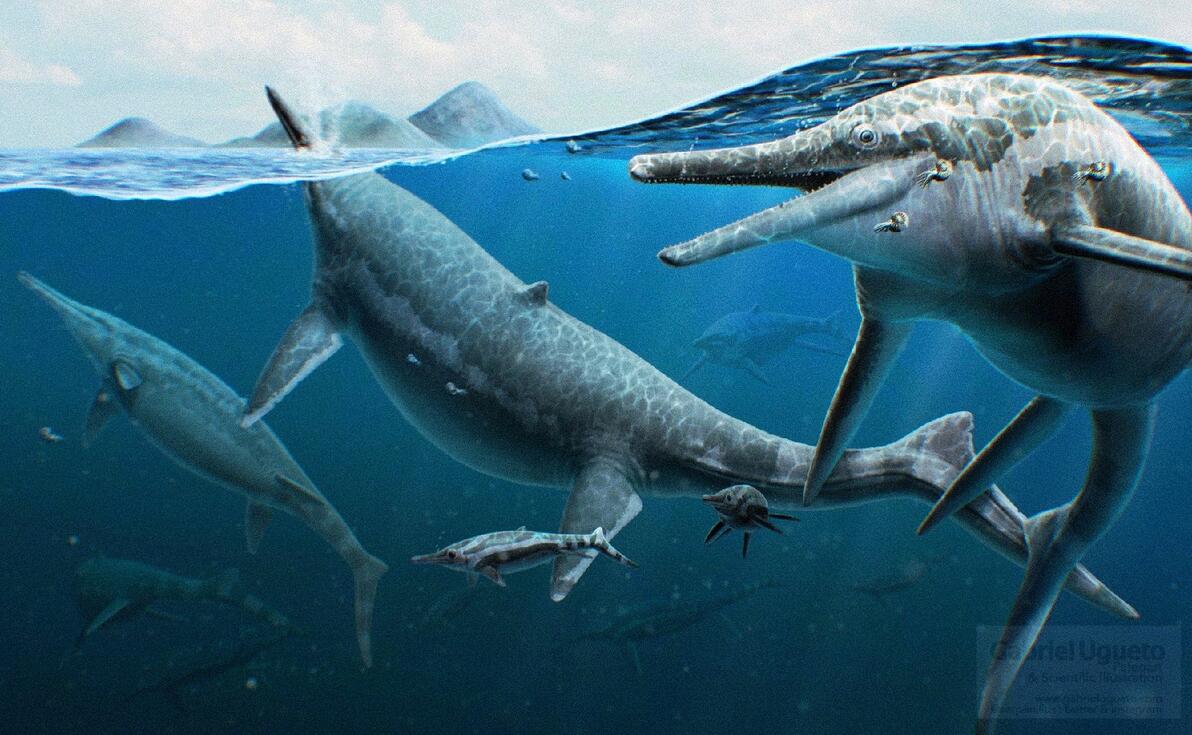
秀尼鱼龙在生态系统中扮演了重要角色。它们的化石发现地点位于美国西岸的西联峡谷,这里有一个神秘的鱼龙墓地,埋葬着许多秀尼鱼龙。研究发现,这些鱼龙并不是同时死亡的,而是年复一年地出现在同一片海域。这表明西联峡谷很可能是秀尼鱼龙的繁殖地。
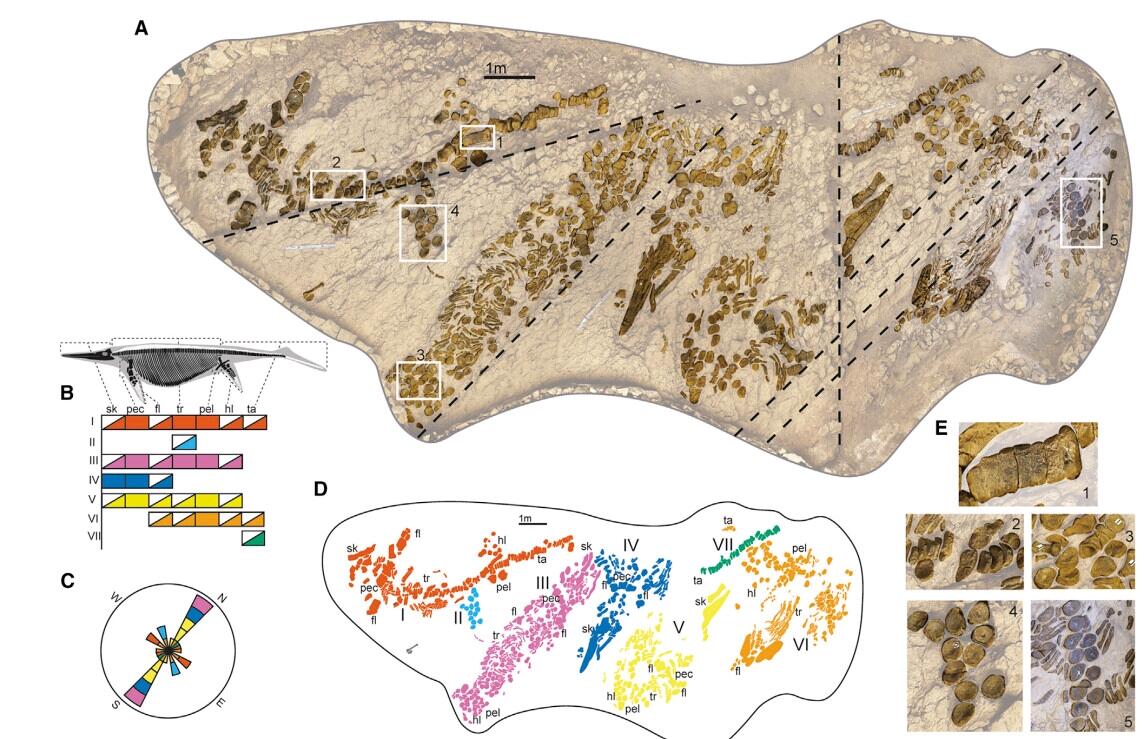
然而,科学家并没有在该地区发现秀尼鱼龙的潜在猎物。因此,他们推测秀尼鱼龙需要进行频繁的迁徙,以寻找食物。类似于今天的候鸟,秀尼鱼龙可能会在不同的季节和地区寻找不同种类的猎物。这种迁徙将不同地区的生态系统联系在一起,使秀尼鱼龙对当时的海洋生态系统具有重要作用。
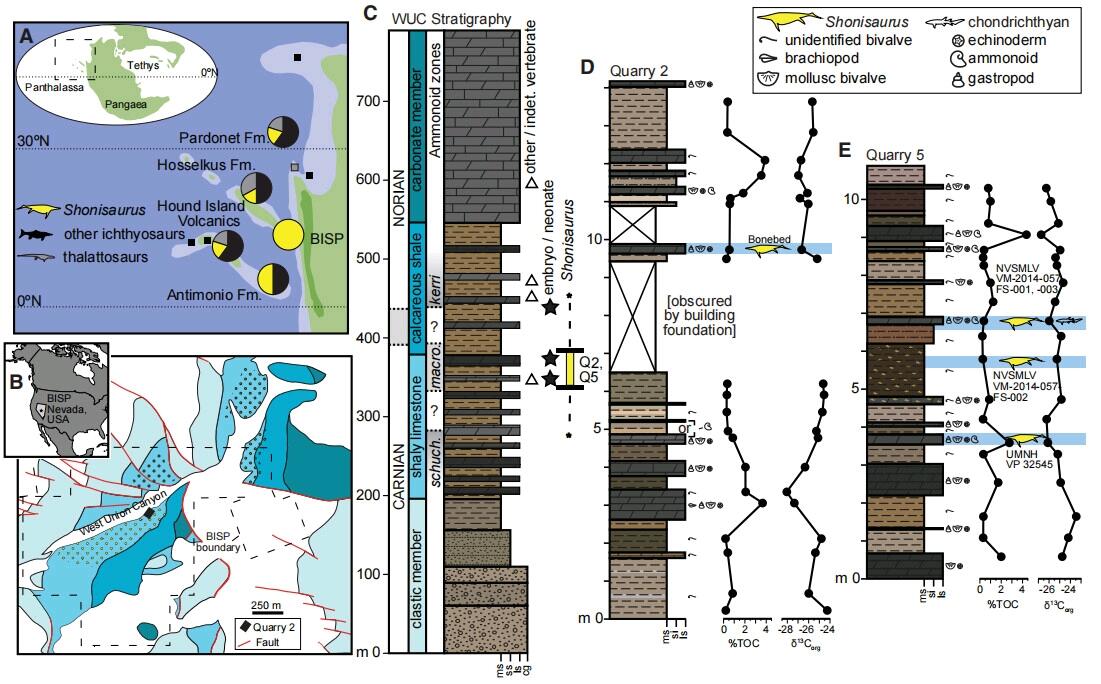
当他们消逝之时,其躯体便滋养着海洋深处的生物,像如今的鲸落那样构成独特的生态系统,形成“一鲸落,万物生”的场景。
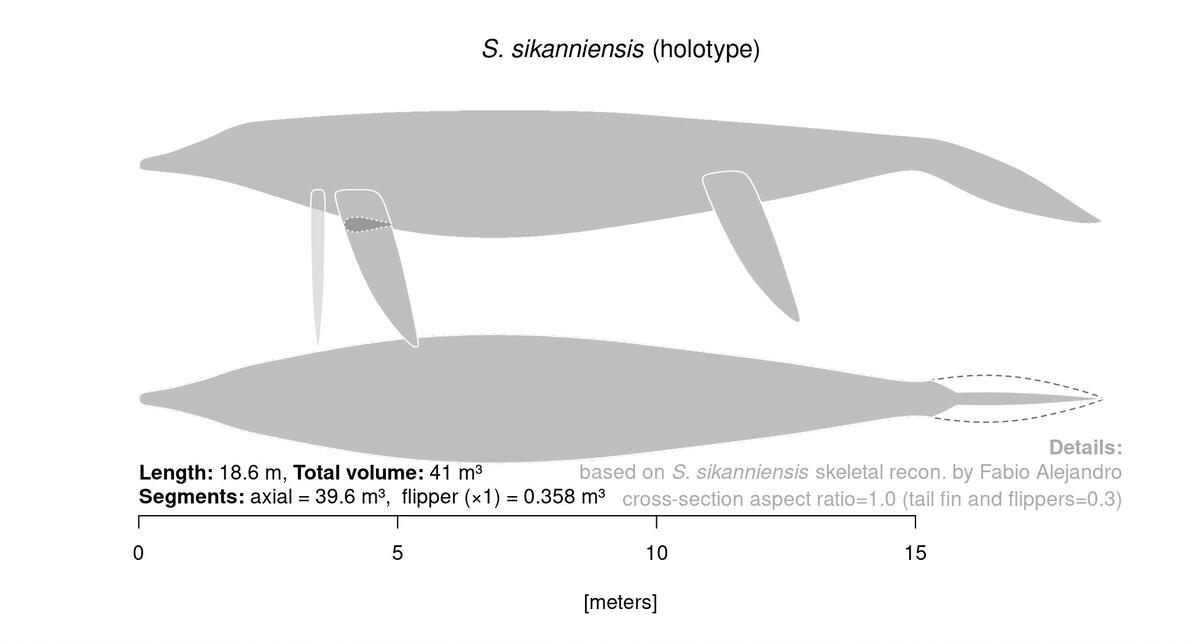
而体长约21米的西卡尼萨斯特鱼龙就没有那么幸运了,尽管西卡尼的正模标本保留了大半个身体与后半个头骨,但是他们仅存的尾椎被当时化石保存的环境移动过位置,因而长度可能会有水分。不过比起他们的大小,他们的食性更是令人捉摸不透。目前,萨斯特鱼龙科的头骨形态主要有四种,他们各具对不同生态位的适应,而西卡尼萨斯特鱼龙正是其中最为特别的一种——头骨呈三角状且口中无牙。
它的特殊性以至于让人们推测不出准确的捕食方式。鱼龙的叉舌骨并不发达,难以吸食。更何况他们的头骨化石中没有发现像湖北鳄那样类似鲸须的附着点,因此难以往滤食生态位上发展。尽管尾椎的位置时略有移动,但它们的尾鳍形态依然不适合往高速上发展。这让他们的捕食方式成为了谜 。
由于科内成员形态多样,一些分类上的谜题也由它而生。其中“喜鱼杯椎说”便是典型的例子。
说起这种现象,就不得不提一下“长枝吸引”了。长枝吸引(Long Branch Attraction, LBA)是系统发育分析中的一种常见现象,它指的是在构建系统发生树时,由于某些类群的进化速率较快,导致它们在树中的位置不准确地靠近彼此,即使它们并没有很近的亲缘关系。
这种现象通常发生在快速进化的类群(即长枝)之间,因为它们在短时间内积累了大量的变化,这可能导致它们在基于序列相似性的分析中被错误地归为一类。
长枝吸引效应的形成原因主要是由于最相似的支系优先被群组在一起,而快速演化的支系(即具有长枝者)则被排除并被分成一群,这常导致产生错误的结果。
为了减少长枝吸引效应的影响,研究者可以采取多种策略,例如增加样本以打断长枝,或者使用演化速率较慢的特征替代。此外,还可以通过使用不同的系统发育分析方法(如最大似然法或贝叶斯法)来减少LBA的影响,并通过增加分类元、合并多个独立数据集以及使用相对不易产生长枝吸引的分析方法来构建更可靠的系统发育树。喜鱼和海帝的头骨都算不上完整,反映掠食习性的牙齿特征自然会占到相对较大的权重,这时长枝吸引效应就会自然而然将两者拉近。
萨斯特鱼龙科的谜团仍待我们探索,想着那重重的山峦,远眺那一亿年前的海岸。在波涛之间回荡着的是巨龙们的低语,透过未知的迷雾,我们终将理解……
喜山有鱼,其名为鲲
“那只是一个寻常的现象,
没有个性,没有例外。
遮挡它遥远的余晖,
重现原始的黑暗。
然而,
可怕的不是黑暗。
而是人们习惯了黑暗,
便相信了他的永恒。”
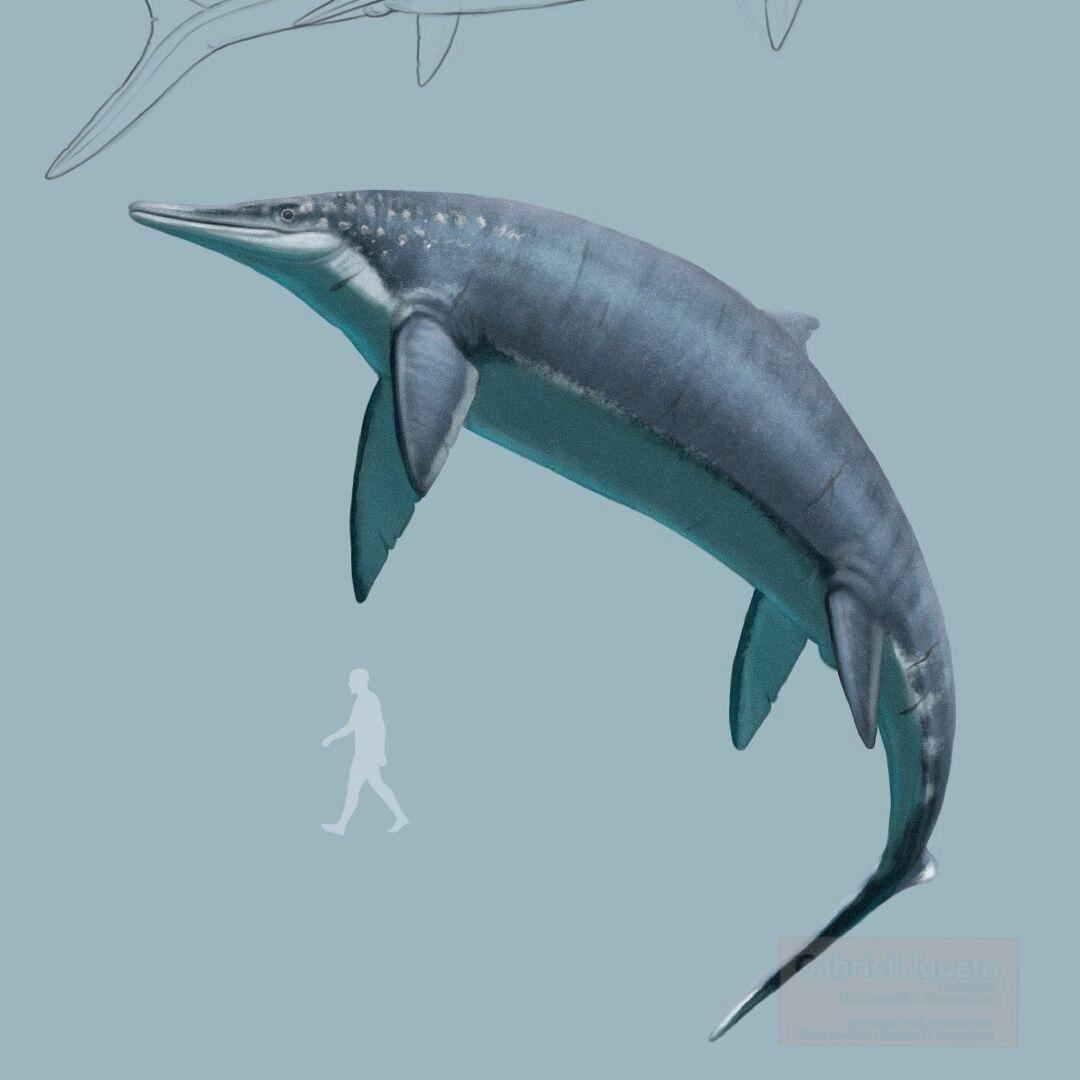
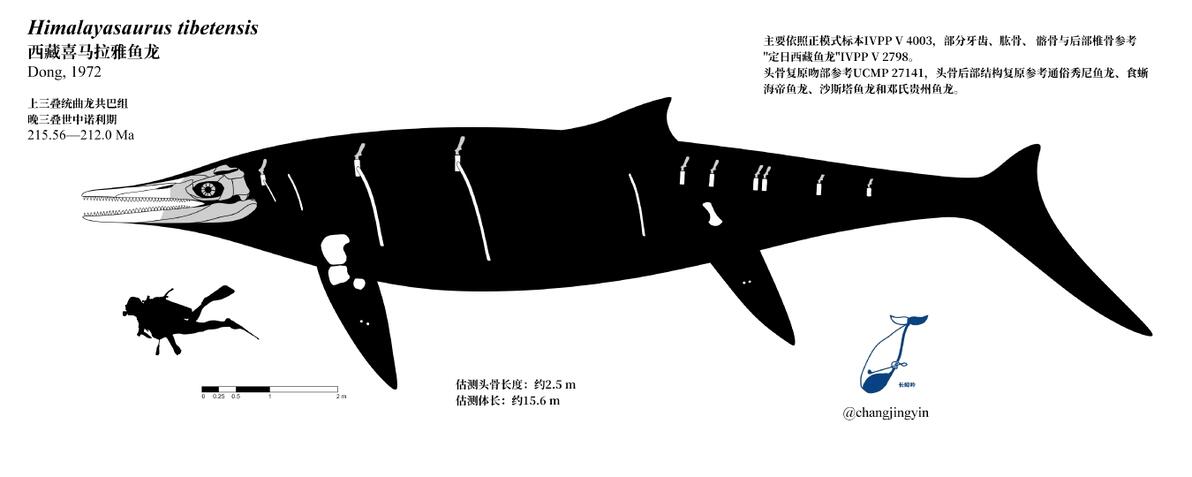
你是否听说过这样的传闻,我国的喜马拉雅曾经横行着一群身长20米血盆大口、满嘴尖牙的鱼龙。他们专吃大型海爬,永世不嘬鱿鱼。甚至被夸张到能与梅鲸巨齿鲨相提并论的地步。
最开始,人们的脑洞只是将食蜥海帝鱼龙的脑袋放大到3米后p到了海王龙身上,再插了个鱼龙的鳍,就大致搞了一个缝合怪版的喜鱼初稿作为极端上限。但令人忍俊不禁的是,有人将其当成了下限。
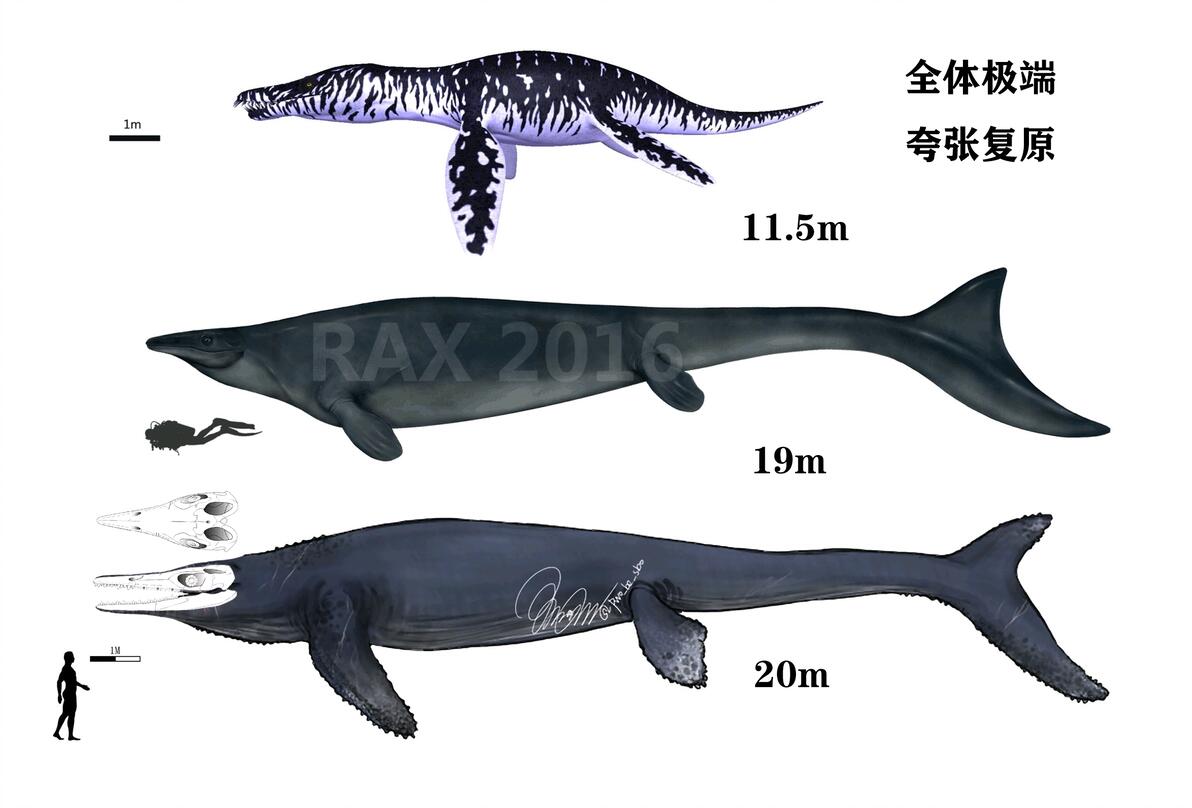
直到战斗型喜鱼复原出炉,并广为宣传,便给喜鱼未来的神话之路打下了外形形象上的基石,从此它的名声越来越大,但是这种彻头彻尾的民科,扭曲正常科普秩序所谓的“名望”有何意义呢?!在各路阿婆主的宣传下,那个“身长20米、血盆大口、满嘴尖牙、专吃大型海爬、永世不嘬鱿鱼、能与梅鲸巨齿鲨试比高”的神兽大鱼龙掀起了一波斗兽狂潮。(除了某位百大up上一秒说喜鱼是血盆大口,满嘴尖牙,下一秒反嘴一个只嘬鱿鱼)
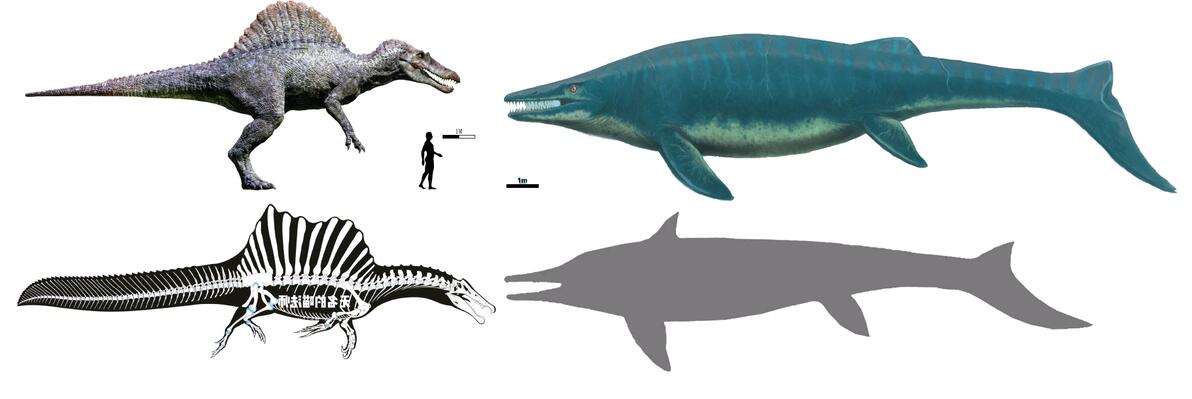
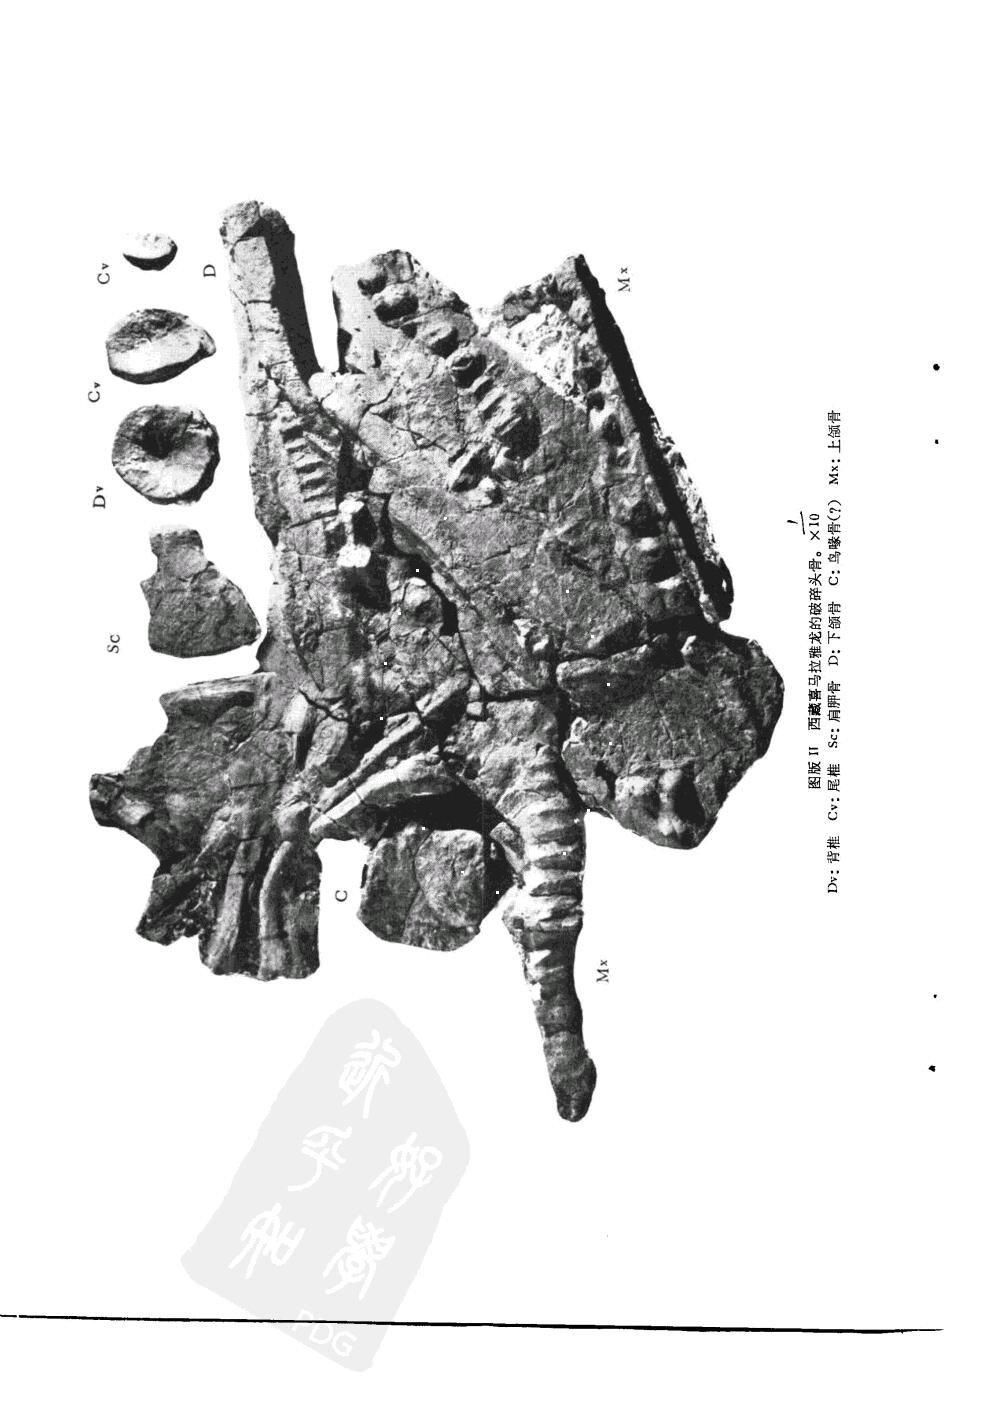
早些年,因为疫情原因暂停了继续寻找喜鱼化石的计划,导致喜鱼的有效性受到争议。当年喜鱼正模的头骨化石散成一团,后脑勺完全没有,仅剩下前上颌骨、左侧颌骨、右侧颌骨残段,和几颗牙齿。
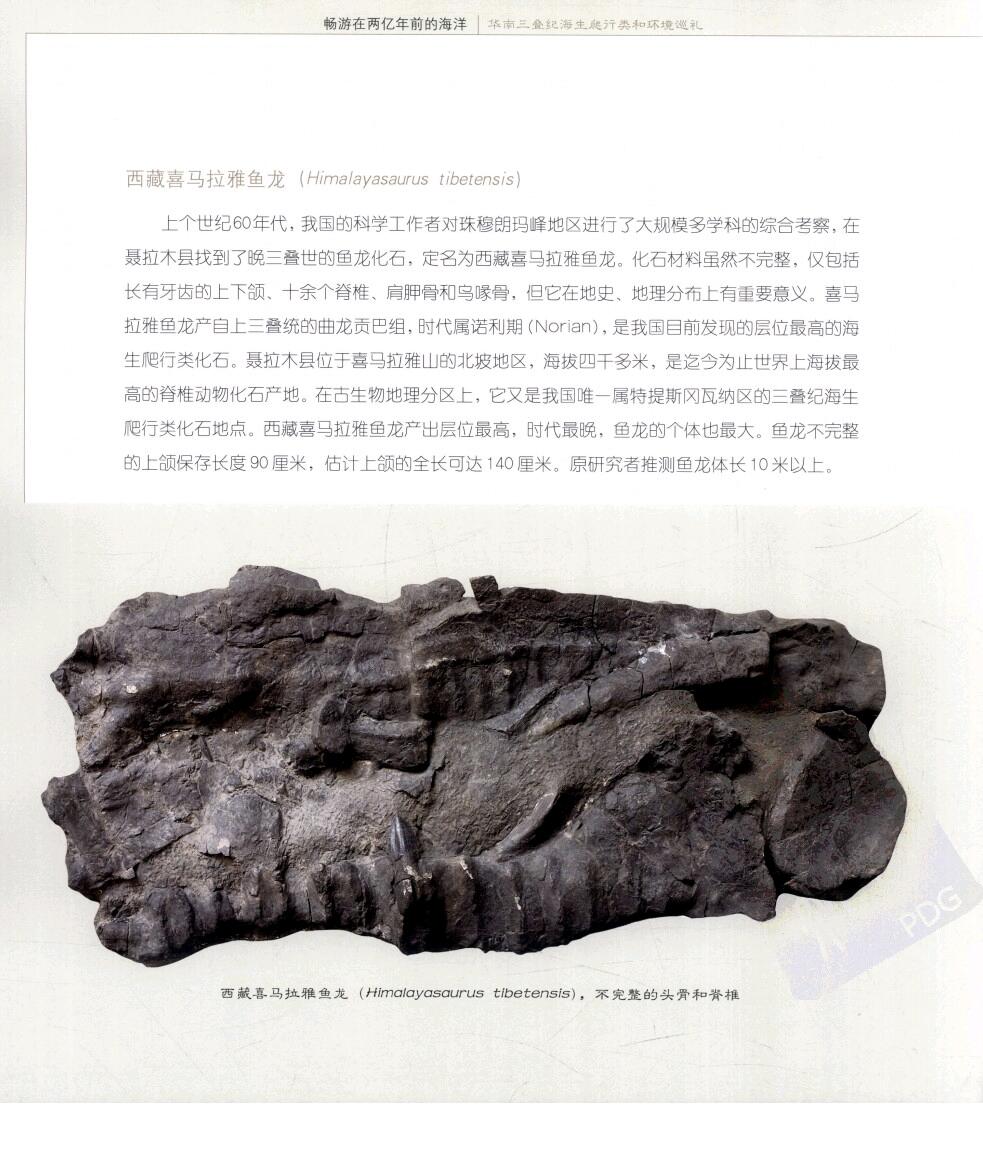
尽管带有切削刃的牙齿显现出他绝不是个善茬,但是受疫情与科考限制的影响,他的正模化石保存的十分稀碎,颈部椎体13枚,部分肋骨,部分尾椎和部分前肢体,充满了不确定性。但微妙之处就在于越是这样飘在云里的存在,越是能得到无数斗兽者的追捧。
不过幸运的是,疫云散去,喜马拉雅的科考之旅得以继续进行。2023年1月30日在中国科学院古脊椎动物与古人类研究所所长邓涛和研究员倪喜军的带领下,考察队集合了不同研究方向的科研力量队伍,终于在定日县岗嘎镇有了重大突破和发现,在岗嘎南部三叠纪曲龙共巴组的至少三个层位的岩层中,发现了脊椎动物骨骼化石。
从骨骼结构上判断,它们正是大家寻找了很久的大型鱼龙化石。在4月开展的更进一步的考察中,科考队在聂拉木土隆、318国道的62号道班等多处的曲龙共巴组地层中都发现了鱼龙化石,除了较大型的成年的鱼龙化石骨骼外,也发现了小的、纤细的肋骨,可能是喜马拉雅鱼龙幼体的化石骨骼或小个体的鱼龙新类群。人类脊椎骨横截面大小大约相当于一枚一元硬币,而新发现的喜马拉雅鱼龙脊椎骨横截面有一顶棒球帽那么大。
2024年9月,喜鱼正模IVPP V4043在众人的期待下清理完成,化石材料中椎弓的形态更加接近于萨斯特鱼龙类,也算是破除了喜鱼分类上的一道迷雾
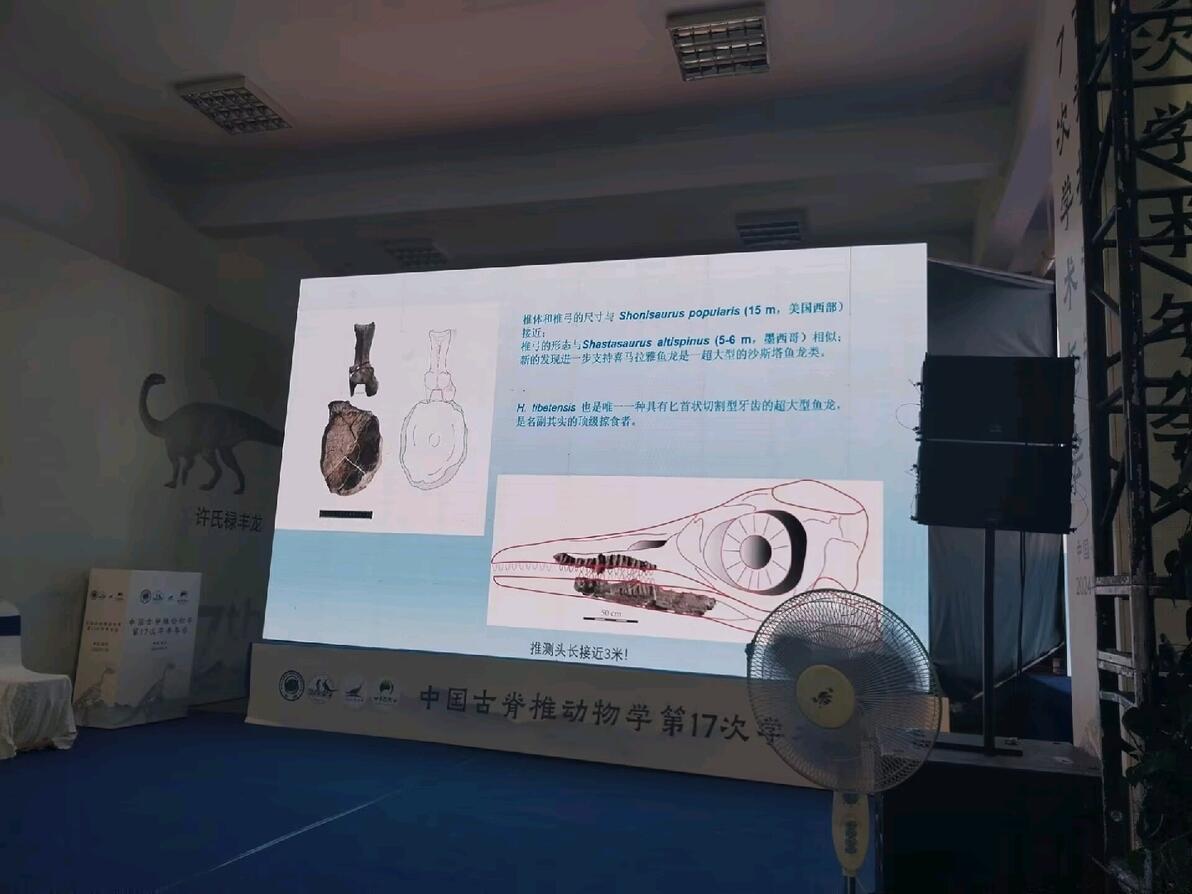
2.15亿年前 三叠纪晚期,正值鱼龙演化史上第一个空白期,世界各地的鱼龙化石几乎都碎得跟乐事薯片似的,这个时期大多数鱼龙分布在北半球,只有像喜马拉雅鱼龙等少数鱼龙分布在南半球,尽管不及海帝鱼龙那么特化掠食性,但在其生境成为顶级掠食者也是绰绰有余。
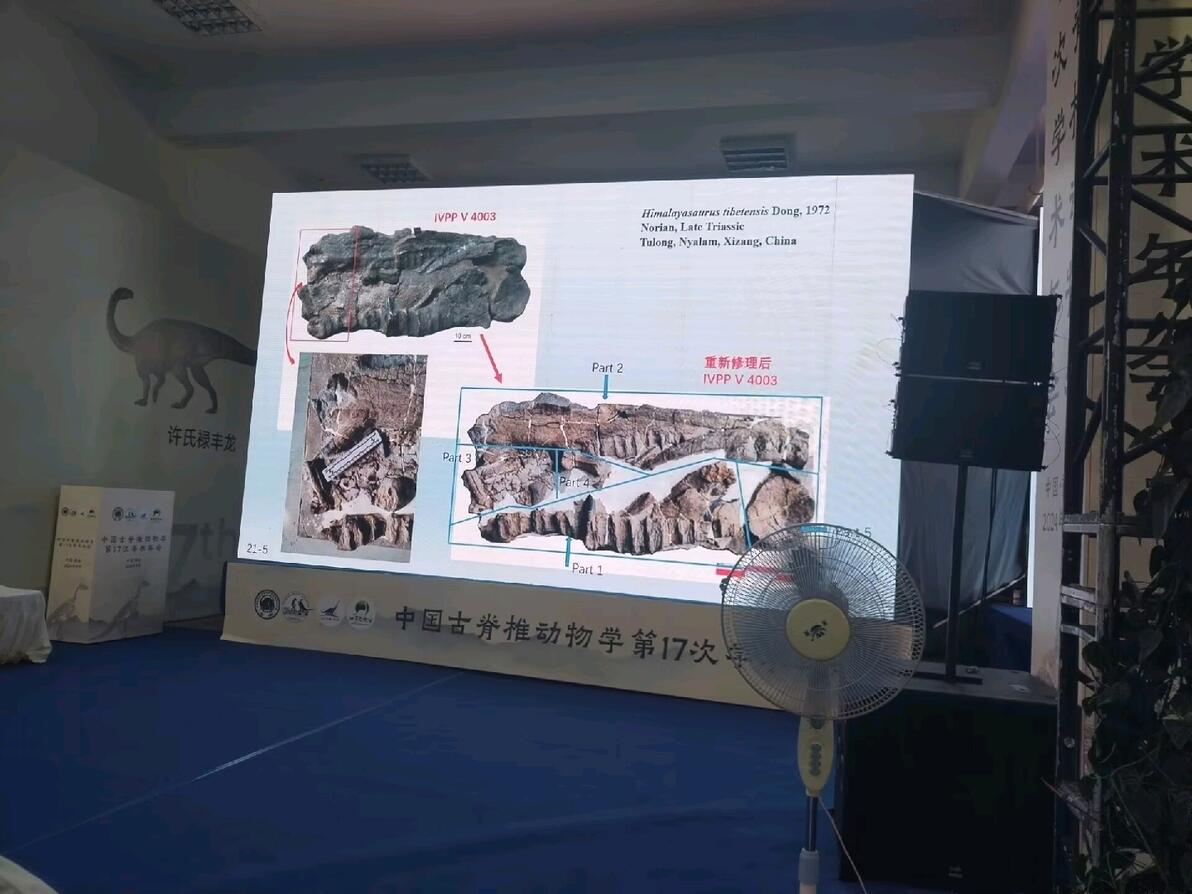
在亿万斯年的时间长河之中,他们的化石经历了中生代我国西南部反复的海侵海退,然后又被印度板块撞击被撞到海拔几千米,能保存到现在的化石真是凤毛麟角。西藏这种地理环境,化石发掘也很困难。或许那时候曲龙共巴组比我们想象的更为富饶。
“北冥有鱼,其名为鲲”,本该属于那一片深邃蔚蓝之中的巨鱼,依然是那片水域独一无二的猎手,只是被自诩“爱国”的小鬼们推向了不该有的高度,他们经历沧海桑田,在群山之巅中默默等待着一切真相的揭晓。
泰坦悲歌
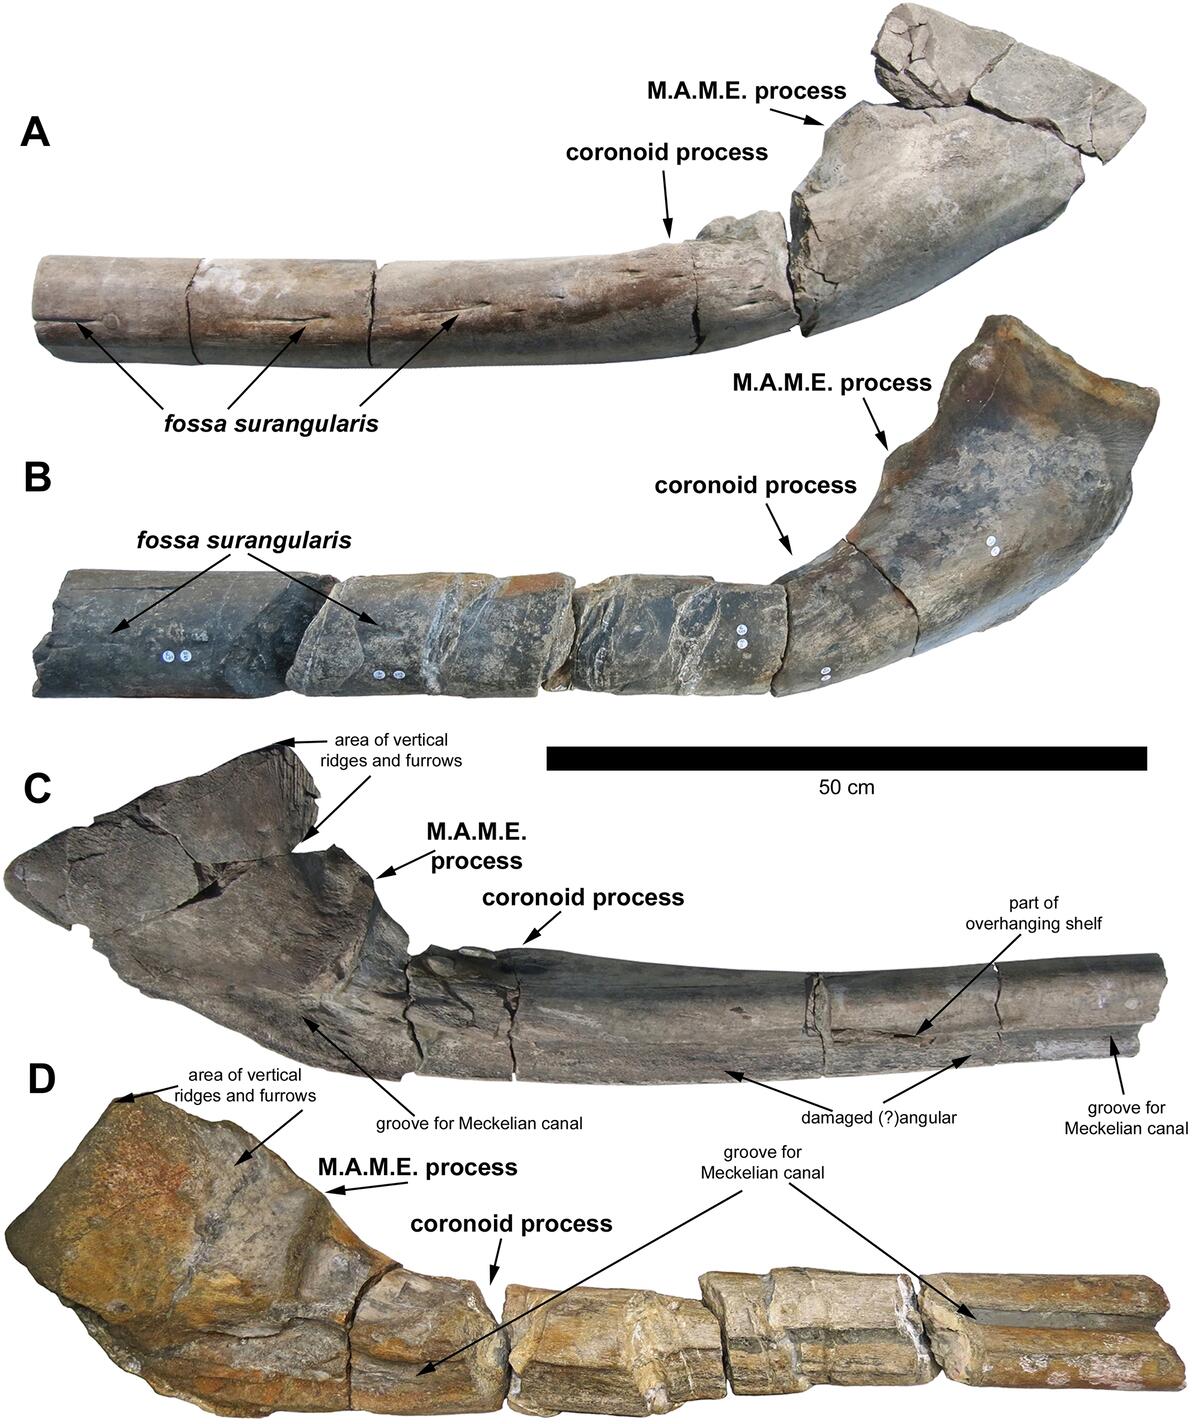
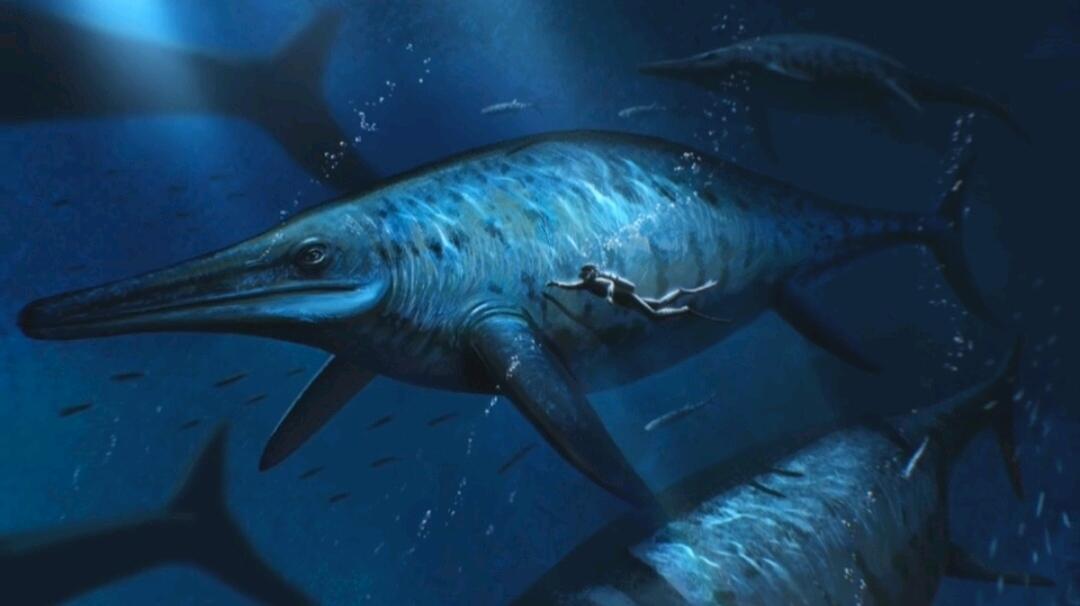
英国萨默塞特的海滩上,时间的沙漏悄然倒置,揭示了一段被遗忘的历史。2020年5月,学者们在这片古老的海岸边,发现了一块非同寻常的化石——一块长度超过两米的巨型颚骨,编号BRSMJ-CG3178。这块化石不同于常见的压缩龙件,它保存了三维结构的完整性。
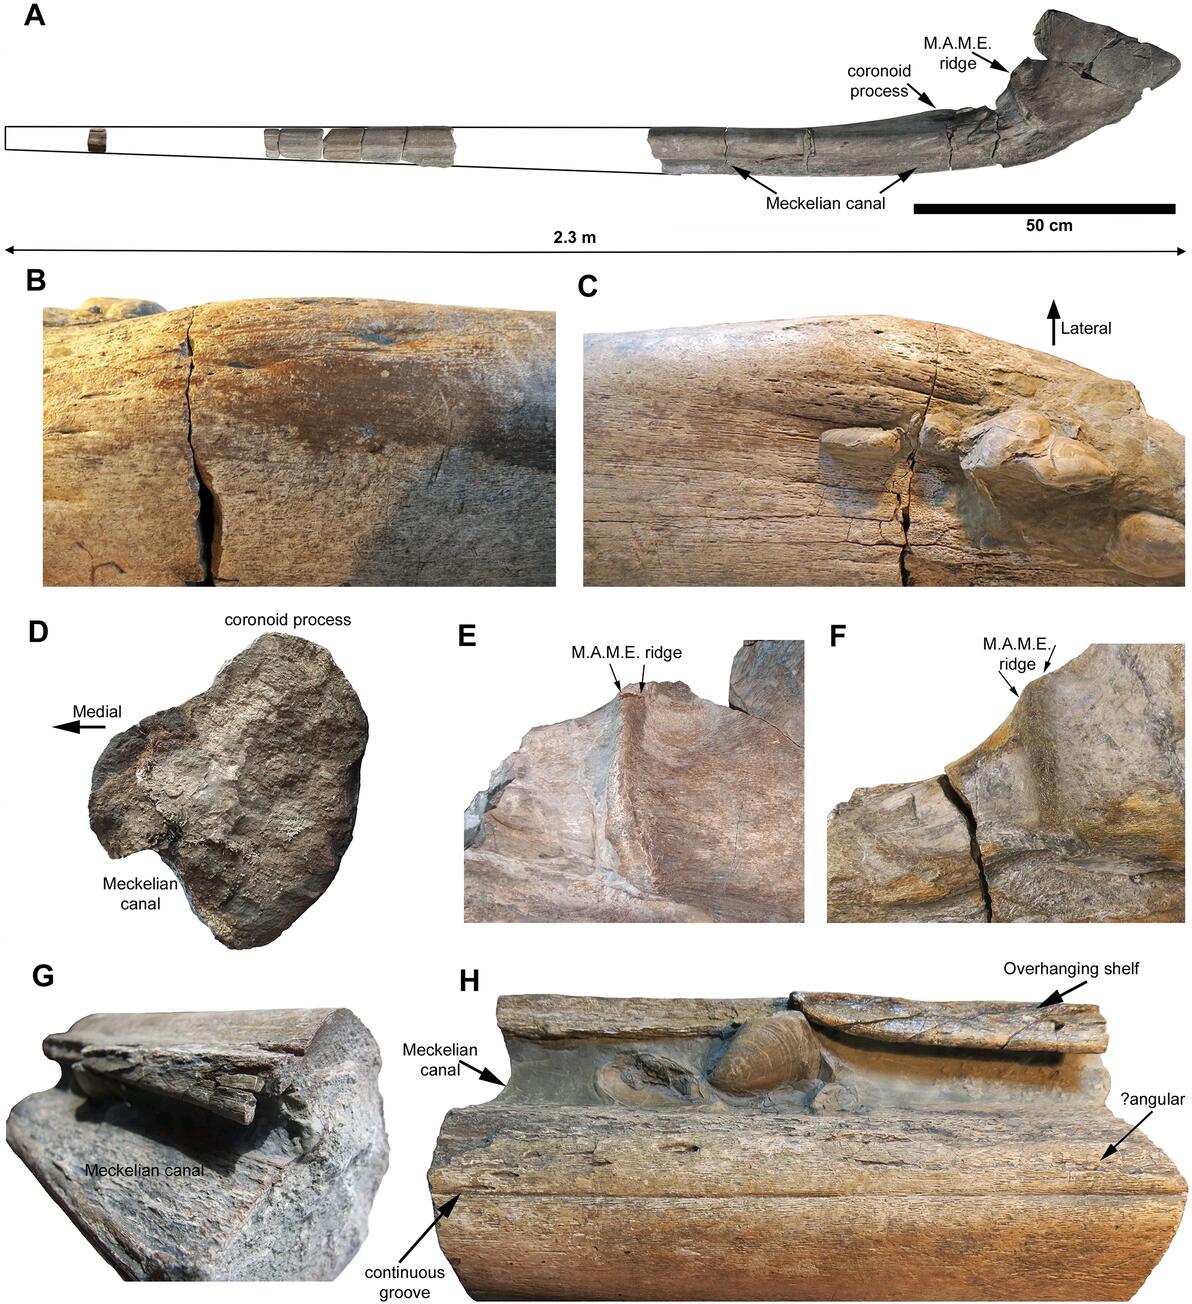
显微镜下,化石切片呈现出纵横交错的纤维,其排列图案与西卡尼萨斯特鱼龙的特征惊人相似,而这一独特标识在其他动物身上从未被发现。这些线索引导着科学家们,他们最终确定这块下巴化石属于一个全新的物种——塞文泰坦鱼龙(Ichthyotitan severnensis)。其属名融合了希腊语中“鱼”与“巨大”的含义,而种名则向其发现地——赛文河,致以敬意。
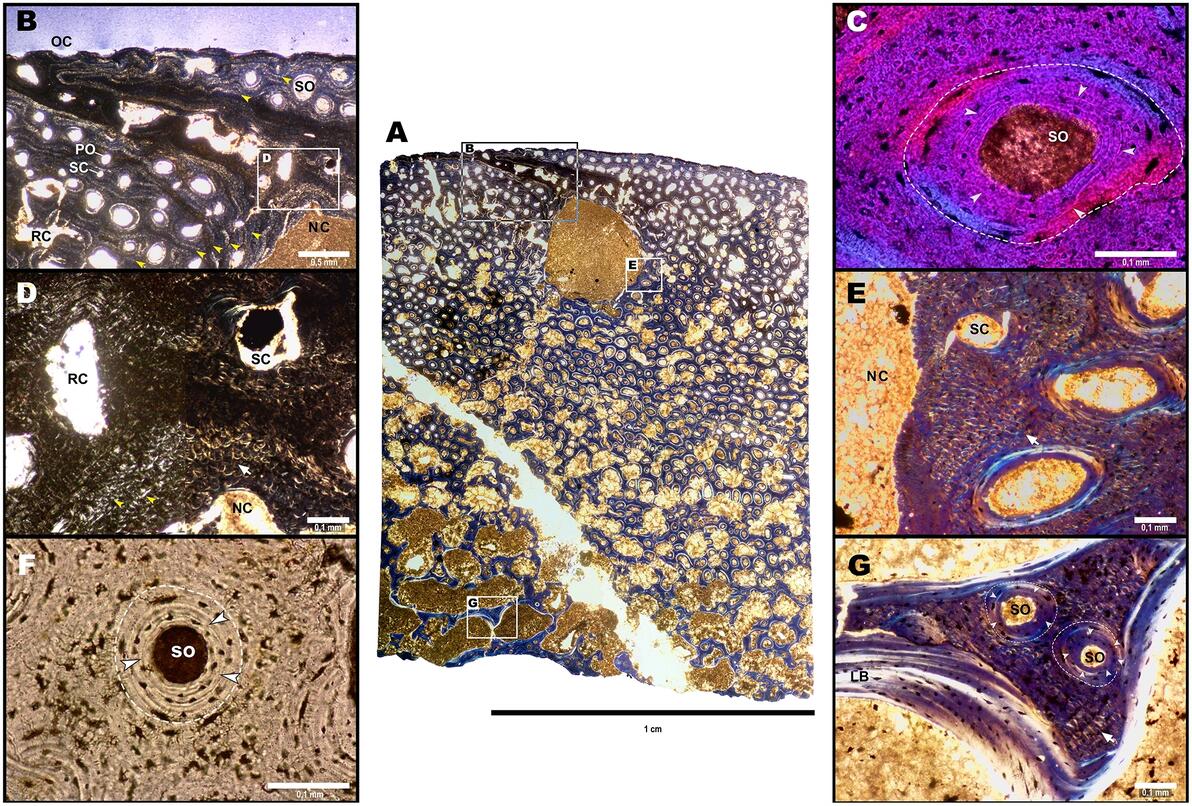
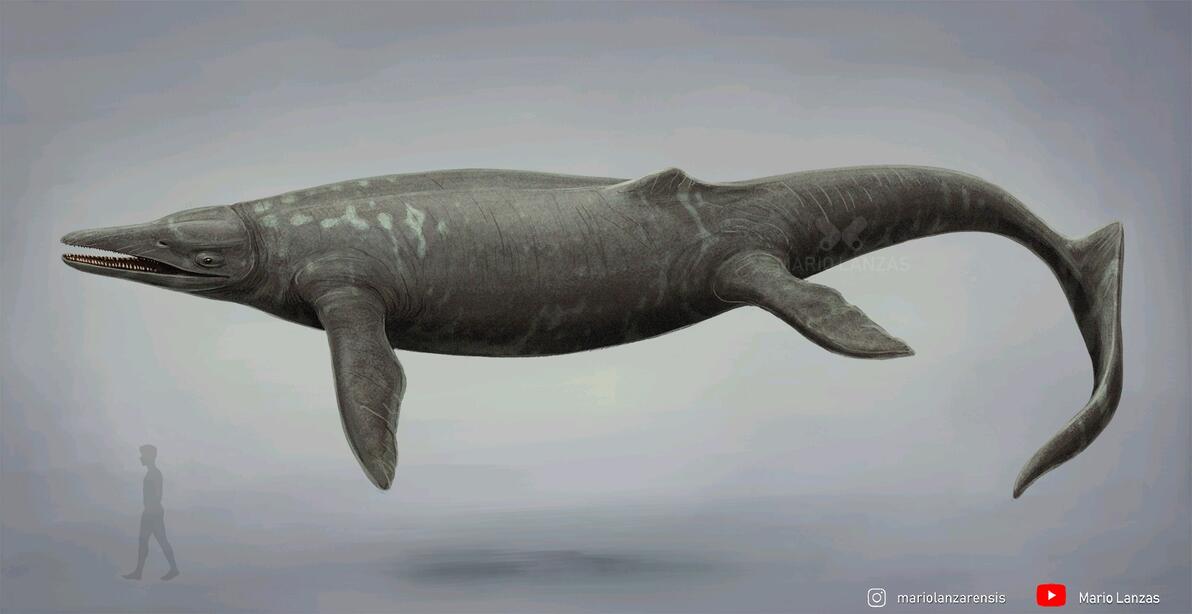
虽然巨鱼龙的化石极其零碎,但不难推测它是一种体型相当大的鱼龙。与西卡尼萨斯特鱼龙一样,因为化石极其不完整,从而推测不出它们的食性。但比西卡尼萨斯特鱼龙更扑朔迷离的是,赛文泰坦鱼龙的复原图连参考对象都没有选择明白。从已知化石来看,他们较为细长的吻部相比蓝鲸那样的滤食者还是太窄了,难以支撑如此巨大的体型,虽然保留了三维结构但他们的肋骨并不完整,且萨斯特鱼龙科的体态多样,换一个参考对象体型就大有不同(假设夹板骨2.2米,那么放喜鱼的下颌海爬也能出一个百吨级的掠食者了),但是下限至少是秀尼鱼龙的体型,更何况骨组织研究显示:它死时处于仍然可生长的亚成年或早期成年阶段。
考虑到其体型和年代,科学家认为它属于萨斯特鱼龙科(Shastasauridae)。其形态特征包括上隅骨末端几乎90°的上弯,冠状突轻度突出,此处的截面呈亚圆形等等。
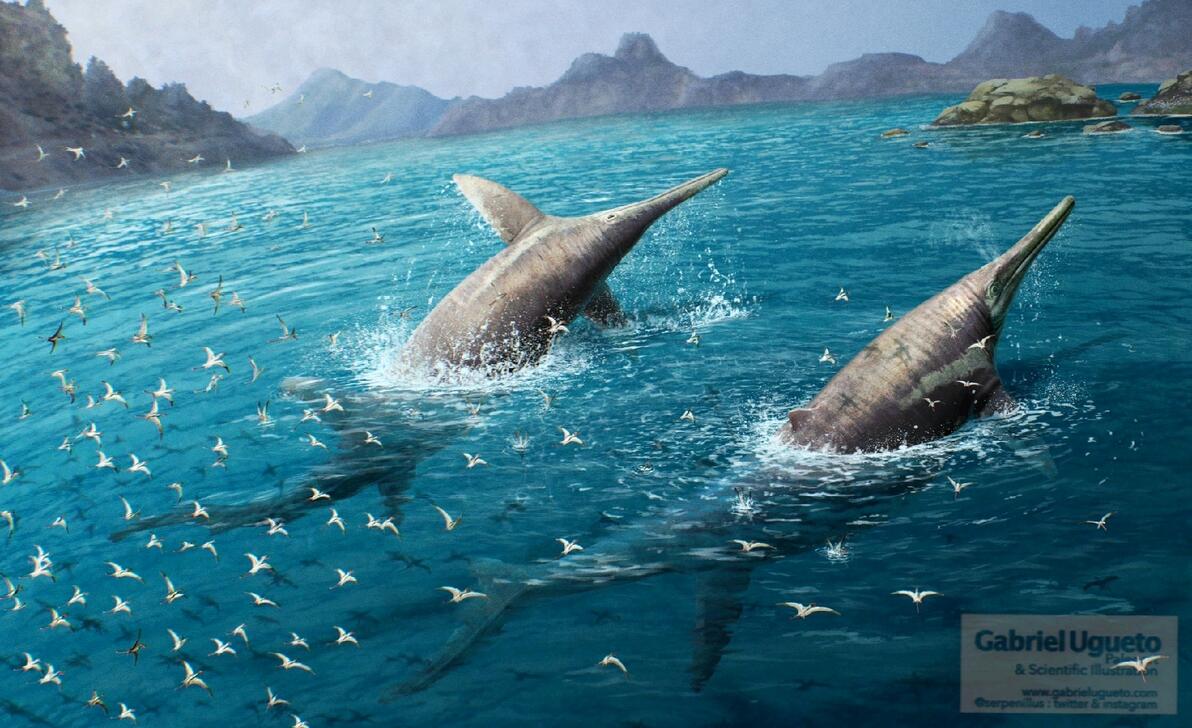
年代分析显示它生存于距今约2.02亿年前,表明它是最晚的巨型鱼龙类之一,而与其它已命名的巨型鱼龙类显著的年代差异也是科学家认为它是独立物种的原因。而来自奥斯特巨型鱼龙类样本也因为过于破碎无法被归为巨鱼龙属。
然而,就在晚三叠世这个鱼龙巨型化的时代将迹,遥远的岛屿边缘 一束微弱的红光在夜空中闪烁,它预示着三叠纪末大灭绝的前奏。尽管这场灭绝事件在历史的长河中鲜为人知,但它无情地削减了物种的丰富性和形态的多样性。直至最后一刻,鱼龙家族也没能重铸三叠纪的辉煌。
星辰如泪,
洒落在黑暗中的,是消逝唱响的挽歌。
那是最悲壮的舞蹈,
最震撼的画卷。透过尘埃,
恍惚窥见往昔的辉煌。碎灭吧!
以最璀璨的姿态离去!
新的循环已经开始,
我们不必成为其中的一部分。
侏罗掠影
二叠纪末大灭绝的余焰还未燃尽,来自地壳深处的暗流正等待一触即发的机会,伴随着盘古超大陆的分裂,将整个头足纲进行洗牌的三叠纪末大灭绝开始了。
尽管鱼龙在此次事件种群遭到不小打击,但是他们并没有因此衰落,幸存下来的鱼龙身体不但更具有流线性,并且尾鳍上下叶等长和现在金枪鱼(鲔鱼)差不多,宛如一弯新月。研究人员把尾鳍上下长度与尾鳍面积的比值称为展弦比。展弦比越大的鱼龙速度越快,但代价是什么呢?小学二年级(迫真)都知道,一个物体的速度越快,受到流体的阻力越大,也就越不稳定
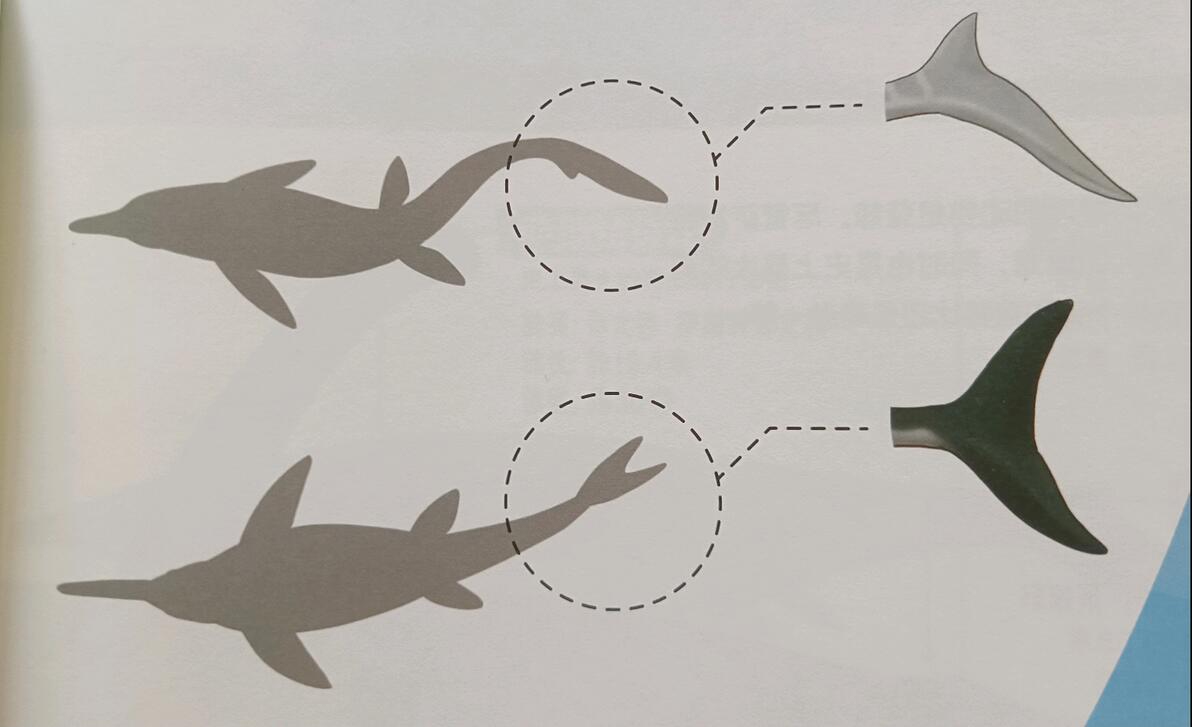
歪尾有助于鱼龙类游泳平衡浮力带来的竖直方向的力,可以产生相当大的变桨扭矩,并保证它们能够在水体中平稳前进相比之下,对称性的尾鳍则没有展现出如此明显的变桨扭矩,但它们可能通过躯干形态和胸鳍来弥补这一差异。
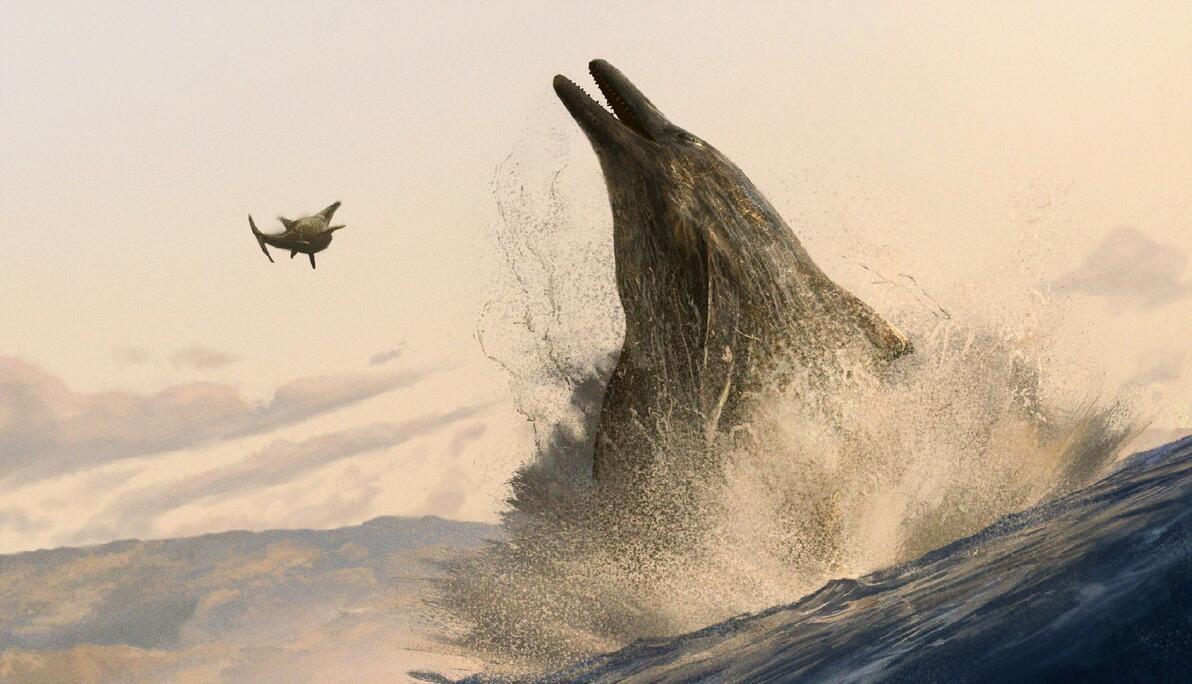
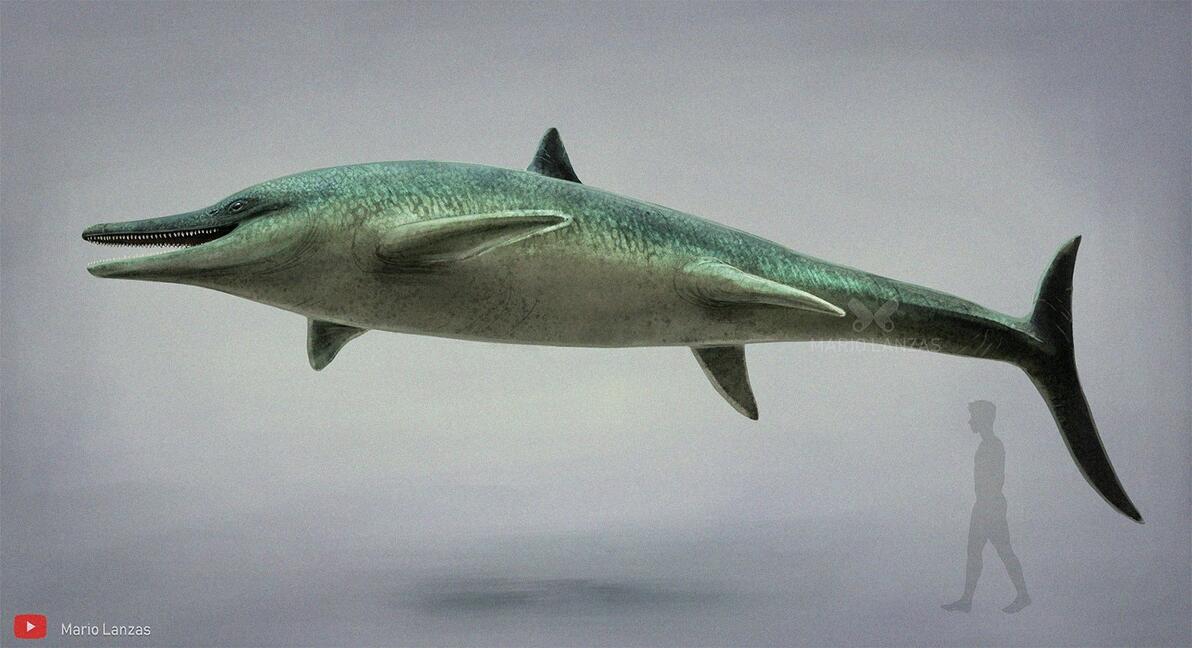
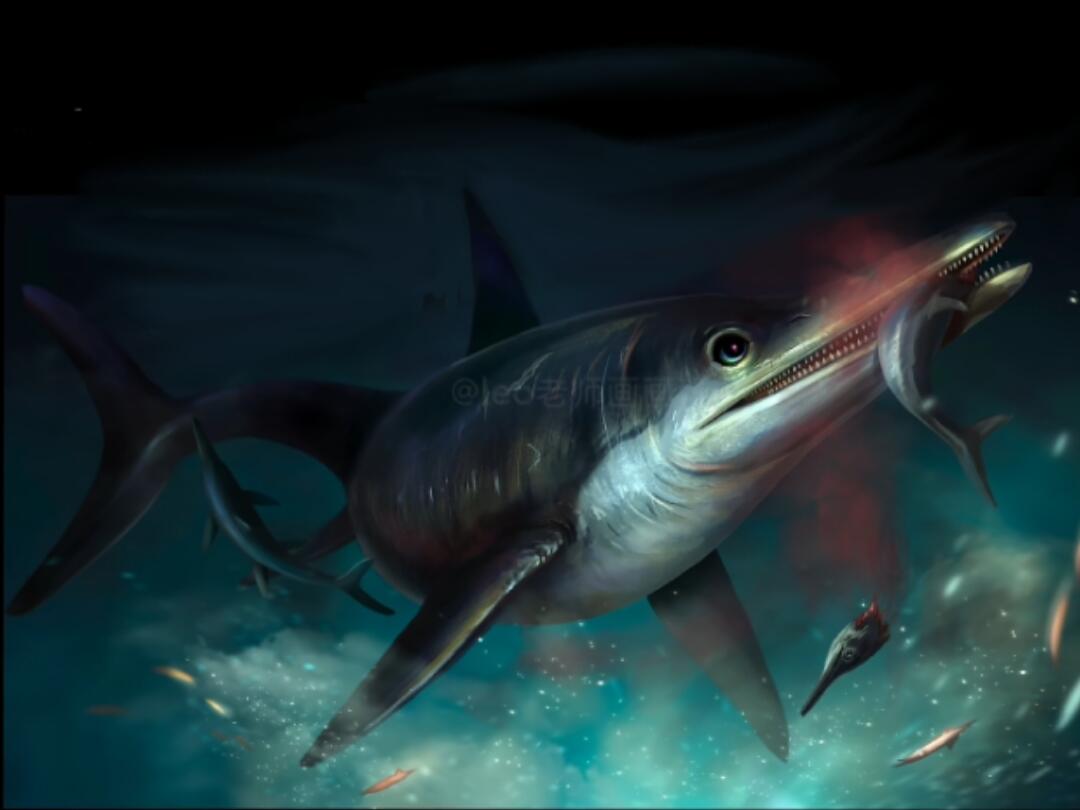
其中,切齿鱼龙科更是代替早三叠纪的鳗形鱼龙们成为了新的顶级掠食者,尽管保守体型九米的长度不如他们,但更具流线型的身躯、粗壮的骨骼、锋利的牙齿和比例更大的眼睛都显示出来他们食谱当中或多或少会有其他海爬。
他们的眼球直径可达26厘米,牢牢占领着脊椎动物眼睛排行榜的第一名,是一群视力极佳的猎手 ,更大的眼睛意味着收集更多的光线,能够牢牢的锁定猎物,提高捕猎的成功率。
而三角齿切齿鱼龙更是发现了捕食幼年狭翼鱼龙证据,在化石编号为SMNS 50000的三角齿泰曼鱼龙腹中发现了幼年狭翼鱼龙的骨骼碎片,并且人们还在生存于同一地层的斗蜥鳄的骨骼上发现了形似鱼龙的咬痕。
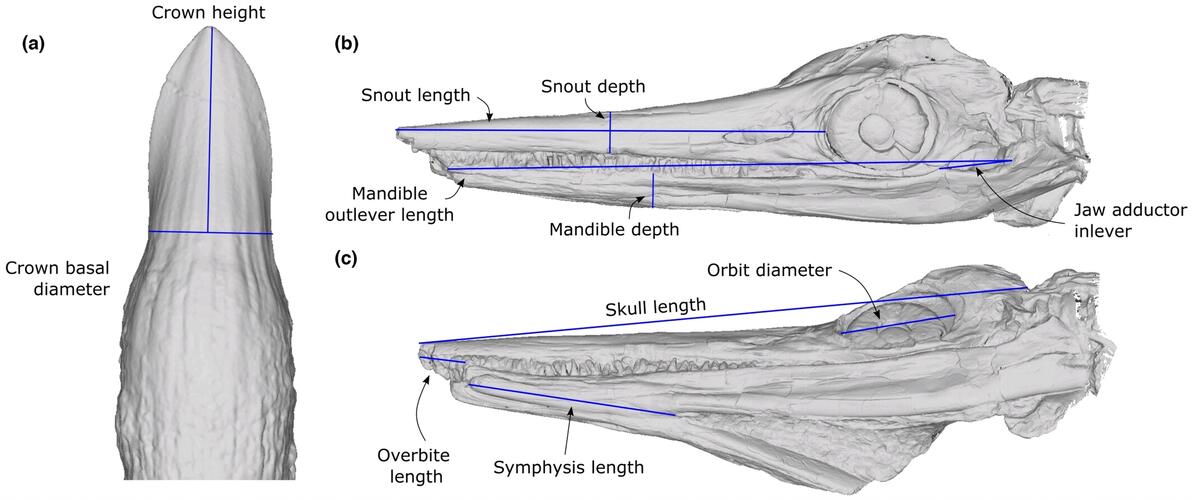
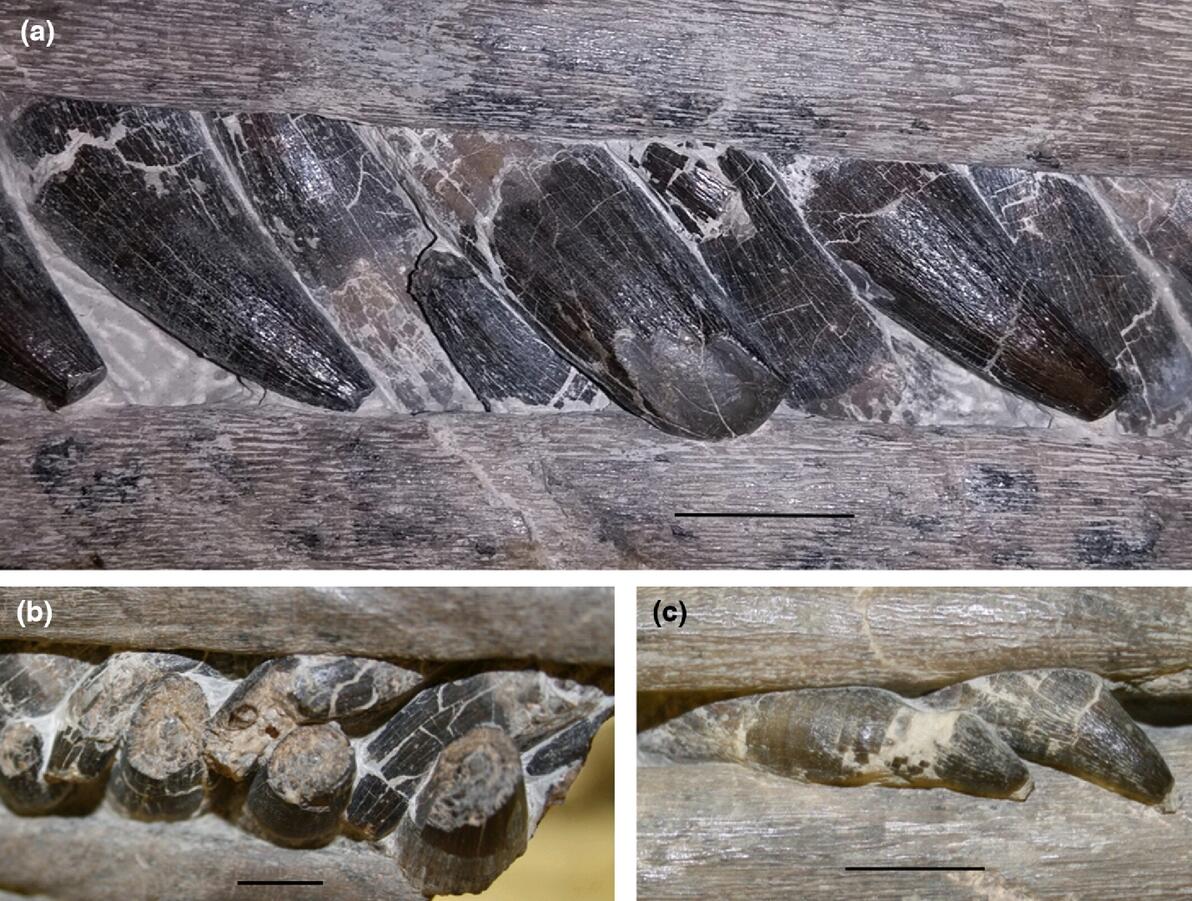
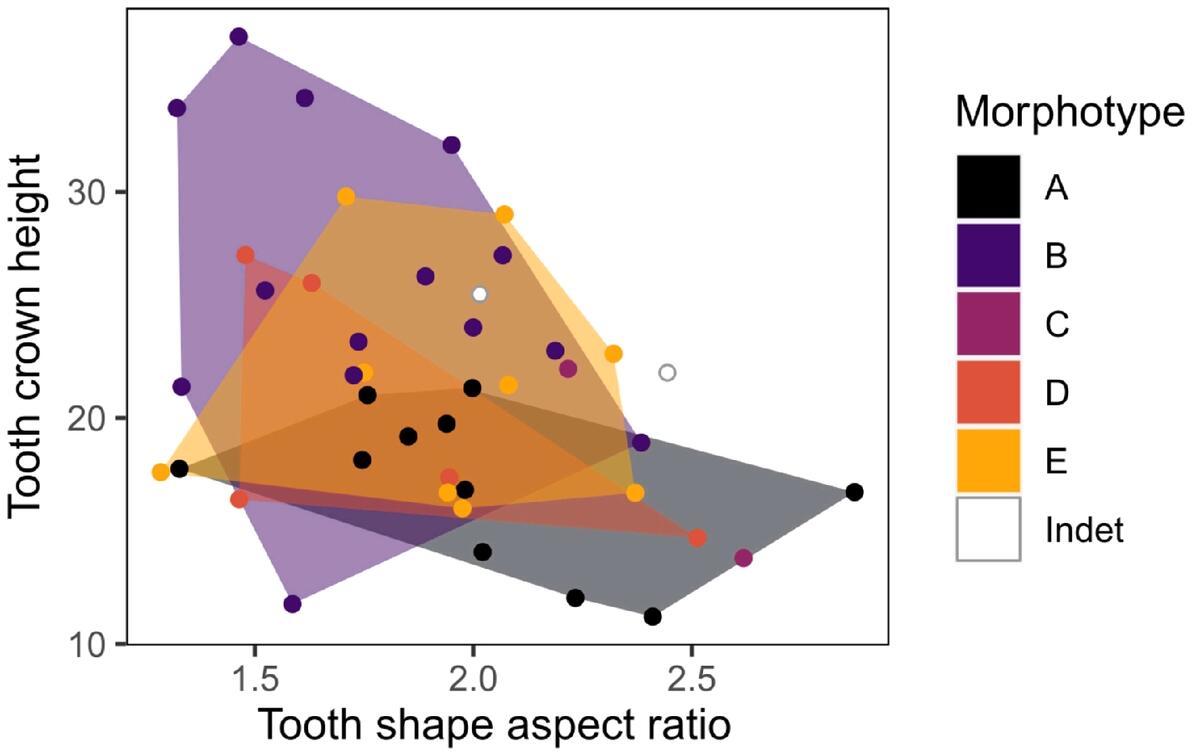
研究将切齿鱼龙属的牙齿分为五个类型:以部分板齿切齿鱼龙(Temnodontosaurus platyodon)为代表的A型,特征是具有明显的纵向嵴;
以板齿切齿鱼龙和宽头切齿鱼龙(Temnodontosaurus eurycephalus)为代表的B型,特征是齿冠有两条极其明显的嵴线;
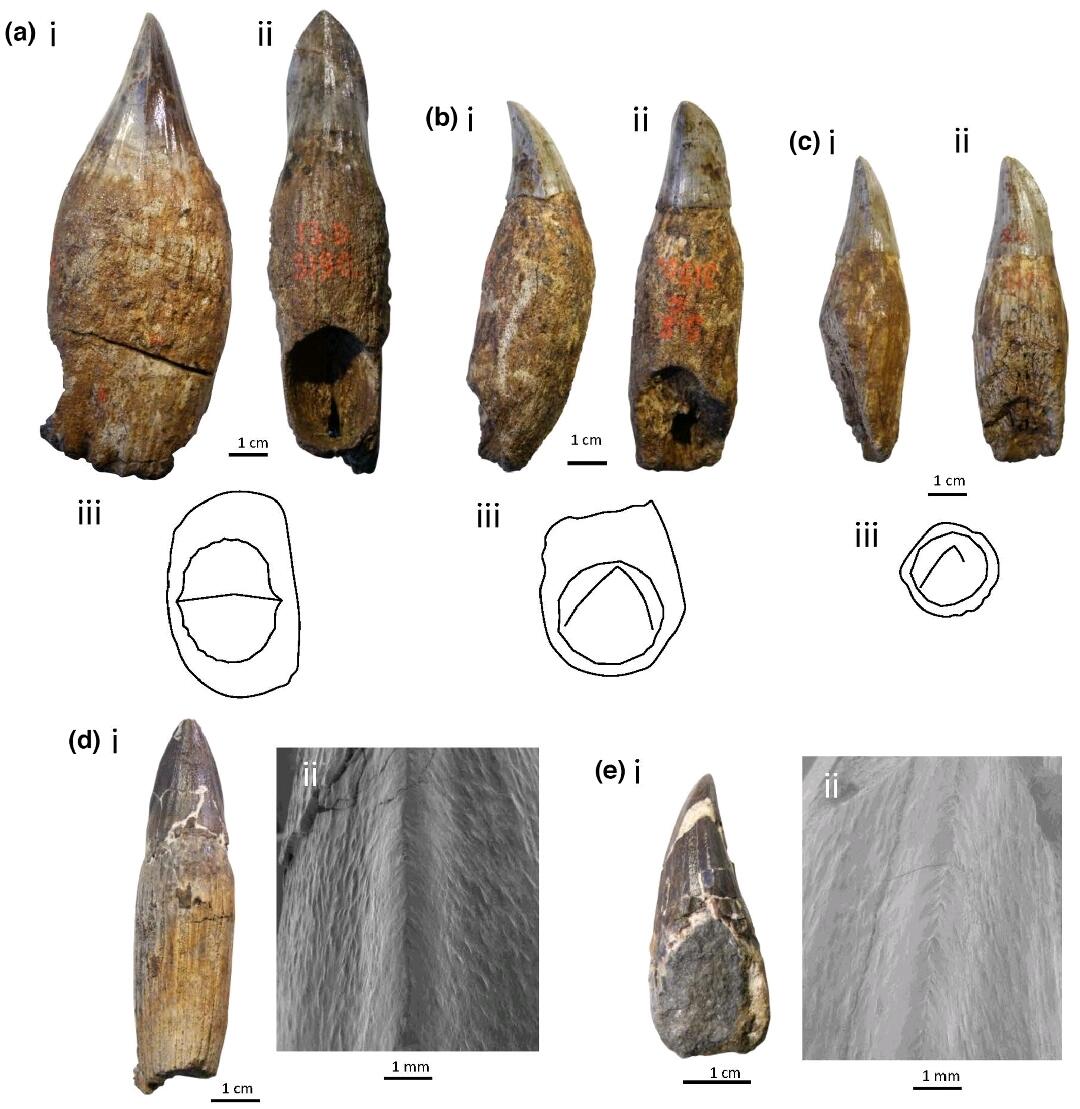
以诺特林根切齿鱼龙(Temnodontosaurus nuertingensis)为代表的C型,特征是没有隆突,
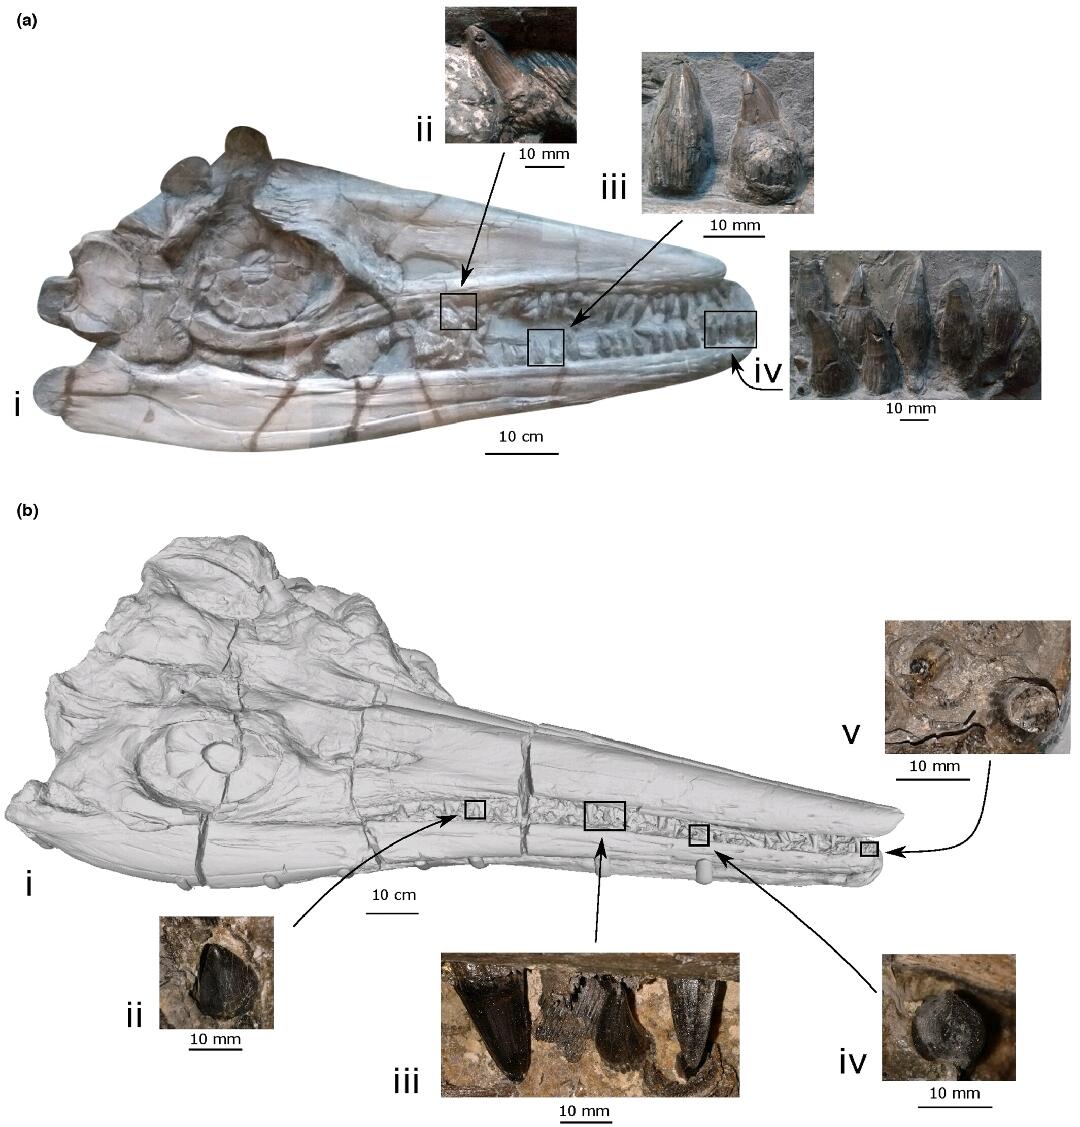
但齿冠大致呈褶皱型以及以三角齿切齿鱼龙(Temnodontosaurus trigonodon)为代表的D和E型,D型特征是牙釉质在齿冠表面形成锯齿状结构,E型特征则是向舌侧弯曲,有许多嵴线。根据此结论,我们可以得出板齿切齿鱼龙具有明显的异形齿性。
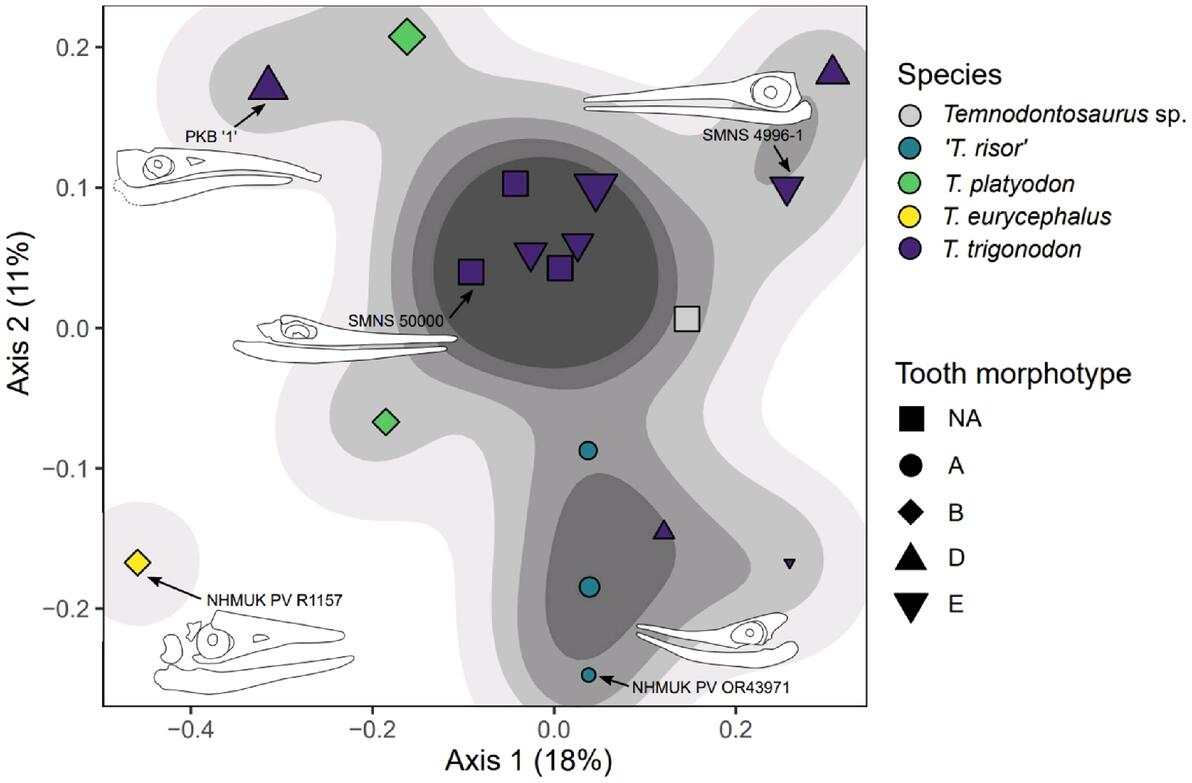
颅骨形态空间分析将切齿鱼龙属分为三个主要类别,一类是以宽头切齿鱼龙为代表的短吻,强咬合力类型,它们可能擅长造成巨大的伤口以及直接撕裂;一类是以板齿切齿鱼龙为代表的长吻类型,它们可能更擅长剪切猎物;还有一类则是以曾经的“笑面切齿鱼龙”("Temnodontosaurus risor")为代表的拥有弯曲吻部的类型。“笑面切齿鱼龙”的牙齿具有厚重的隆突,它们可能拥有很强的咬合力和控制力,简单的将它们归为板齿切齿鱼龙的未成年个体是武断的,需要进一步的研究。
最后,切齿鱼龙属高度多样化的头骨齿列特征表明它们具有明显的生态位划分,这对未来研究切齿鱼龙以及与切齿鱼龙关系亲近物种具有重要意义。
经历了三叠纪末大灭绝后,鱼龙种族多样性虽然大不如前,但是小型生态位依然有他们的一席之地,比如蛇嘴鱼龙科的剑鱼鱼龙与真鼻鱼龙,他们细长的吻部特化成了捕食头足类的利器。
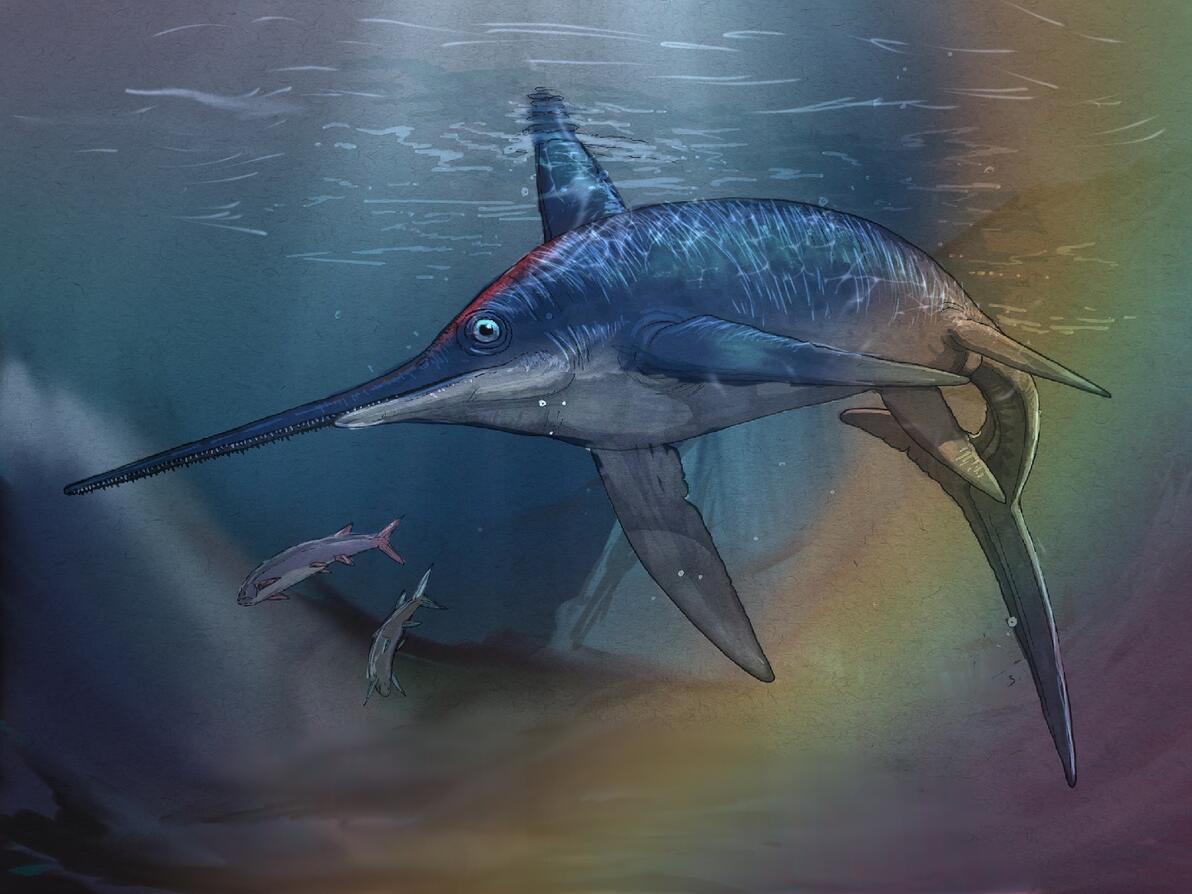
而更为特别的是真鼻鱼龙,不同于蛇嘴鱼龙科的其他成员,它的上颌出奇地长占头骨长度的75%,下颌只占头骨长度的50%,搭配上流线型的身躯,使其看上去更像一条剑鱼。与剑鱼高度趋同的身躯,自然也配得上相同的能力。形如长矛的吻部,可以破开水流快速追击猎物;也可以搅动水底的泥沙,使小型猎物无处遁形,他们硕大的眼睛具有立体视觉,巩膜环能够扛住深海的水压,以便更好的在深海里穿梭。
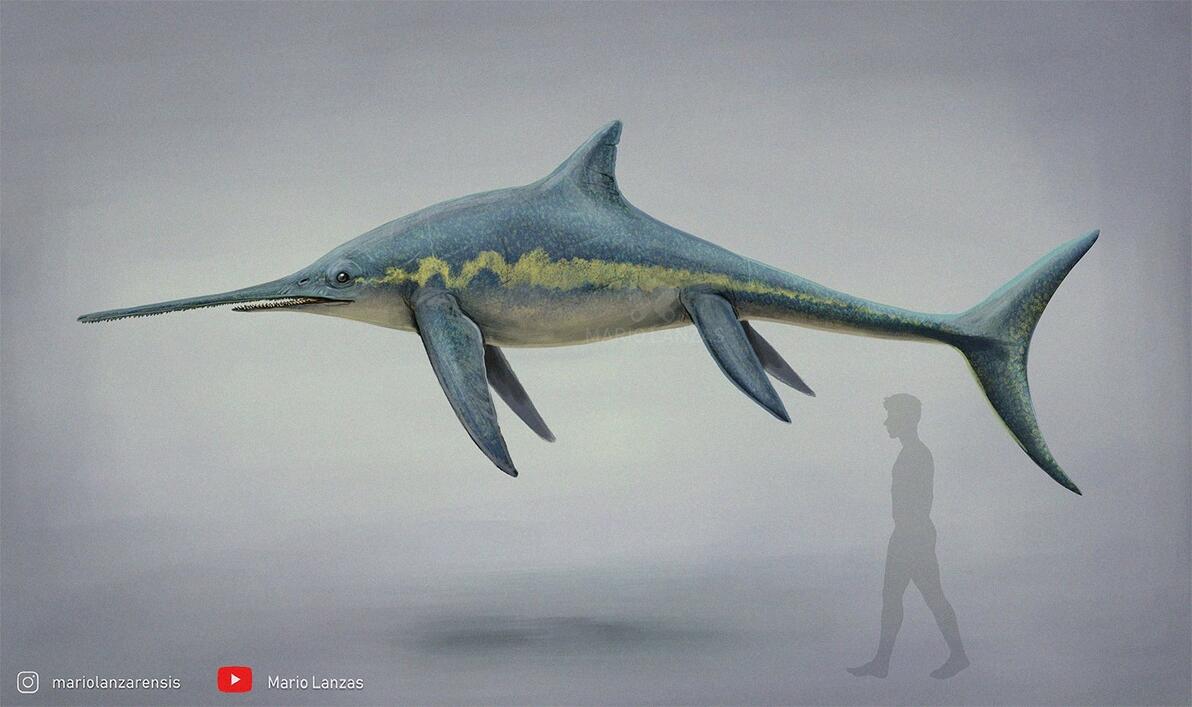
与此同时,真正的鱼龙科也渐渐进入人们的视野,他们几乎代表了大众心目中标准的鱼龙形象——硕大的眼睛,与海豚高度趋同的身体。
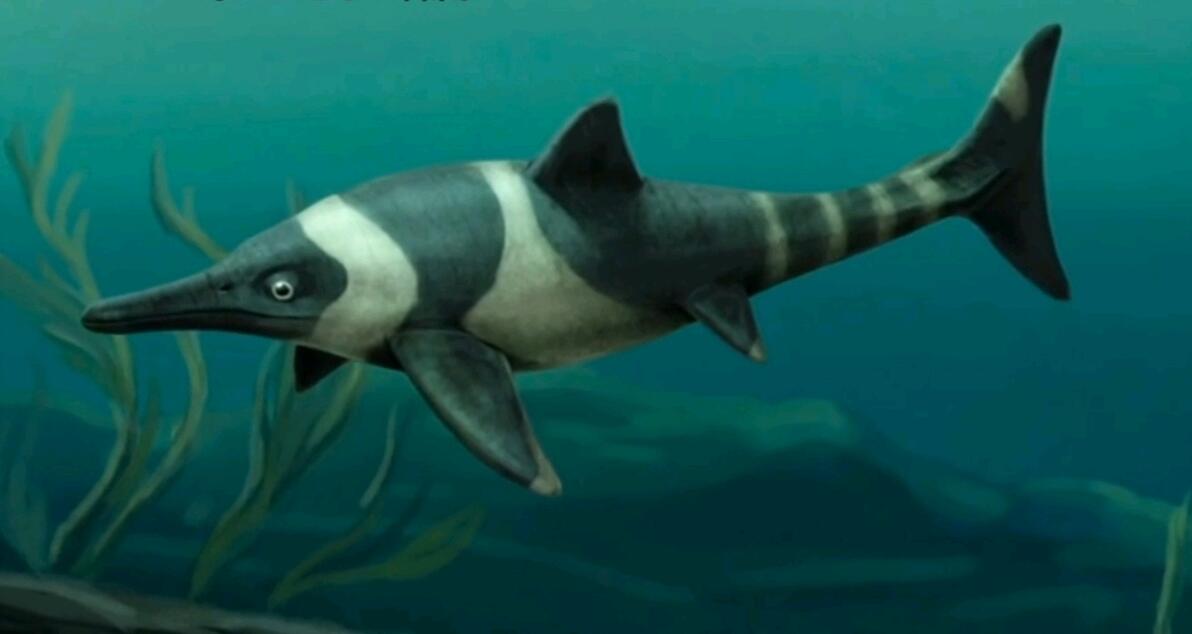
而且在1.8亿年前,狭翼鱼龙的化石中保留有脂肪层、黑素体以及原始蛋白,黑素体显示出他们的背部呈深色,腹部呈浅色,存在反阴影图案,而脂肪层能够储存能量和增加浮力,更重要的是可以调节体温,使其保持在35摄氏度,这表明他们和海豚一样是恒温动物,他们的生产方式已经转变为了尾巴先离开母体内,能够更好地避免幼崽溺水而亡。
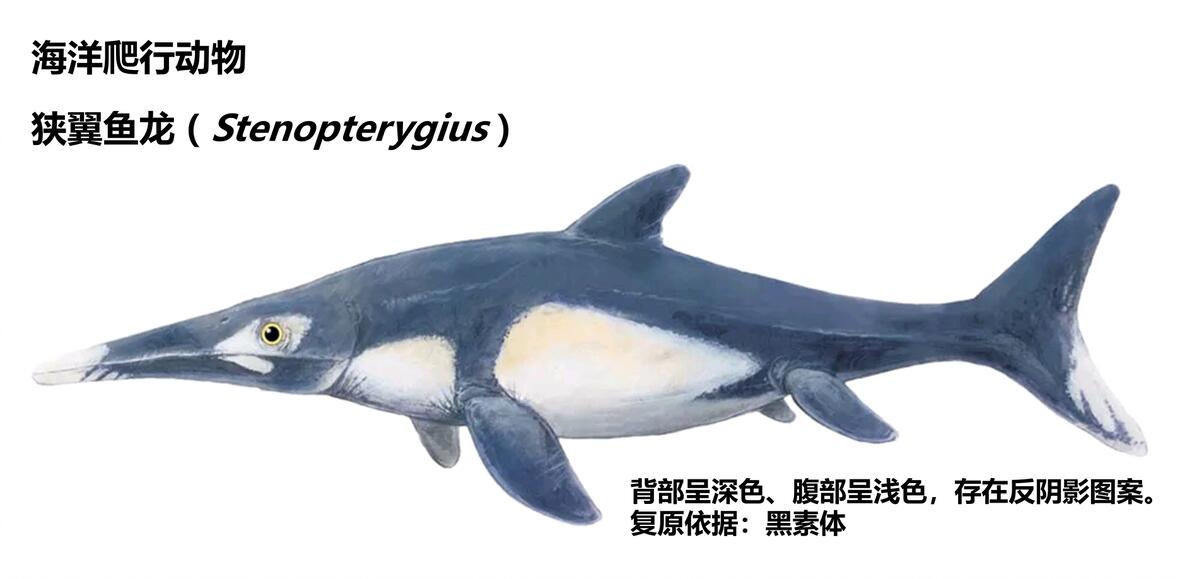
总之他们在完全适应海洋的过程中越走越远,当一切都欣欣向荣的时候,变故说来就来。
1.83亿年前,南非南极一带的卡鲁-费拉尔火山持续喷发了一千万年之久,冈瓦纳大陆就此开启了分崩离析的序幕,这引发了大规模的火山活动,释放了大量的二氧化碳和其他温室气体。这导致了气候的剧烈变化,包括全球气温的上升和海洋含氧量的降低。
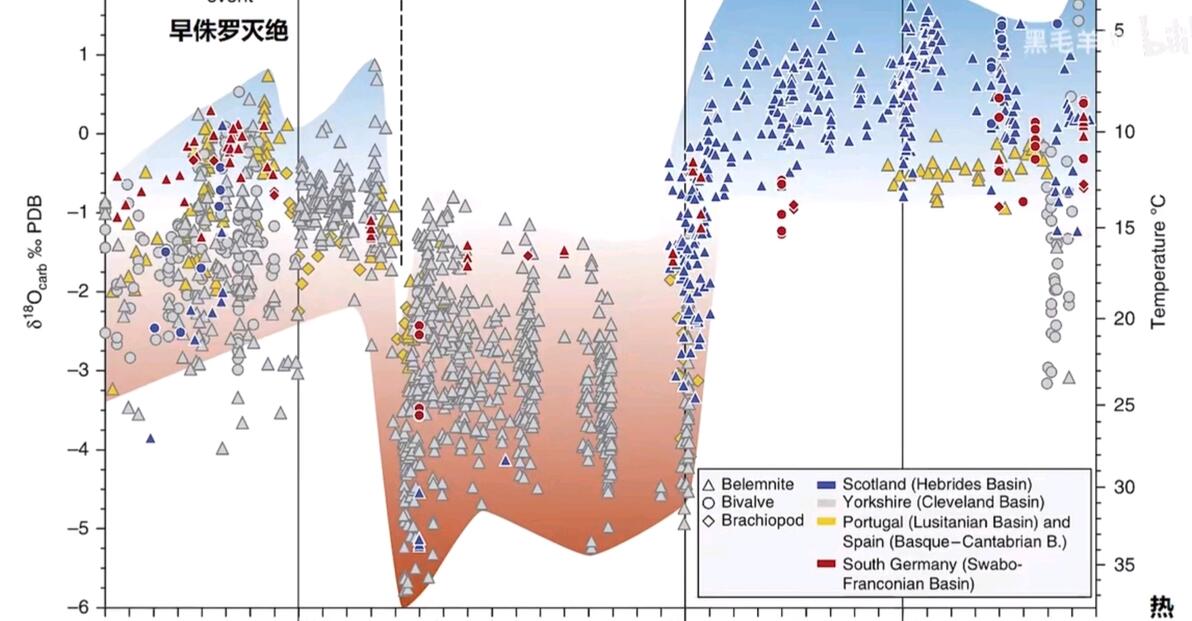
这种气候变化对生态系统产生了巨大的冲击,特别是对于依赖海洋生活的生物群体。切齿鱼科、蛇嘴鱼龙科、狭翼鱼龙科和鱼龙科等海洋生物在这种急剧变化的环境下很难适应,它们的生存条件受到了严重破坏,最终导致了它们的灭绝。然而,星星之火可以燎原,虽然他们的多样性遭受了重大打击,但也为后续生物演化提供了机会,为新的物种的出现和繁衍创造了条件。
白垩余晖
“死亡不是生命的终点,遗忘才是。”
在侏罗纪末灭绝事件的浩劫之后,鱼龙类的多样性如秋叶般凋零,唯有那些适应了开阔海域、以迅捷游弋为生的鱼龙类得以幸存。古生物学家们曾以为,鱼龙类的演化从未停歇,它们不断调整自身,以适应快速游泳的生活方式。然而,这一观点在伊拉克库尔德地区的一次发现中被彻底颠覆。
上世纪50年代,英国石油地质学家在库尔德地区发现了一具保存完好的鱼龙化石。这具化石包含了动物的大部分前半身,却一度被冷落,甚至被用作骡子道路的垫脚石。幸运的是,地质学家们意识到了它的价值,将其带回英国,珍藏至今。
卡迪夫大学的鱼龙专家Robert Appleby在70年代开始了对这块化石的初步研究。然而,他在确定化石确切年代之前便不幸离世,留下了未竟的事业。苏格兰国家博物馆的研究项目经理Jeff Liston感慨道:“Robert Appleby深知这块化石的重要性,但他的研究只能由后人继续。”
在新的研究中,研究人员把这种鱼龙类命名为迷失泅龙(Malawania anachronus),属名Malawania来自库尔德语“游泳者”,种名anachronus来自拉丁化希腊文“时间以外的”。迷失泅龙的意思是“时间以外的游泳者”,古生物学家认为尽管迷失泅龙生存在白垩纪,但是这种鱼龙类代表一种长期以来被认为在早侏罗世已经灭绝的鱼龙类,基干鲔鱼龙类(basal Thunnosauria)的已知最后的成员。值得注意的是,这种古老的鱼龙类出现了演化停滞:它们似乎在早侏罗世和白垩纪之间没有太大的改变,这是海洋爬行动物演化的非常罕见的壮举。
“迷失泅龙的发现类似于二十世纪三十年代腔棘鱼的发现:它们代表了一个迷失在生存时代以外的动物。我们从未想像过,这个“活化石”的生存时代有这个类群的存在。也许白垩纪的侏罗纪类型鱼龙类(Jurassic-style ichthyosaurs)的存在被忽略了,因为它们一直生活在中东地区,而这个地区以前只发现过一个非常破碎的鱼龙类化石。”Valentin Fischer博士博士补充说。
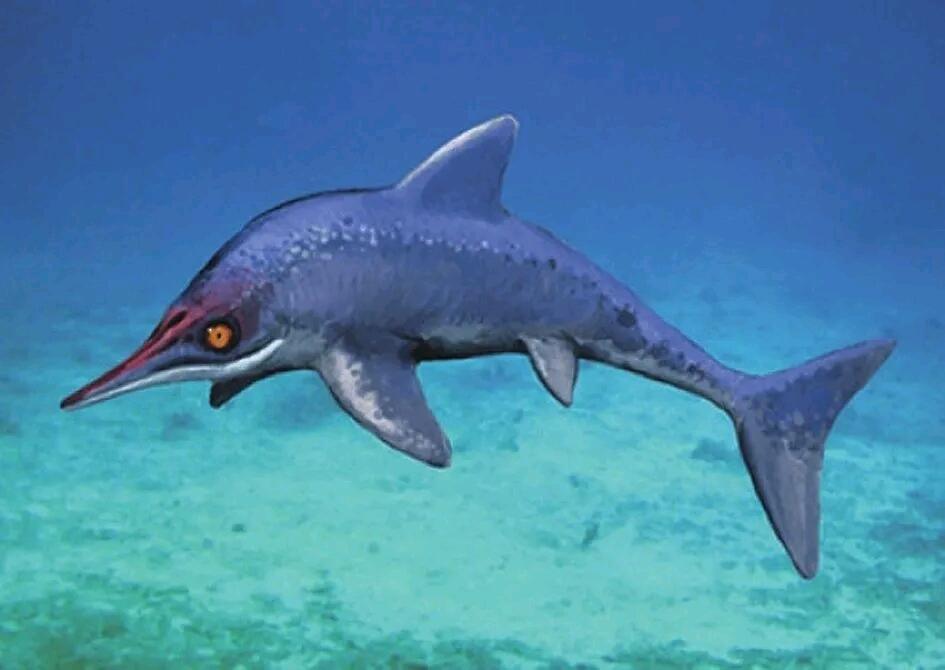
古生物学家研究了迷失泅龙的岩石里保存的孢子和花粉,并且分析鱼龙类的谱系,Valentin Fischer和他的同事追溯了白垩纪时期鱼龙类的演化历史。事实上,这个科学家团队表明大量的三叠纪和侏罗纪出现的鱼龙类存活到了白垩纪。这意味着鱼龙类不曾发生侏罗纪灭绝事件,它们的化石记录和其他海洋爬行动物完全不同。
这个科学家团队在2012年发现和命名另一种鱼龙类,紧密坚固泳龙(Acamptonectes densus),紧密坚固泳龙和迷失泅龙的发现为我们对于鱼龙类的灭绝和演化的认识带来了“革命”。现在看来,鱼龙类仍然是早白垩世很重要和多样性的一部分。这些发现导致发生在大约9500万年前的最终灭绝鱼龙类的森土灭绝事件的认识更加混乱。
尽管像迷失泅龙那样的星星之火在鱼龙多样性下降的关键时期,依然保存着种族的火苗,但他终究只是被空洞无尽的时间遗忘的匆匆过客而已……
比起被时间遗忘的无名之辈,下面这位可就知名的多了,锋齿鱼龙(Kyhytysuka sachicarum)是一种极其特殊的鱼龙,具有独特的牙齿分化结构和肉食性食性适应。
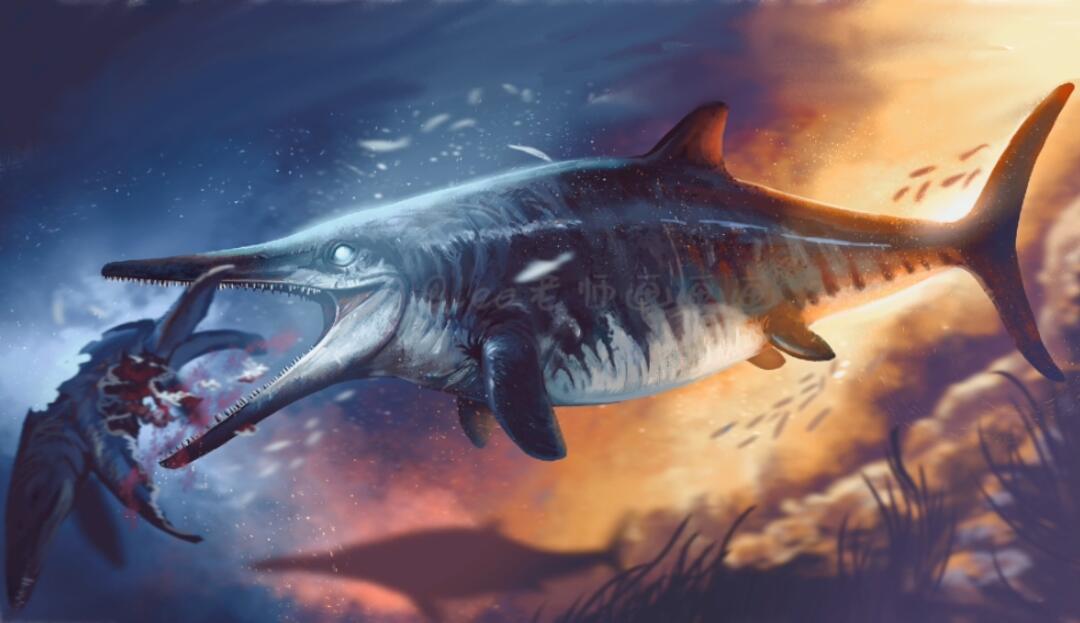
研究人员在最新的建属论文中重新整理了大眼鱼龙类的系统发育关系,并将锋齿鱼龙归类为短鳍鱼龙科。 锋齿鱼龙的牙齿分化结构非常适合捕食大型脊椎动物。其上颌牙齿被分为五个区域,其中最前端的一段牙齿适用于捕食头足类,而第三段牙齿则具有切割边缘,可用于剪切大型猎物。不仅如此,锋齿鱼龙还拥有70-75°的夸张口裂能力,可能可以通过吞咽较大的猎物。
此外,锋齿鱼龙还具有坚固的镫骨-方骨接触面和特殊的下颌结构,可以增强咬合力并负载较大的力量。这些特征使得锋齿鱼龙被称为“超级肉食动物”。 锋齿鱼龙的化石发现于早白垩世的哥伦比亚浅海湾的Paja Formation。这个地点已经展示了许多独特的海洋生物化石,而锋齿鱼龙作为一种独特的掠食性动物,将继续为我们揭示当时生态系统的繁荣景象。 总之,锋齿鱼龙是一种具有特殊牙齿结构和食性适应的独特鱼龙,其发现为我们了解早白垩世海洋生态系统提供了重要线索。关于他们的捕食关系,有以下四种:
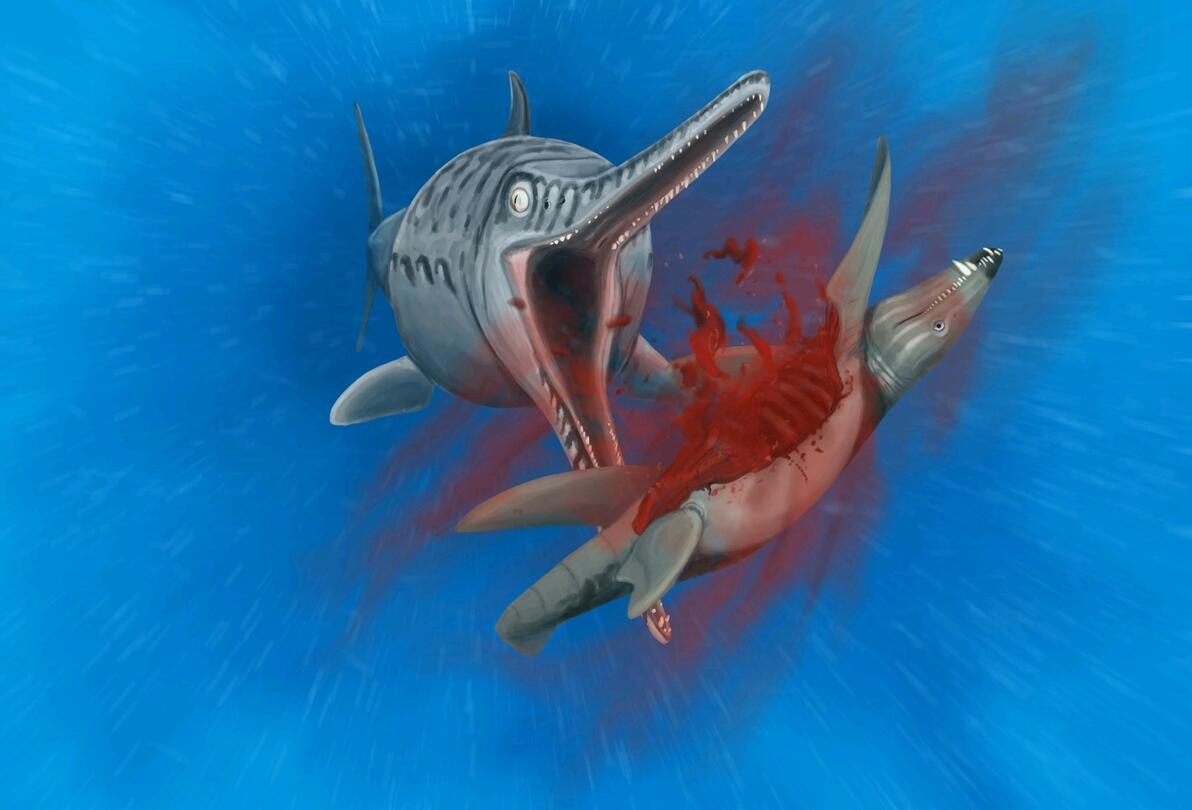
捕食帕瓦乔克阿科斯塔龙(Acostasaurus pavachoquensis): 帕瓦乔克阿科斯塔龙是一种小型上龙,推测具有头骨宽阔坚固的特点,并且拥有巨大的犬齿状齿。它的身体结构较为强悍,可能是萨奇卡龙的捕食对象之一。然而,关于该物种的详细描述和分类地位仍需要进一步研究。
食亚成年穆氏窄吻龙(Stenorhynchosaurus munozi): 穆氏窄吻龙具有较窄的颌骨,但牙齿呈现善于切割的亚三面体形状,鳍状肢较长。已确认分类的个体最大长度可达约7.7米,体重约4.5吨。有时,被误认为是窄吻龙的民间称之为"克柔龙"的未定种标本达到9米的长度。穆氏窄吻龙可能是萨奇卡龙的捕食对象之一。
捕食亚成年博亚卡"克柔龙"("Kronosaurus" boyacensis): 博亚卡"克柔龙"拥有上龙科中最大的头身比例。然而,目前对于它的分类学地位尚存在争议,大多数学者不认为其属于克柔龙属。在Paja Formation中,它是仅次于生命萨奇卡龙的顶级捕食者。
捕食亚成年垂直穆伊斯卡鱼龙(Muiscasaurus catheti): 穆伊斯卡鱼龙的种加词表示它拥有垂直的鼻孔。它属于大眼鱼龙科,成年后的体型可能与锋齿鱼龙相当。它可能是萨奇卡龙在Paja Formation中的捕食对象之一。
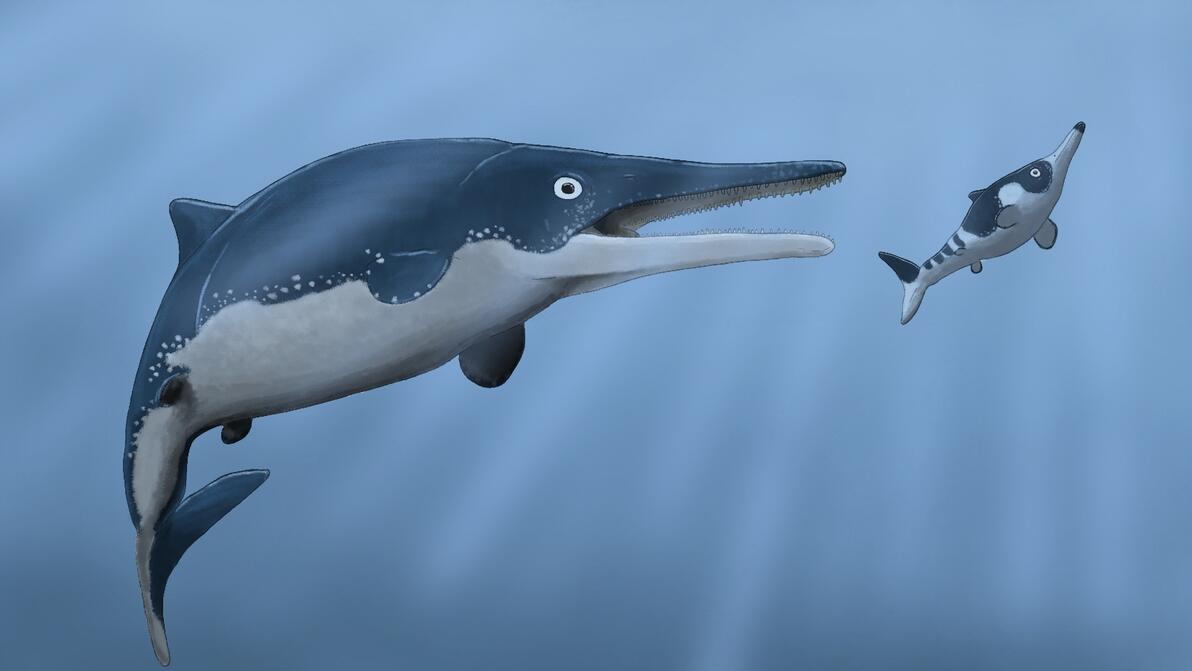
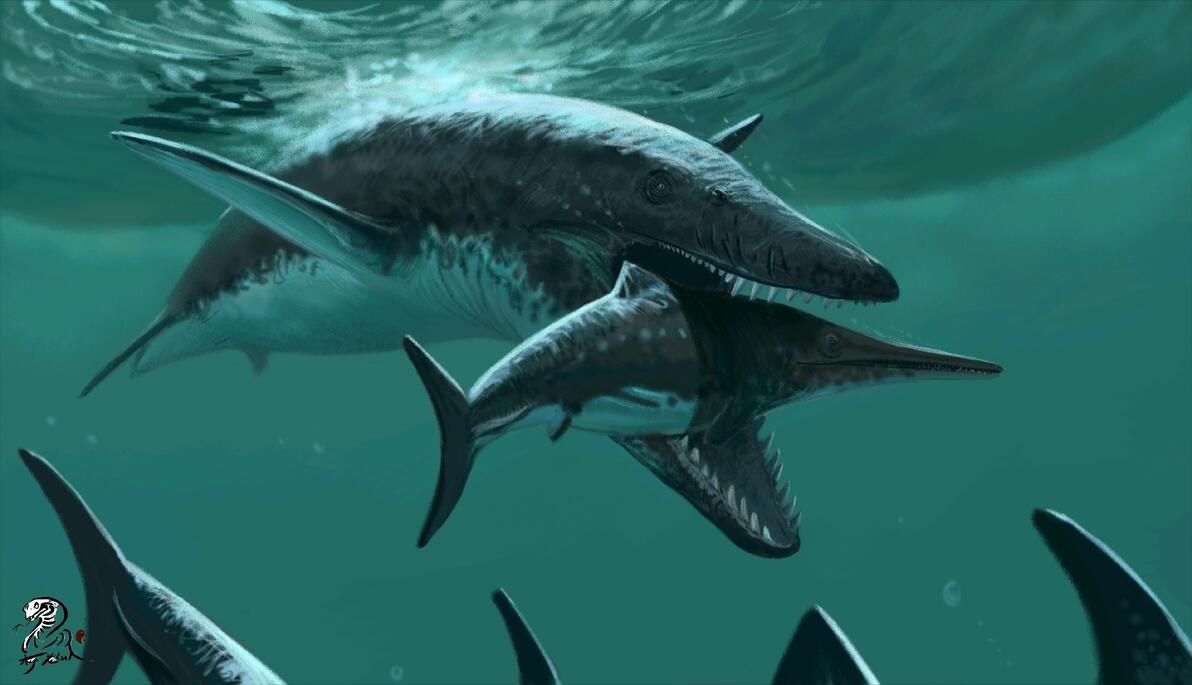
不过也有被萨奇卡龙反杀的(((
若要论知名度,大眼鱼龙当仁不让。正如其名,他们有一双水汪汪的卡姿兰大眼睛,流线型的身体已经高度适应水生生活,尽管化石证明他们大部分时间生活在浅海,但他们能够潜至深达600米的海域,这一本领使它们得以扩大生存领域,躲避一些小规模的灾难。
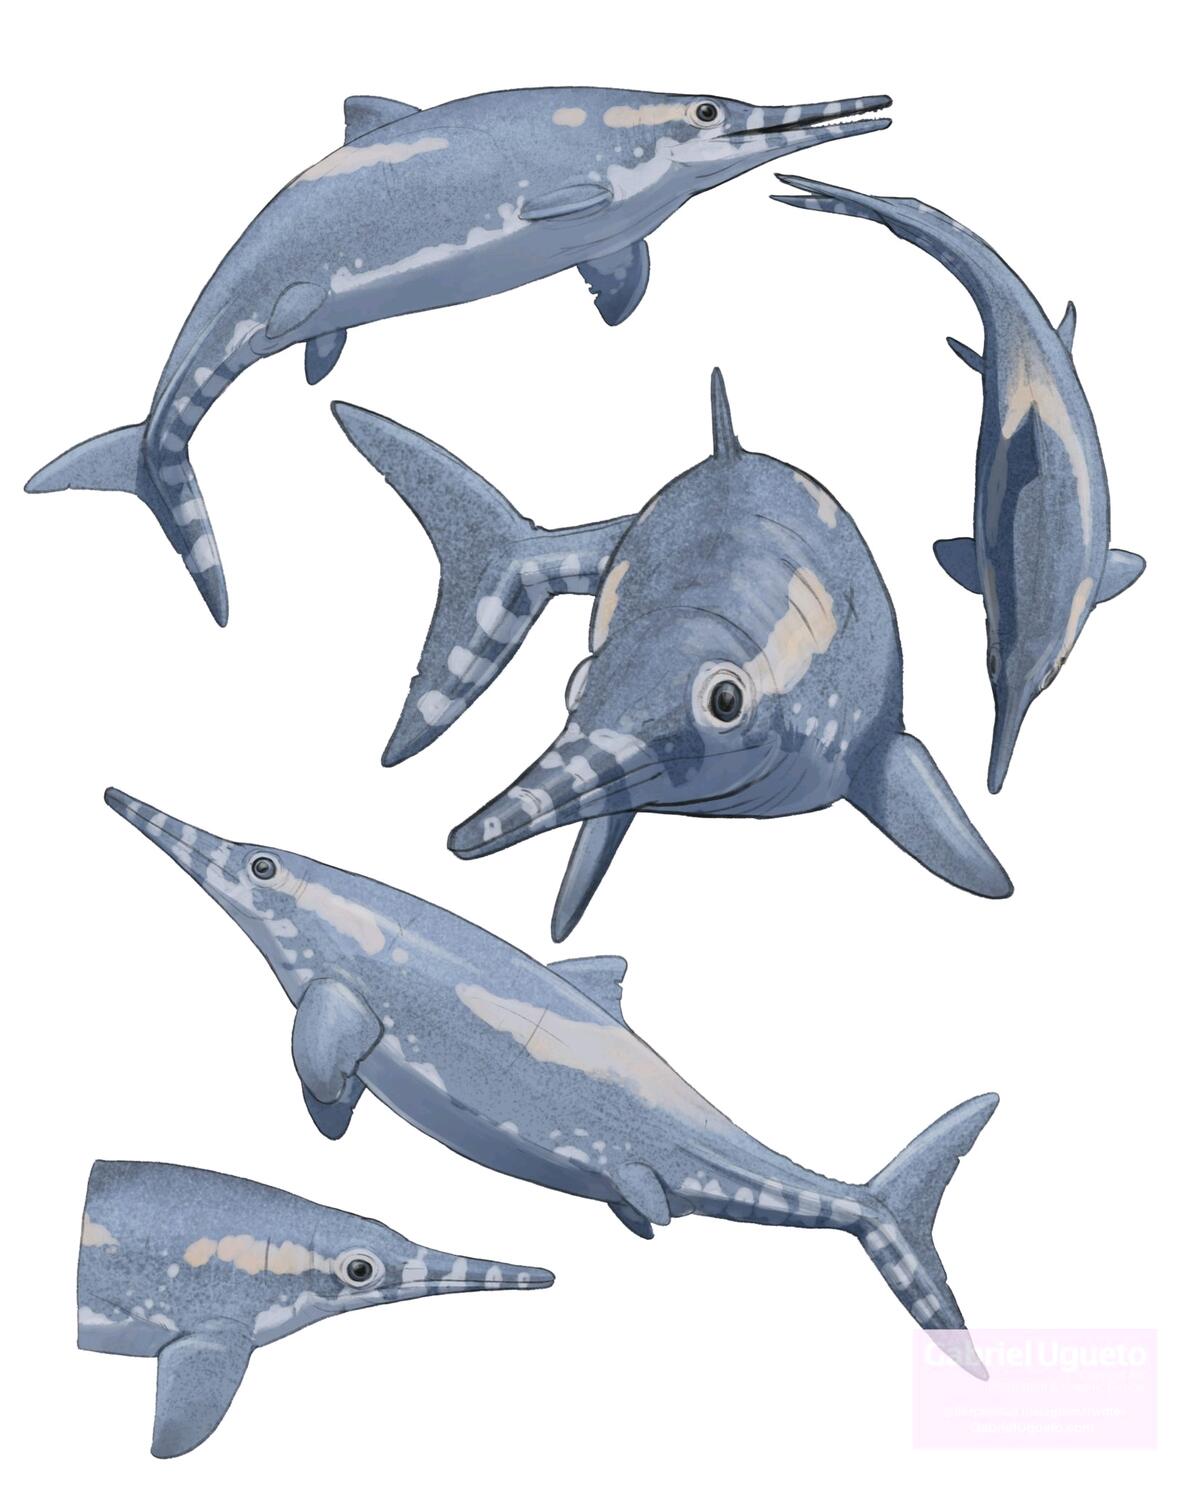
在鱼龙类的演化过程中,费氏阿尔高鱼龙(Argovisaurus martafernandezi)是一个重要的过渡物种。它的化石发现于瑞士中侏罗世的豪普特罗根施泰因组(Hauptrogenstein Formation),正模标本PIMUZ A/III 5279包含大部分头骨、椎骨和肋骨。
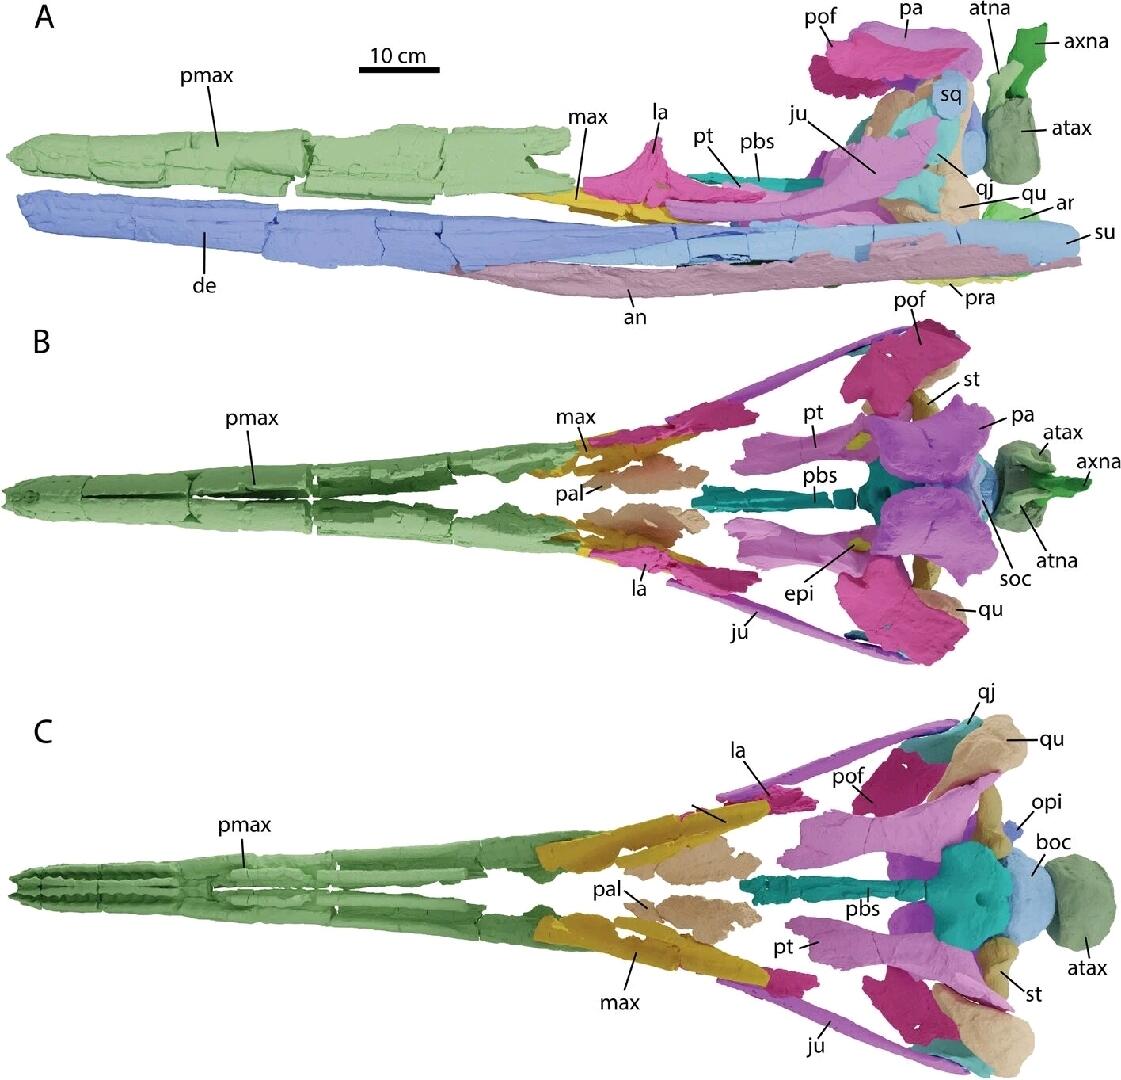
该标本下颌长达125厘米,推测全长4.5-6米。科学家在阿尔高鱼龙的骨骼上发现了许多病变,其左侧下颌存在明显的病变,并可能继发地引起了同侧顶骨的病变;除此之外,锁骨和肋骨上也有不同程度的病理变化。不过尽管有这些病变,但它依然存活了很长时间,展现了顽强的生命力。
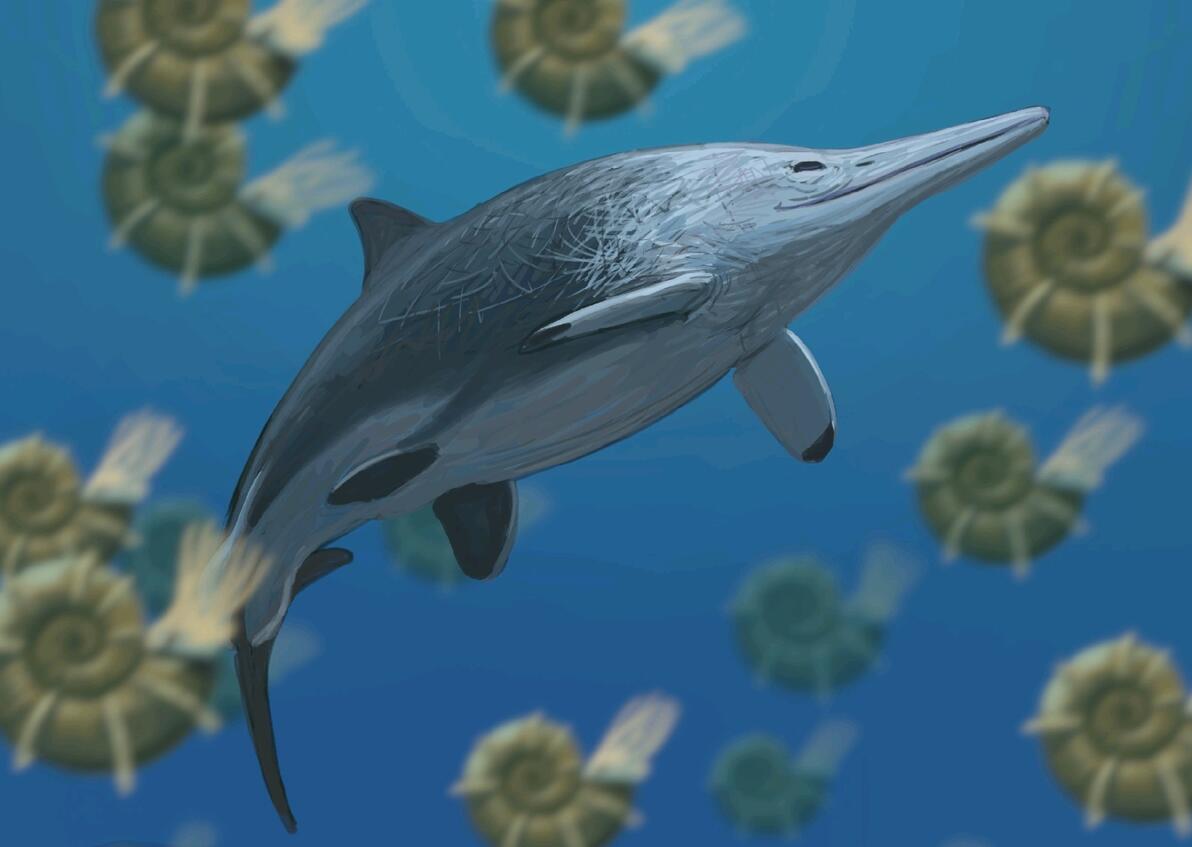
阿尔高鱼龙十分接近于大眼鱼龙类(Ophthalmosauria),它是一种较大的鱼龙类,下颌长可以达到125厘米,全长推测达到了4.5-6米。它基枕骨外髁部收缩,副基蝶骨的基翼骨突朝向前外侧,上枕骨前后延长,镫骨的耳后关节面朝向后,方骨没有明显的枕骨瓣。系统发育显示:它的演化位置介于乔凯科鱼龙(Chacaicosaurus)和大眼鱼龙类之间。
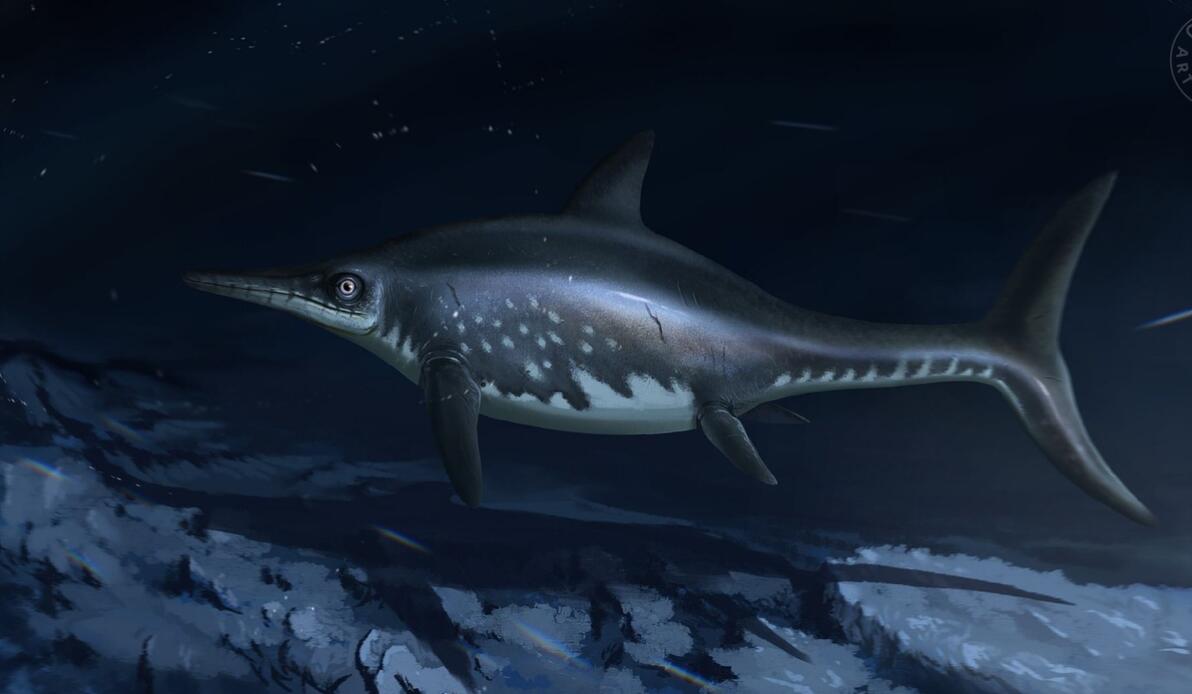
大眼鱼龙科的繁荣时期,它们的有效种数量接近三叠纪的鼎盛时期。尽管外貌和生活习性与现代海豚高度相似,但它们依然保留了一些独特的特征,如较大的体型和深潜能力。然而,随着早白垩世豪特里维期的一次缺氧事件,鱼龙类的多样性急剧下降,最终走向了衰亡。
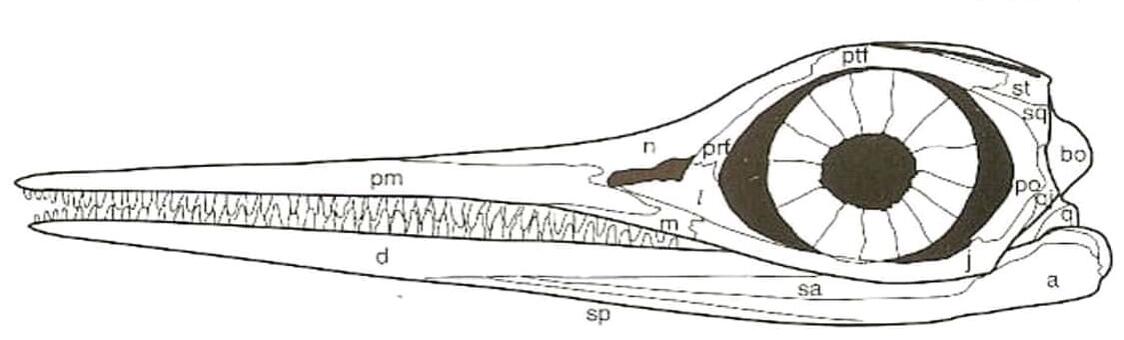
擅泳无齿潜龙Baptanodn natans,颅后的结构显示它仍然保留了一定的非鲔鱼龙特点,而头骨也是相对较为原始的细吻类型。巨大的眼球和巩膜环内径显示它们是极佳的潜水者,会在深海寻找猎物。
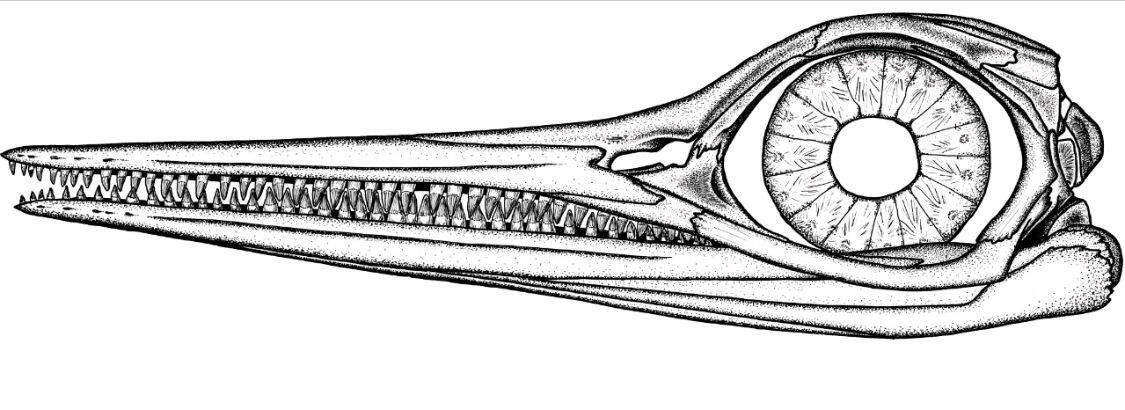
艾森尼大眼鱼龙Ophthalmosaurus icenicus的牙齿略发达一些,椎骨结构也预示着其游泳能力强于无齿潜龙。在生态上,它和今天的原海豚仍然未拉开明显的差距。
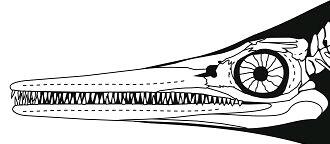
阿氏格兰道鱼龙Grendelius alekseevi,拥有相当粗厚的吻部和有发达纵褶的牙齿。
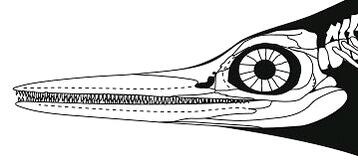
哥罗第什温多雷鱼龙Undorosaurus gorodischensis/克氏冷鳍鱼龙Cryopterygius kristensenae,两个学名描述的很可能是同一种大型鱼龙类。温多雷鱼龙属于另一个扁鳍鱼龙亚科下的演化支,这些北欧的也具有对鱼龙类而言相当强悍的头骨。
后期他们的外貌大同小异,但是依然可以通过牙齿的比例,头骨抬升的幅度,牙齿的形态来判断大眼鱼龙类的食性变化即——由小型鱼类、无壳无脊椎动物为食到捕猎大于头骨长度的猎物。
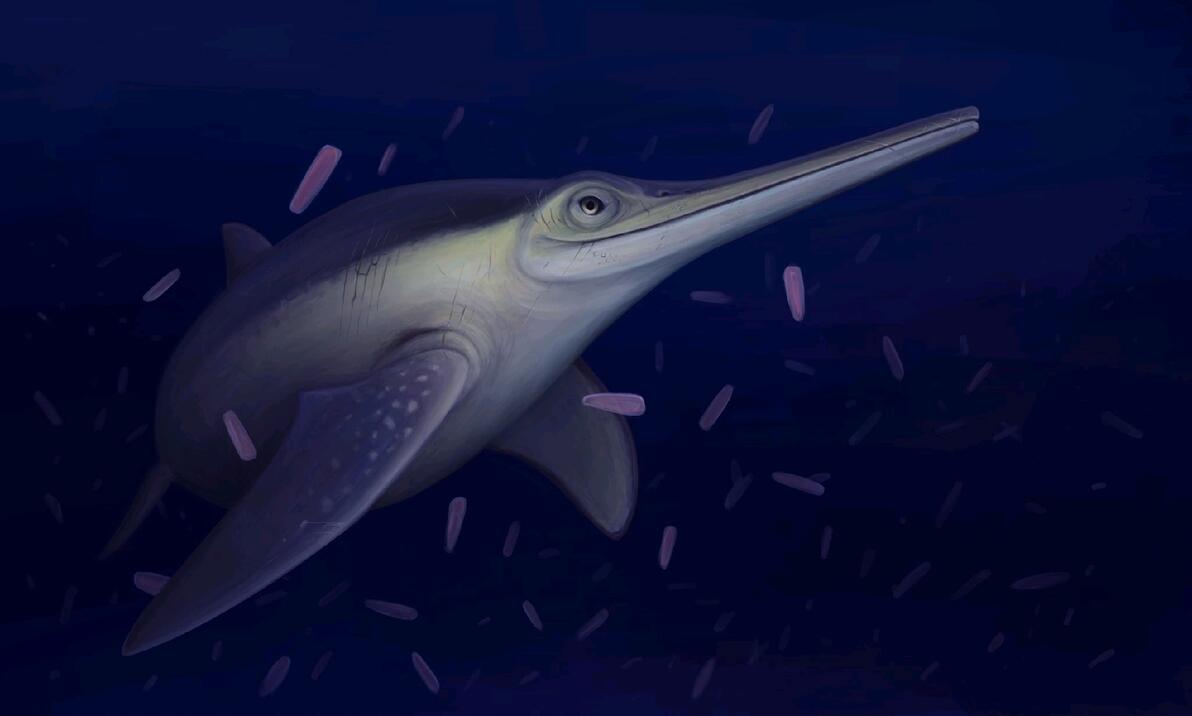
扁鳍鱼龙复原图
早白垩世阿普特期,受频繁海侵海退的影响,位于如今大自流盆地的伊罗曼加海呈现出独特的风貌。据海相沉积显示,其中的部分区域甚至存在冰渍岩,极有可能出现大面积结冰。尽管这里季节性强,寒冷无比。但就像如今的南极洲一样,来自世界的洋流供养着庞大的生物群落,因此这里成为了扁鳍鱼龙的乐土,但欣欣向荣的景象背后,却暗藏杀机。巨食性的克柔龙在此游弋,寻找着潜在猎物。
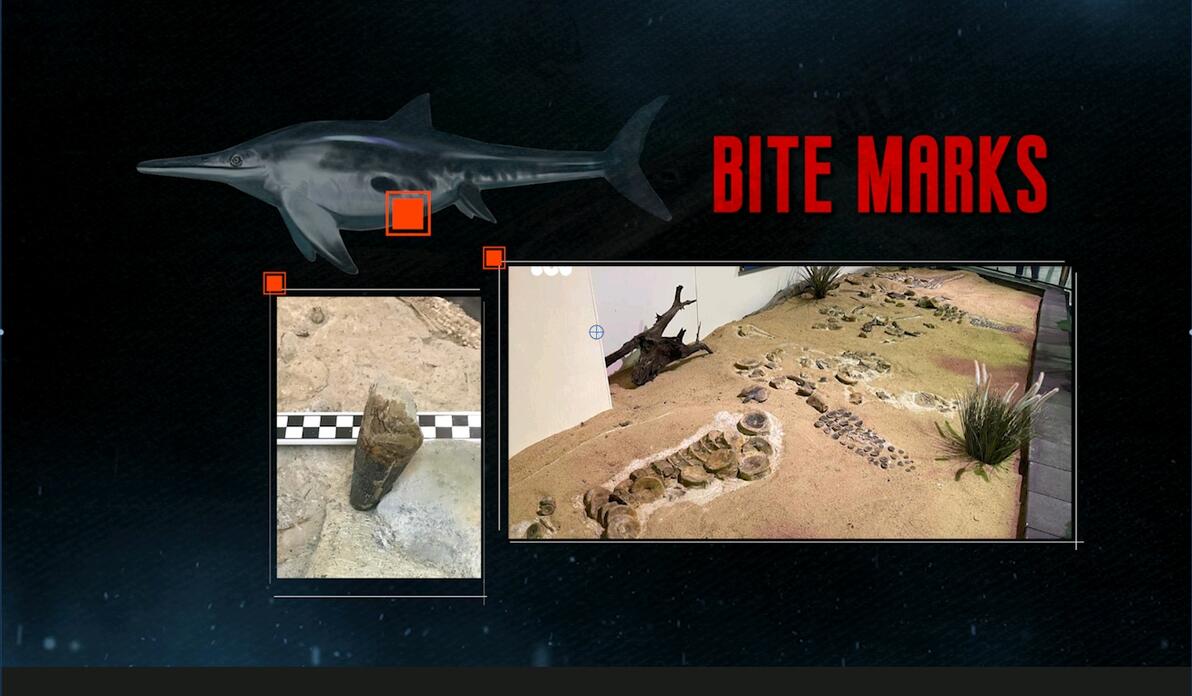
但扁鳍鱼龙也绝不是好应付的对手。它们的牙齿较为发达,略微弯曲顶部锋利。而体长甚至超过六米。其中一具疑似扁鳍鱼龙的化石发掘自上普罗旺斯-阿尔卑斯省(Alpes-de-Haute-Provence),年代为113~100.5ma的晚阿普第期(Late Aptian),保存完整度约为60%,其中鳍状肢和头骨95%完整,头骨长约2米?全长约8.5米,几乎是早白垩世最大的完整鱼龙骨架。
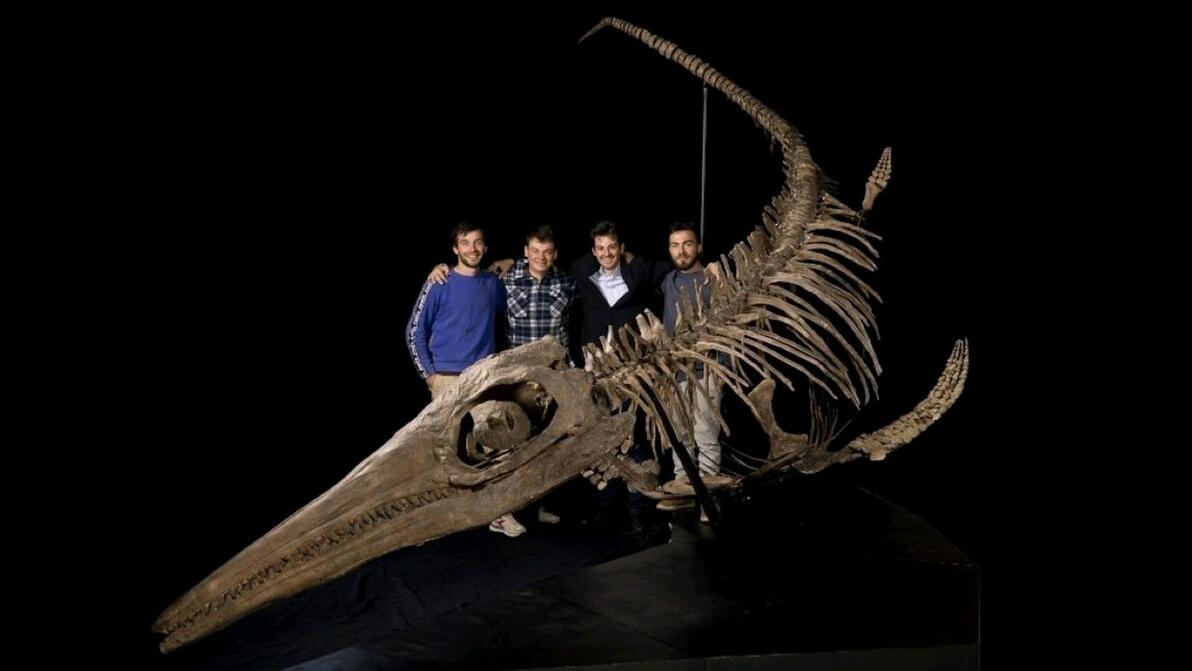
想要生存下来,除了硬件食性也得庞杂广泛。据有记录的话是显示,他们从鱼类到海龟甚至是海面密食的海鸟都来者不拒。能在海洋里行动自如,也是决定捕猎成功的关键。关于海洋生物的理想构型,传统观点认为是长径比为4.5:1的水滴形。但最近的研究通过对几种鱼龙进行建模分析,对这一结论提出了质疑。
流体中的阻力可以分为摩擦阻力、压差阻力和诱导阻力。鱼龙的粗糙程度与粗壮程度、体型大小、鳍的形状都会影响这三种阻力。阻力系数Cd的计算与雷诺数Re有关。Re值越大,Cd值越小。但在Re值相同时,阻力系数与粗壮度成反比。 对于一定体长的鱼龙,想要获得最大的推阻比和最快的极速,其长径比应该在雷诺数Re值和构型本身制造的阻力之间取得平衡。
对于一定重量的鱼龙,理论上最优的解是细长的鳗形。(但俗话讲:只看单一理论,不考虑实际属于是耍流氓)鱼龙的粗壮度和鱼形化可以提升其僵硬度,从而提高游泳效率。这是鱼形化获得的最大优势,大眼鱼龙科的绝大多数成员便是其中的代表。
对于大型鱼龙,提升粗壮度以优化Re值减阻有些得不偿失,更细长的低Cd造型可能更合适。小型高速鱼龙则可能更粗壮。速度本身也会影响雷诺数Re。中速段的鱼龙可能会选择高Re值的粗壮布局,小型鱼龙可能采用“鲔球”构型以获得高Re值。高速段的鱼龙则采用细长构型获得低Cd,低Cd和低截面积的结合,拥有极致的减阻效果,几乎可以说是如切齿鱼龙,扁鳍鱼龙等冲刺猎手的必需品。或许正因如此,扁鳍鱼龙家族成为了最晚灭绝的一批鱼龙之一。
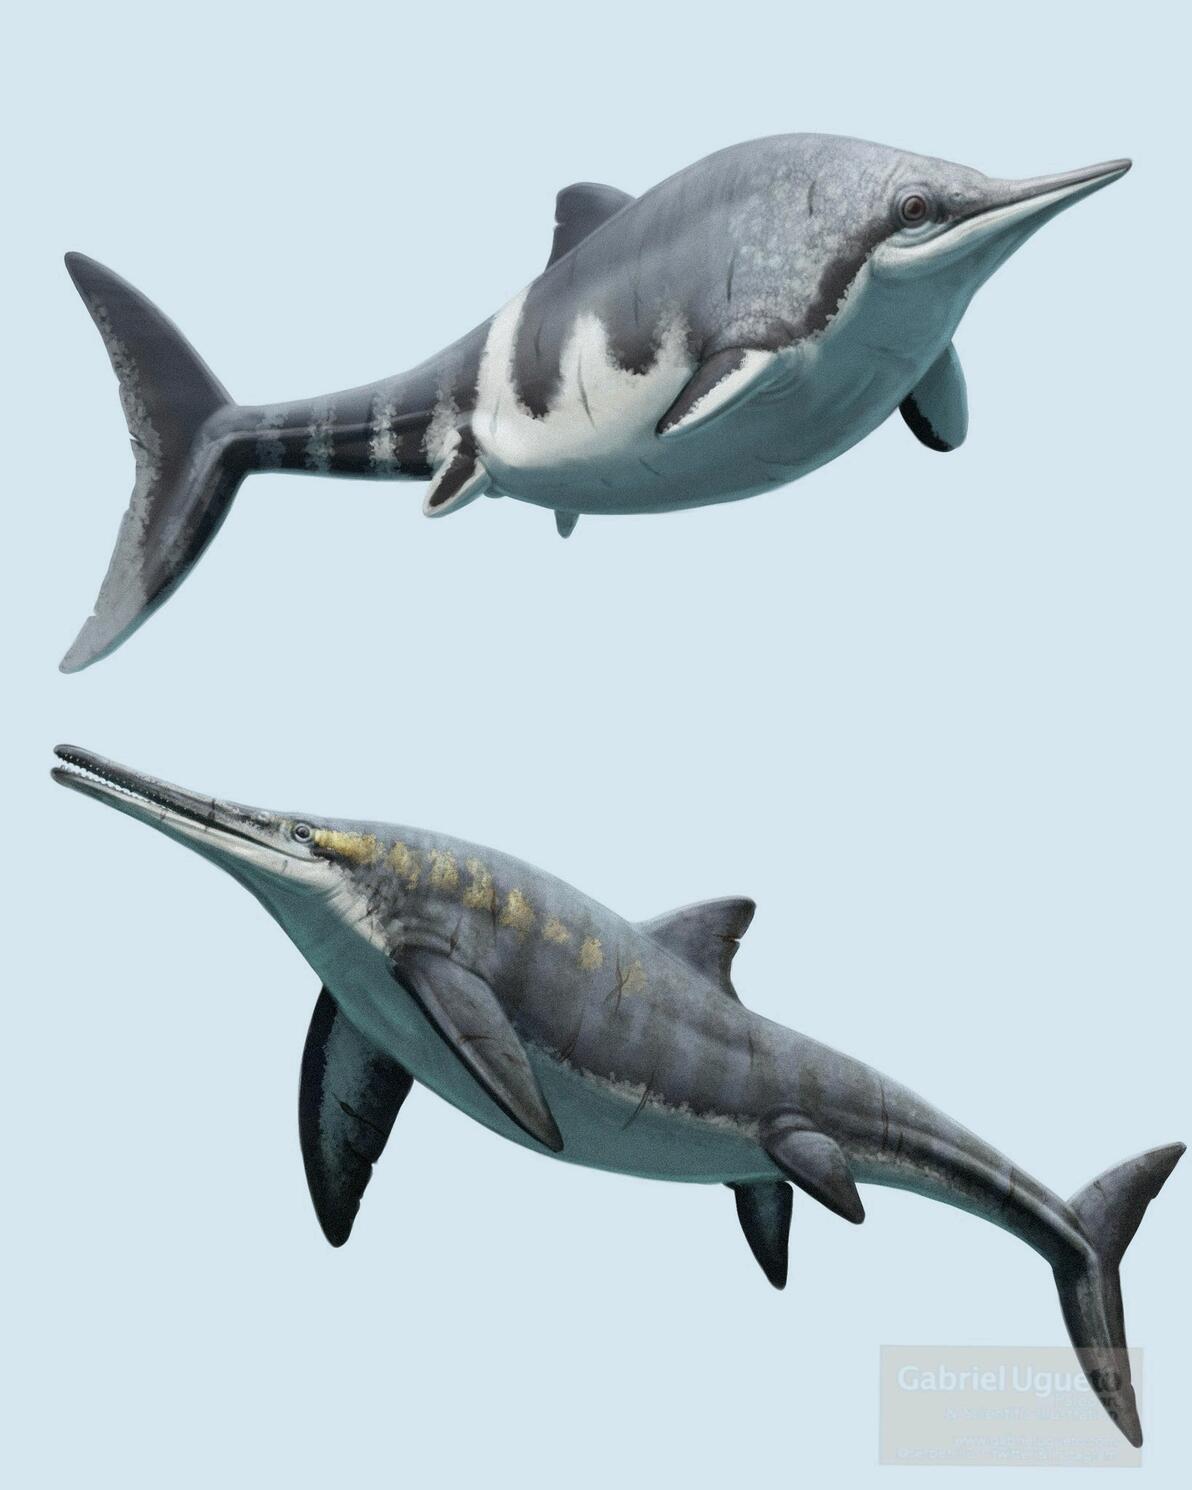
上图小鳍鱼龙,下图为扁鳍鱼龙
终章
落日余晖洒在9940-9630万年前的的白垩群-西穆里布尔尼灰质白垩组的海面上,鱼龙家族的末裔——巴诺夫卡佩氏鱼龙游过那曾经生机勃勃滋养过他祖祖辈辈的港湾之中,一跃而起,扎进水面,搜寻着为数不多的猎物。
萨拉托夫州位于俄罗斯的西南部,与哈萨克斯坦接壤,伏尔加河从这里流过。从地理位置上看,萨拉托夫州位于欧洲的内陆,但是却发现了许多远古海洋生物的化石。上个世纪末,古生物学家佩尔武索夫(Evgeniy Pervushov)在萨拉托夫州地区发现了一具化石(编号 SSU 104a/24),化石属于鱼龙类的不完整头骨。
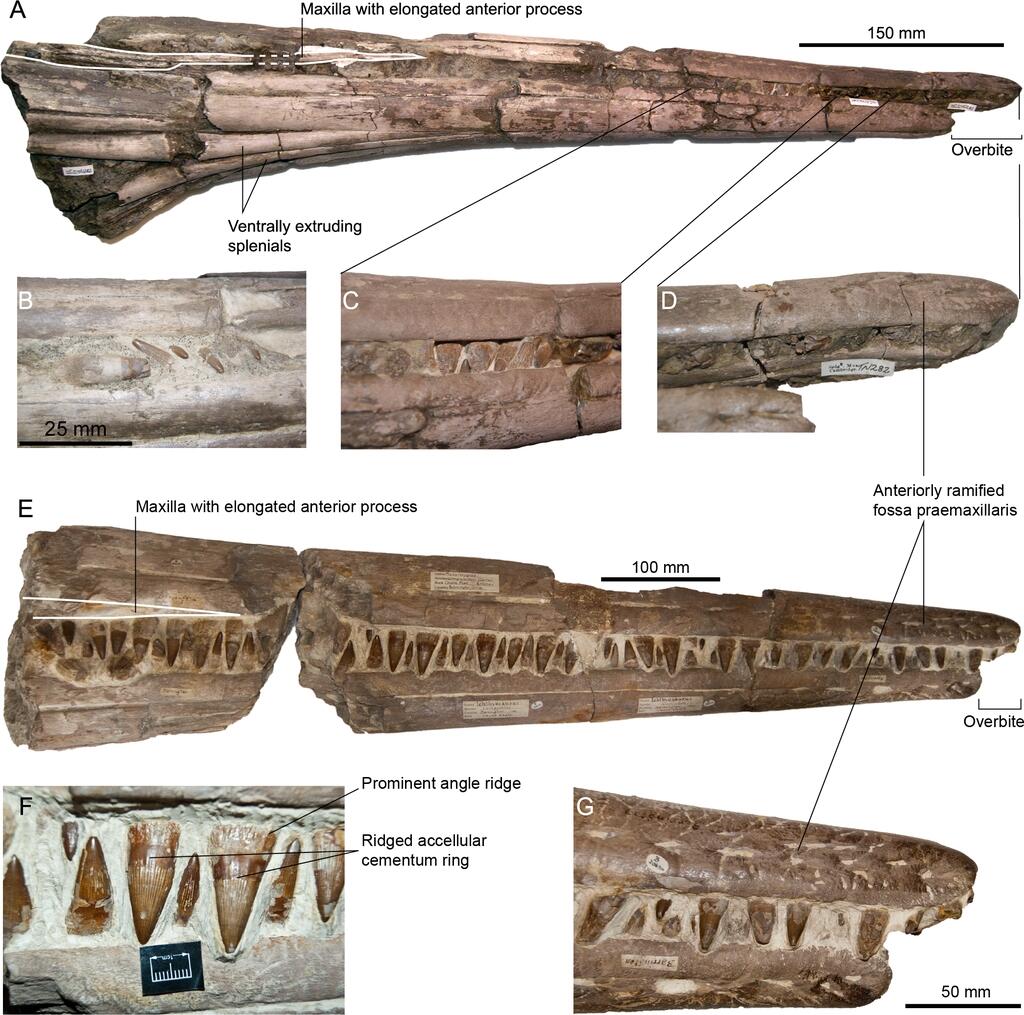
佩氏鱼龙体长约5.5米,体重约2吨,它的脑袋很大,其中大部分是尖长的口鼻部,在细长的嘴中长着两排锋利的牙齿,齿冠相对粗大拥有着方形的牙根的基础上,吻部大幅加厚,牙齿特大,甚至出现了大幅度的磨损和锐利的剪切咬合面。
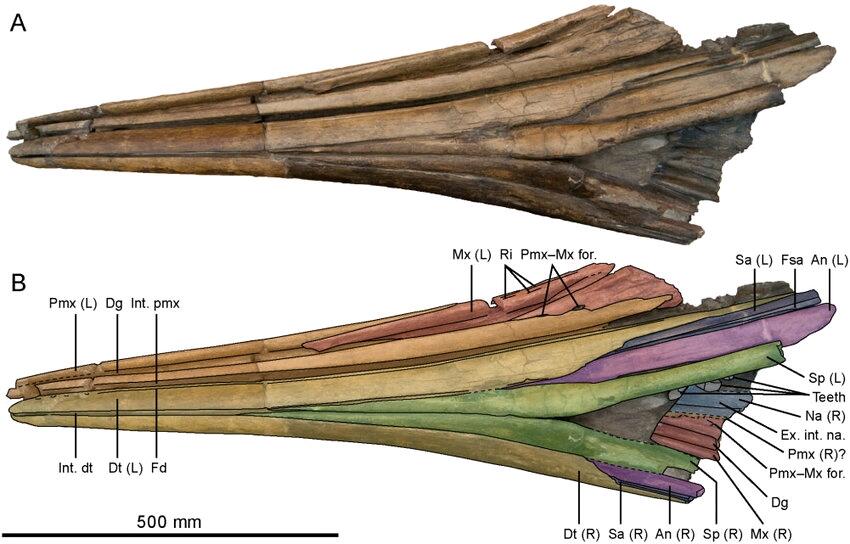
巴诺夫卡佩氏鱼龙Pervushovisaurus bannovkensis的化石原件,足见其吻基部的粗壮程度。尽管预估颅基长仅有约1.3-1.4m,但正模标本最大的牙齿齿冠长度达到了25mm,已经和早侏罗世的切齿鱼龙类处于同一水平。
这几点特质与掠食性抹香鲸类和海鳄类中的地蜥鳄亚科产生了趋同,是长期捕食大型猎物才会产生的特质。暴露了其掠食者的本性。在佩氏鱼龙的嘴巴基部两侧长有一对鼻孔,它们正是通过鼻孔呼吸空气,别忘了佩氏鱼龙是靠肺部呼吸的爬行动物。在鼻孔之后,则是一对圆溜溜的大眼睛,表明佩氏鱼龙有极佳的视力,能够在光线不足的环境中靠视觉寻找猎物。 然而,名为充冷事件的浩劫将这里变为了死亡之海。距今约1.12亿年前的阿尔布期,海平面不断上升,直至森诺曼晚期已经达到了不可控的境地,比如今的海平面高出150米,巨大的洋流源源不断地将热带的热量输送到极地,热带的温度前所未有的冷,再加上海洋缺氧,珊瑚礁迅速崩溃,食物链的变动影响最大的自然是鱼龙上龙这类的顶级掠食者。
而9400万年前加勒比大火成岩层海底火山的喷发更是雪上加霜,给本就破碎不堪的鱼龙家族补上了致命一击……因而它寻找很久也无果而终。
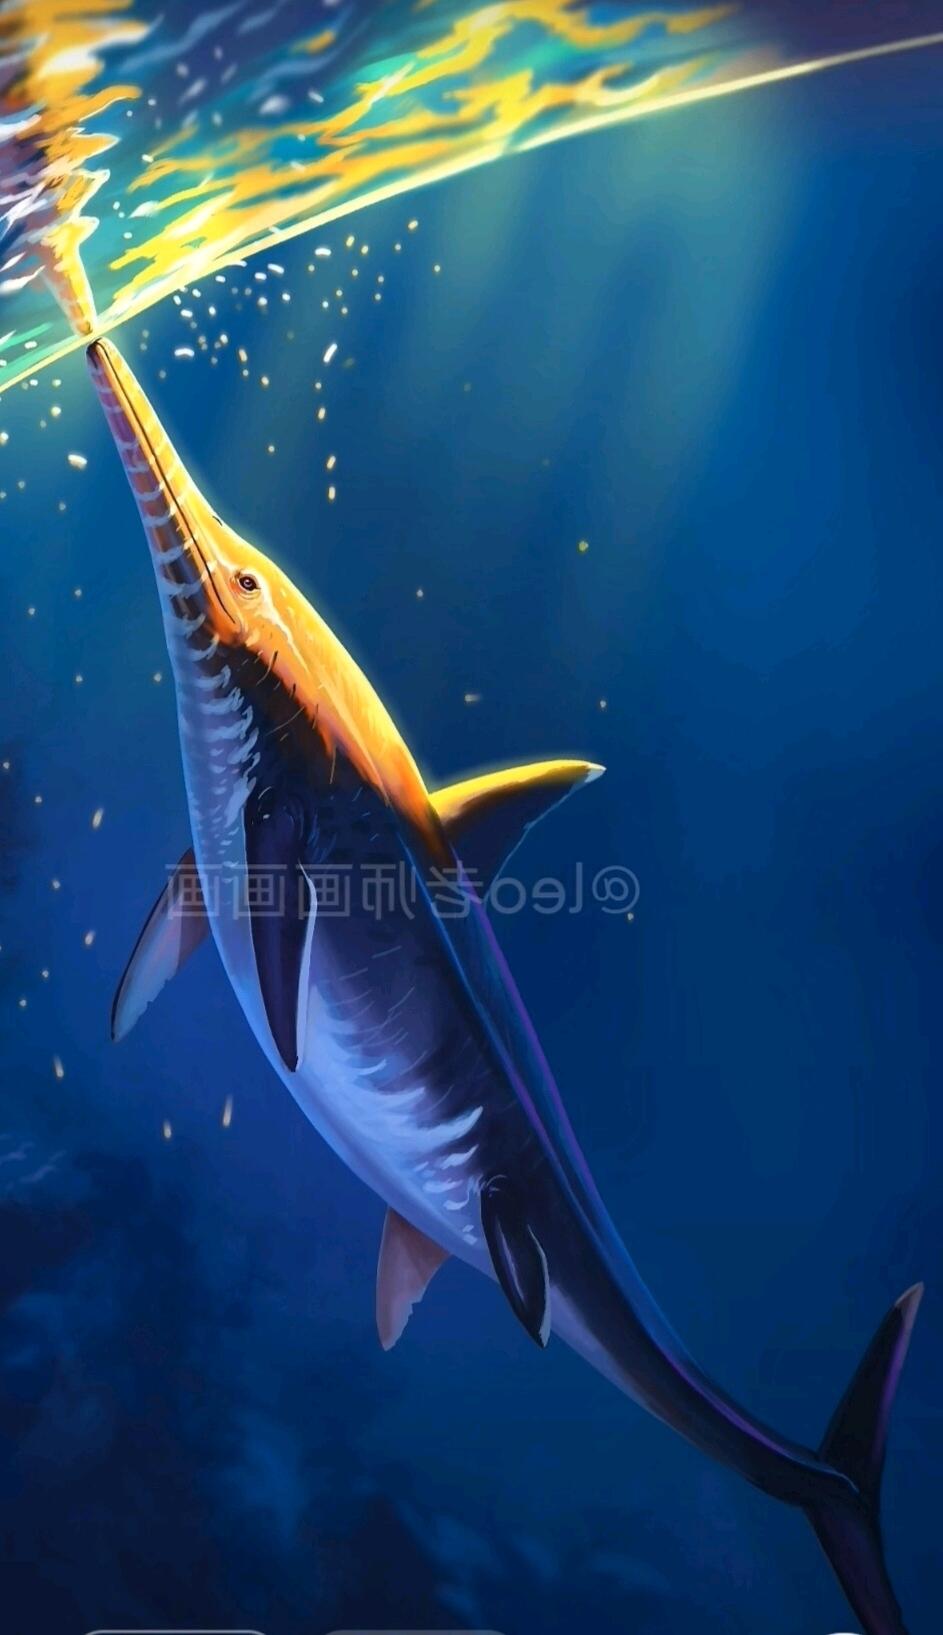
那只佩氏鱼龙浮出水面,夕阳斜照下来好像镶了一层金边,它深吸一口气潜入水中,作为最后的鱼龙类,佩氏鱼龙并没有表现出颓势,从大量保存的牙齿化石看,其牙齿呈圆锥形,顶部尖锐,适合穿刺,是捕鱼的利器。
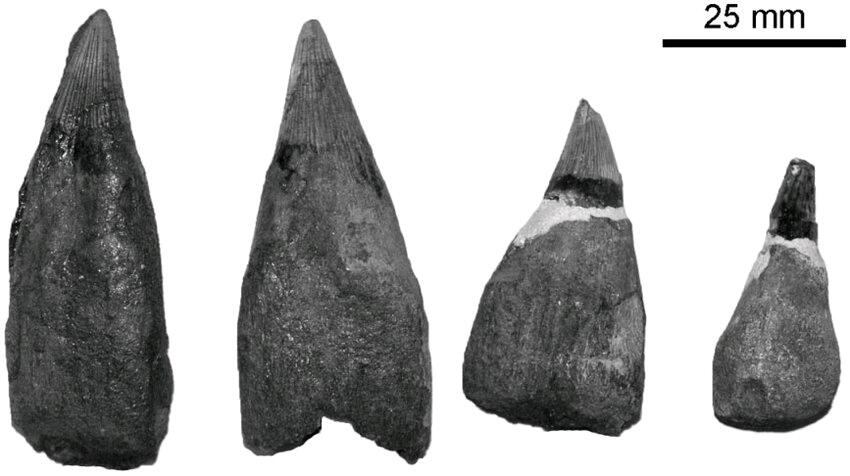
刺穿型的牙齿,加上高速的身体,无不代表着佩氏鱼龙能够高速穿行于大洋之中捕食鱼类,就像今天的剑鱼那样。
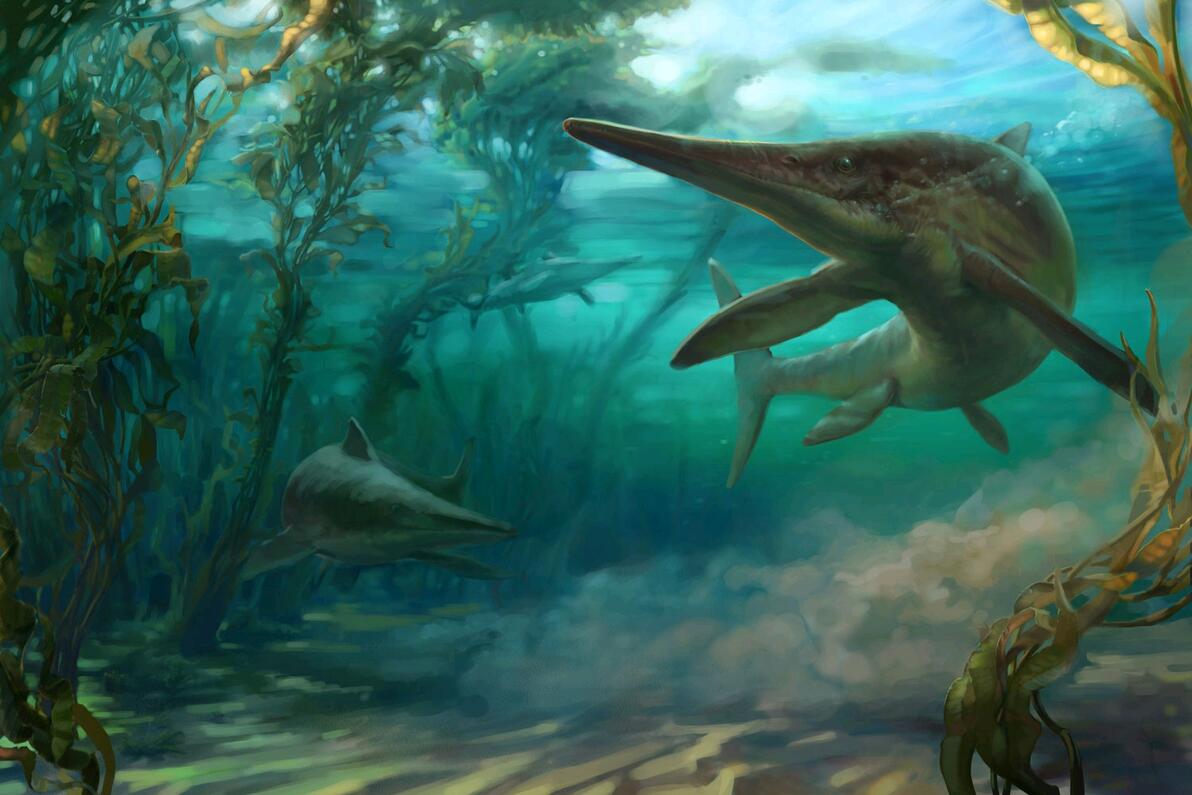
眼前若隐若现的鱼群,让它好像看见了希望,但一切不过是回光返照而已,当它向“鱼群”冲过去的时候,那不过是一阵幻影,而它最终游向那暗无天日的深海之中,不见踪影……
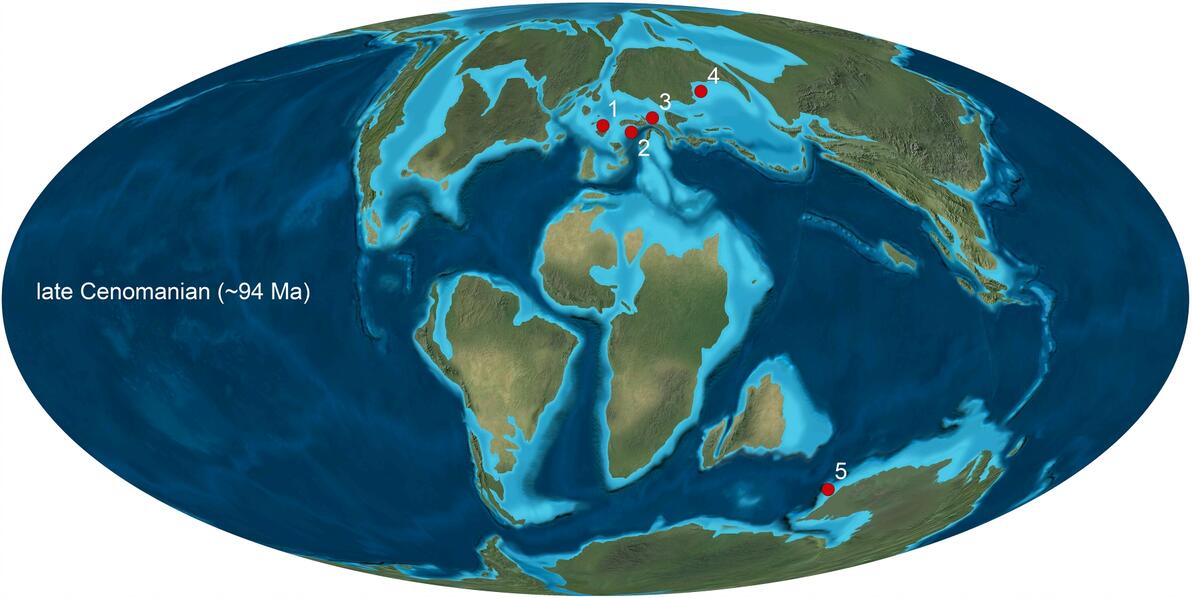
中晚森诺曼期的澳洲与南极洲连成一片,自古便与与其他大陆隔绝。于是这里便成为这些前朝遗老最后的归宿。然而,曾经适宜生存的部分如今也受到了灭绝事件的影响,往昔的生态已逐渐凋零,来自南半球的鱼龙类驻守于此,静静的守候着旧世界最后的遗物彻底沉睡于坟茔的那天。
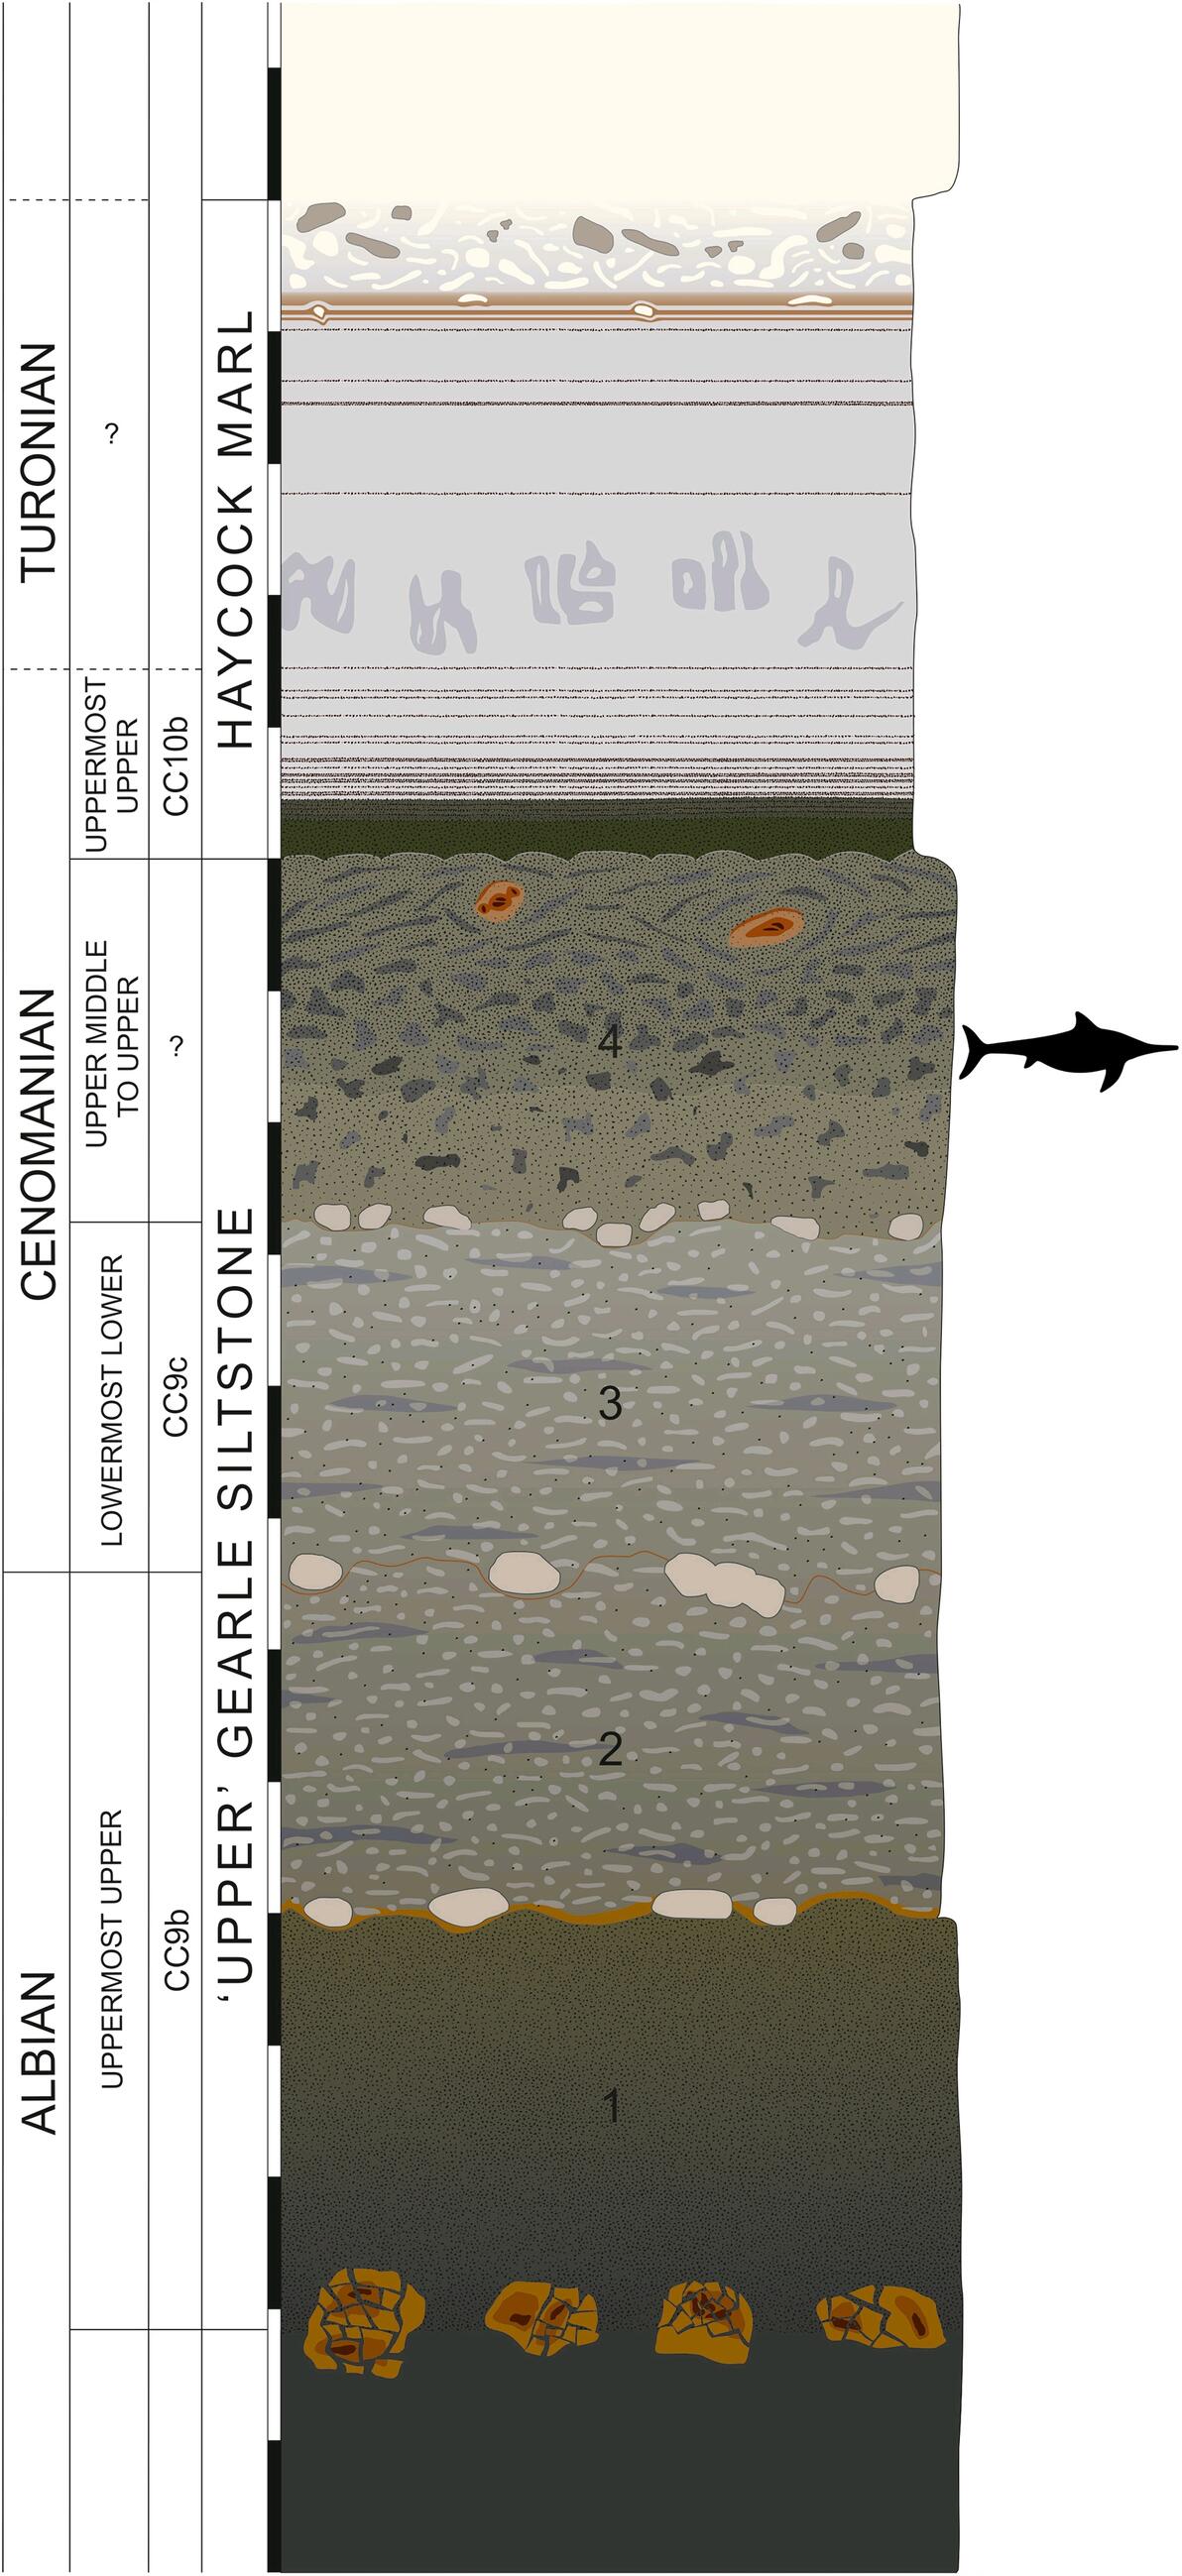
在亿万斯年的时光长河里,鱼龙家族的演化历程几乎完美诠释了中生代生态系统的多样化。他们的祖先在二叠纪末的大灭绝中幸存,一次又一次地在历史的长河中挺了过来。他们的体态趋于完美,成为了无数物种趋同演化的标准。然而,面对森诺曼期—土仑期的“诸神黄昏”,鱼龙家族最终未能逃脱灭绝的命运,没有留下任何血脉。
鱼龙的故事,不仅仅是关于灭绝,更是关于生存、适应和进化的史诗。它们的存在,提醒我们,每一个生命,无论多么渺小,都有其存在的意义和价值。
“造化之妙,看似万变,却始终如一”
演化不容许真空,距今约3000多万年前,一只不起眼的崖蜥跳入大海……
参考文献:
1.A large aberrant stem ichthyosauriform indicating early rise and demise of ichthyosauromorphs in the wake of the end-Permian extinction”(https://geomuseum.pku.edu.cn/detail/92.html)
2.Rediscovery of two casts of the historically important `Proteo-saurus', the first complete ichthyosaur skeleton (https://ui.adsabs.harvard.edu/abs/2022RSOS....920966L/abstract)
3.http://www.uux.cn/viewnews-110084.html
4.Rediscovery of two casts of the historically important ‘Proteo-saurus’, the first complete ichthyosaur skeleton.(https://royalsocietypublishing.org/doi/10.1098/rsos.220966)
5.Benjamin C. Moon (2019). "A new phylogeny ofichthyosaurs (Reptilia: Diapsida)".
6.Jair lsrael Barrientos-Lara; Jesús Alvarado-Ortega; MartaS.Fernández (2020)."Acuetzpalin carranzai gen et sp. nov. A newophthalmosauridae (lchthyosauria) from the Upper Jurassic of Durango, NorthMexico"
7.Motani R, Jiang DY et al (2014). A basal ichthyosauriform with a short snout from the Lower Triassic of China. Nature. doi:10.1038/nature13866
8.Martin, J. E., Vincent, P., Suan, G., Sharpe, T., Hodges, P., Williams, M.,... & Fischer, V.(2015). A mysterious giant ichthyosaur from the lowermost Jurassic of Wales. Acta Palaeontologica Polonica,60(4),837-843.
8.Nicholls, E. L., & Manabe,M.(2001). A new genus of ichthyosaur from the Late Triassic Pardonet Formation of British Columbia: bridging the Triassic-Jurassic gap. Canadian Journal of Earth Sciences,38(6),983-1002.
9.Fischer, V., Guiomar, M.,& Godefroit,P.(2009).High diversity in late Early Creta
10.Effects of body plan evolution on the hydrodynamic drag and energy requirements of swimming in ichthyosaurs(https://royalsocietypublishing.org/doi/10.1098/rspb.2018.2786)
11.Susana Gutarra,(https://royalsocietypublishing.org/doi/10.1098/rspb.2018.2786)1.Moon, B.C. (2019).
"A new phylogeny of ichthyosaurs (Reptilia: Diapsida)".
Journal of Systematic Palaeontology.
12. Motani, R., Jiang, D.Y., et al. (2014).
"A basal ichthyosauriform with a short snout from the Lower Triassic of China".
Nature.
DOI:10.1038/nature13866
13. Fischer, V., et al. (2023).
"Ichthyotitan severnensis: A giant Late Triassic ichthyosaur from the UK".
Proceedings of the Royal Society B.
14. Huang, J., et al. (2023).
"Filter-feeding adaptations in Early Triassic Hupehsuchia".
Palaeogeography, Palaeoclimatology, Palaeoecology.
15. Ji, C., et al. (2024).
"A new Hupehsuchian from the Lower Triassic Jialingjiang Formation of China".
Scientific Reports.
16. Deng, T., et al. (2024).
"Rediscovery of Himalayan ichthyosaur fossils in the Qulonggongba Formation".
National Science Review.
17. Sander, P.M., et al. (2021).
"Giant ichthyosaurs of the Triassic: Implications of new fossil discoveries".
Nature Ecology & Evolution.
18. Liu, J., et al. (2020).
"Soft-tissue preservation in Mixosaurus and the evolution of ichthyosaurian fins".
Current Biology.
19. Fischer, V., et al. (2013).
"Malawania anachronus: A Jurassic-style ichthyosaur from the Cretaceous".
Biology Letters.
20. Maxwell, E.E., et al. (2024).
"Dental specialization and feeding ecology of Temnodontosaurus".
Palaeontology.
21. Bardet, N., et al. (2014).
"Mesozoic marine reptile palaeobiogeography in response to plate tectonics".
Global and Planetary Change.
22. Lomax, D.R., et al. (2022).
"The last giants: New evidence for Late Cretaceous survival of ichthyosaurs".
Cretaceous Research.
23. Chen, X., et al. (2023).
"Tooth morphology and dietary niche partitioning in Cretaceous ichthyosaurs".
Science Advances.
24. Benton, M.J., et al. (2022).
"The Carnian Pluvial Episode and the rise of dinosaurs".
Nature Geoscience.
