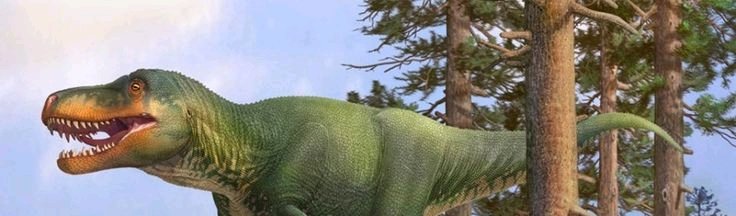

1946年,来自苏联和蒙古的联合科考团队在蒙古南戈壁省的地层耐梅盖特地层(nemgt formation)中发掘了一个大型兽脚类的头骨和部分椎体,这将会是日后恐龙史上的传奇----蒙古乃至整个亚洲可能最大的食肉恐龙遗骸在历经数千万年进入了人们的视线!
复杂的分类命名史
在特暴龙的首批材料发现约9年后,苏联古生物学者叶甫根尼•马列夫(Evgeny Maleev)根据标本PIN 551-1建立了一个全新的物种“勇士霸王龙(Tyrannosaurus bataar)” ,同年马列夫将标本PIN 551-2建立为“埃夫摩维特暴龙(Tarbosaurus efremovi)”,其余两个标本PIN 553-1和PIN 552-1则将其归属于北美的蛇发女怪龙属。
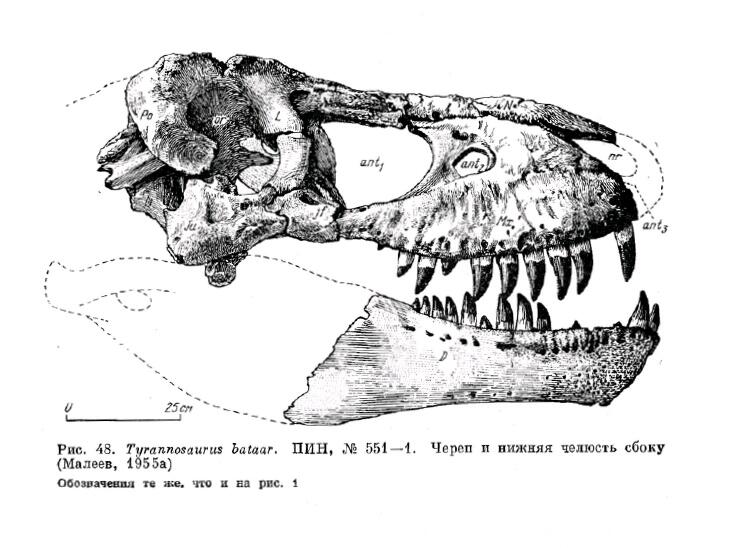
“勇士霸王龙(特暴龙)"正模的素描图
1965年,苏联古生物学者罗特杰斯特文斯基(A.K. Rozhdestvensky)重新检查了马列夫所描述的标本,并意识到这些标本应该是同一个物种的不同发育状态,并与北美的霸王龙不同,并将这些材料统统归于同一个物种“勇士特暴龙(Tarbosaurus bataar)”之下,包括马列夫在内的学者同意了这一做法,尽管部分学者仍然使用“埃夫摩维特暴龙”而非“勇士特暴龙”。
1992年,美国古生物学者肯尼斯•卡朋特(Kenneth Carpenter)又重新检查了这批样本,将除了PIN552-2之外的样本又全部归于霸王龙属下的“勇士霸王龙(Tyrannosaurus bataar)”,单独将PIN 552-2建立了新物种诺氏马列夫龙(Maleevosaurus novojilovi)。
1995年,乔治•奥尔舍夫斯基(George Olshevsky)又创立了一个新属“成吉思汗龙(Jenghizkhan)”,模式种“勇士成吉思汗龙”(Jenghizkhan bataar),同时承认纳摩盖吐地层同时存在三个不同的霸王龙科属。此外,还有前前后后归入“后弯齿龙属”“恐齿龙属”(现为无效),直到1999年之后,这些样本才又基本统一归于“勇士特暴龙/勇士霸王龙”……
“勇士霸王龙”还是“勇士特暴龙”?
尽管样本归类得到了极大程度的统一,但学者对于该保留特暴龙属还是作为霸王龙属下的第二个物种产生了一些分歧,主要信息渠道来自媒体的爱好者们则更是对“勇士霸王龙”还是“勇士特暴龙”产生了大问:“特暴龙”是不是就是“霸王龙”?“特暴龙”和“霸王龙”有什么区别?
2003年一篇标题为------Giant theropod dinosaurs from Asia and North America:Skulls of Tarbosaurus bataar and Tyrannosaurus rex compared的论文发表,详细的对“特暴龙”和“霸王龙”的头骨做出了比较:
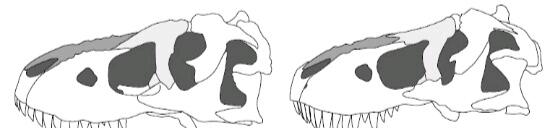
特暴龙ZPAL MgD−I/4(左)和霸王龙AMNH5027(右)头骨侧视图
🔴霸王龙前上颌骨和上颌骨接触面外的开窗面积占了接触面的三分之一,而在特暴龙中往往更小甚至看不到;
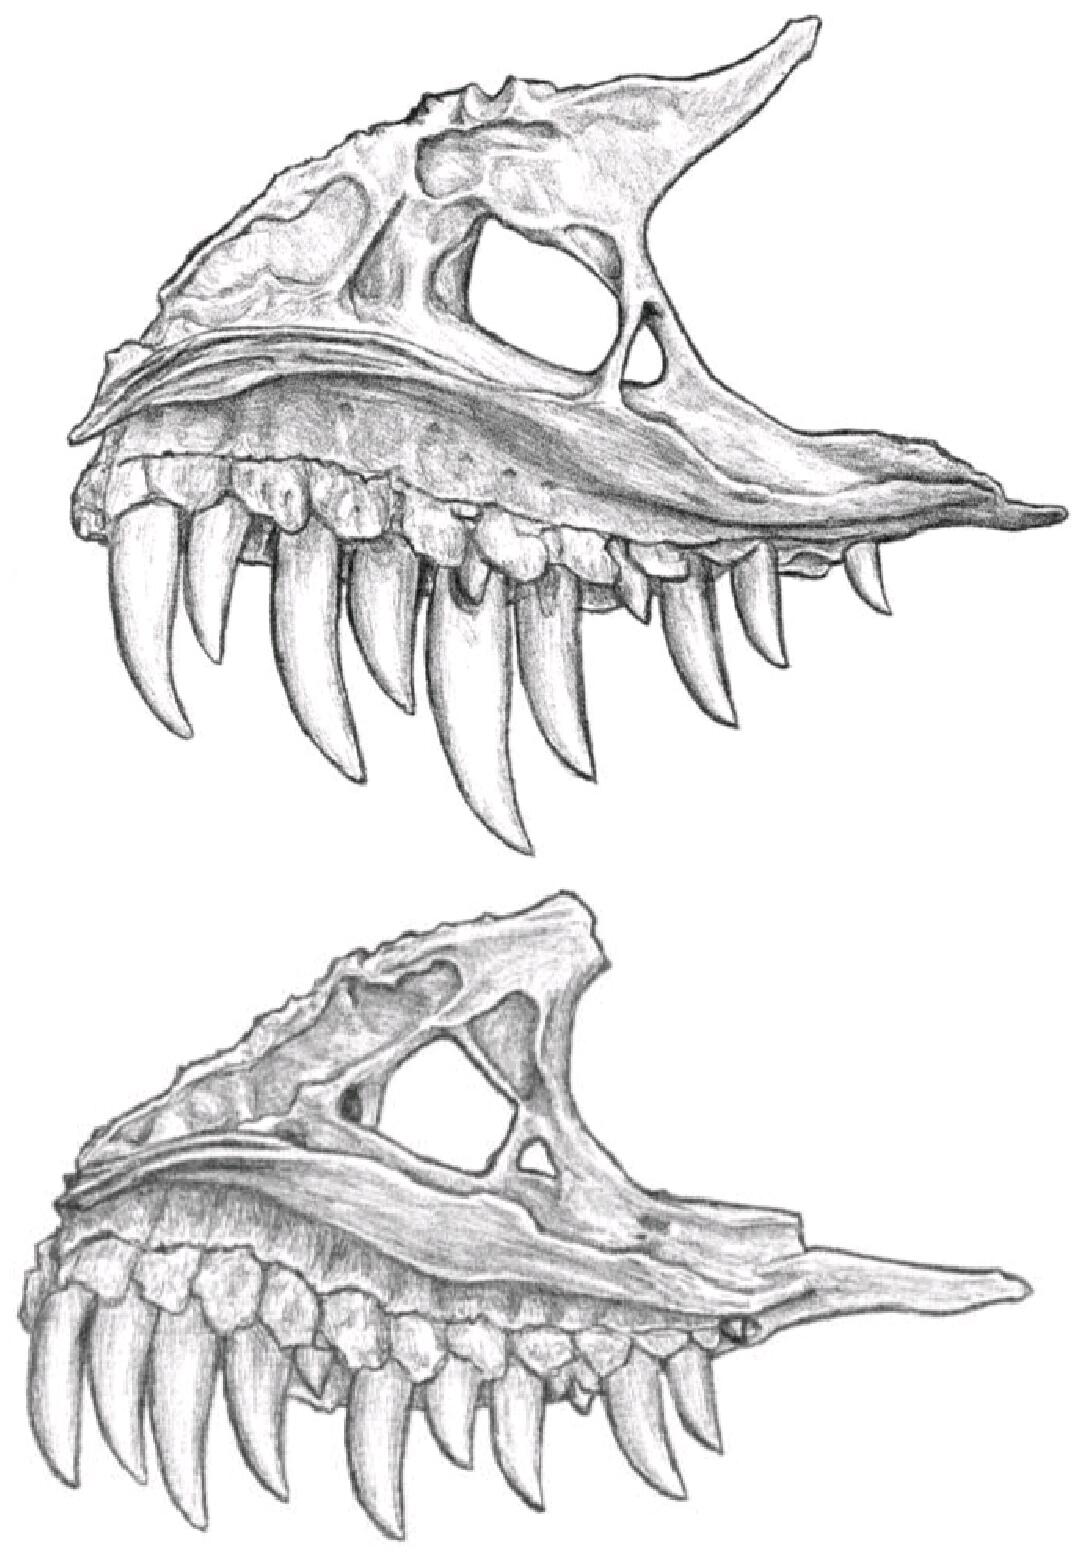
霸王龙BHI3033(上)和特暴龙ZPAL MgD−I/4(下)的上颌骨(未按实物比例)
🔴特暴龙的上颌骨后端升突巨大,且与泪骨接触的前端围绕其背侧后端形成了一层鞘,而霸王龙的则偏薄且形似板状;
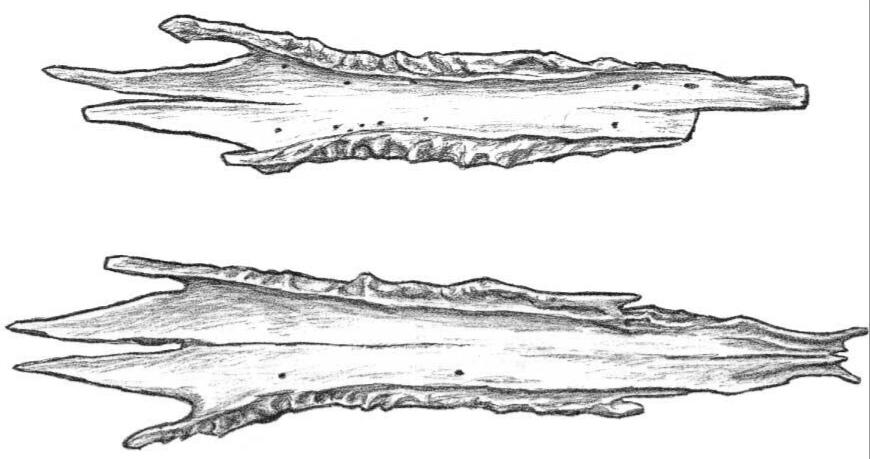
特暴龙ZPAL MgD−I/4(上)和霸王龙BHI3033的鼻骨腹侧视图(按实物比例)
🔴特暴龙鼻骨对泪骨前支的支撑与霸王龙不同,霸王龙上颌骨与泪骨前支衔接的复杂关节在特暴龙中则被体现为几乎水平、平滑的凹槽,且特暴龙通过鼻骨关节面的脊使鼻骨与上颌骨衔接更为紧密,且霸王龙的鼻骨要更宽,鼻骨缺乏扩张和泪骨通道可能是特暴龙的衍征,但也可存在于分支龙属中;
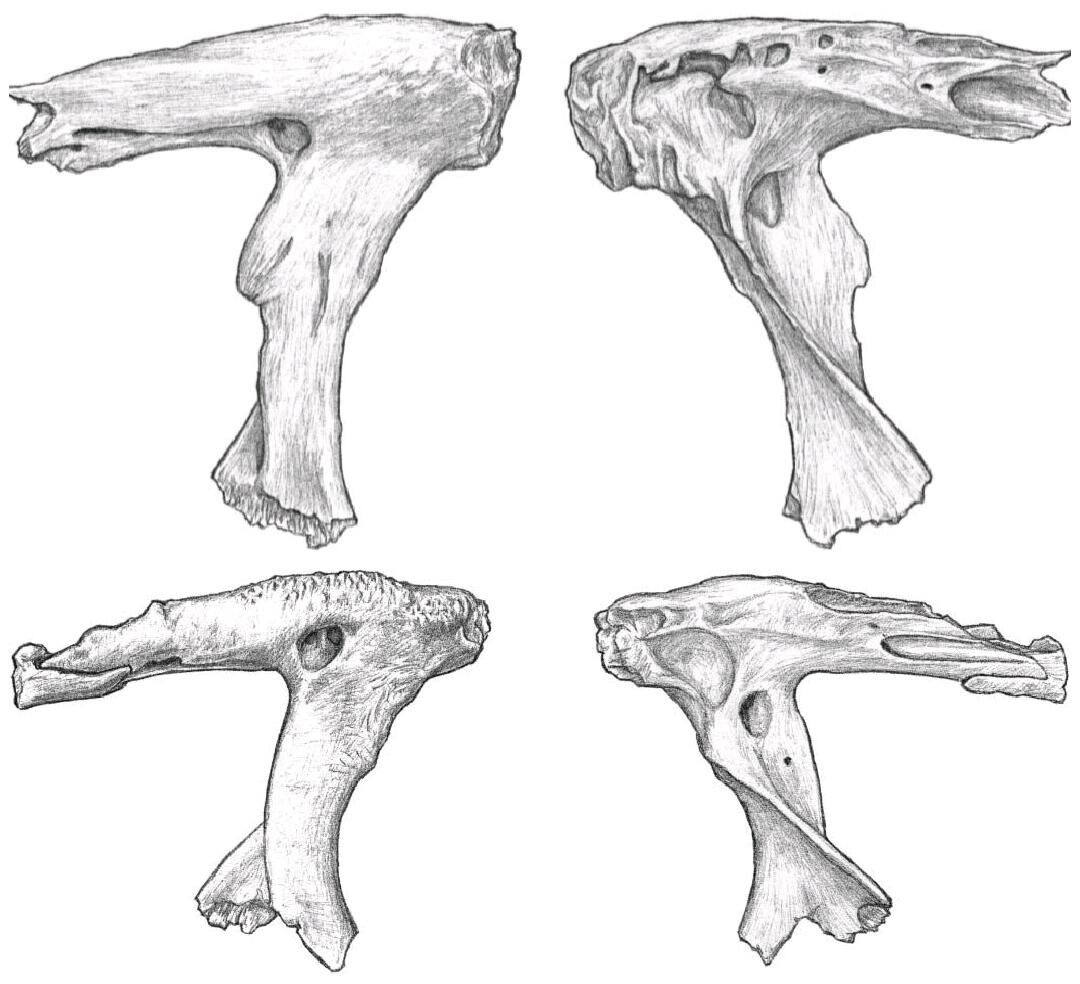
霸王龙BHI3033(上)和特暴龙ZPAL MgD−I/4(下)泪骨外侧(左)和内侧(右)视图(未按实物比例)
🔴霸王龙的泪骨背侧顶端相比特暴龙的更为膨大,特暴龙的泪骨前支逐渐向前端变窄,相比霸王龙的更为细长且前支关节面不具有霸王龙的明显分叉而是由一个短的内侧裂分开并与上颌骨最坚固的后端相连接,背侧表面被前额骨与额骨形成缝合线的褶皱脊所垂直分割,在霸王龙中该表面是几乎光滑的,特暴龙泪骨支中段有一个大的容纳血管孔,在霸王龙中该孔的位置更靠前;
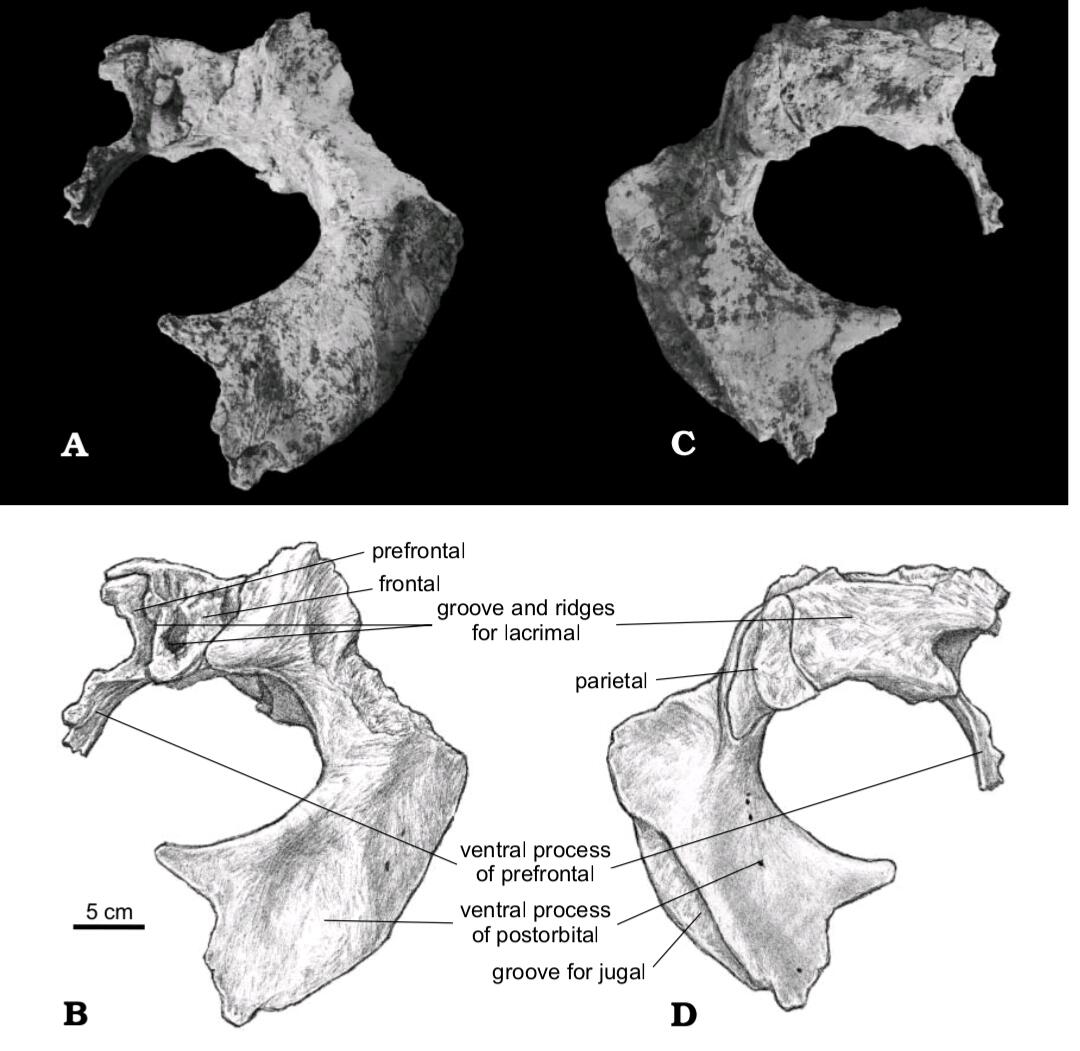
特暴龙ZPAL MgD−I/4的前额骨,眶后骨和顶骨的外侧(A,B)和内侧(C,D)视图.(比例尺5cm)
🔴特暴龙前额骨外侧有几个连接泪骨的脊,并支撑后一块骨头后内侧的大部分,前额骨腹侧的定向通道与泪骨背侧的背后部分相贴合,使得内侧脊的1/4位于泪骨的垂直支上,前额骨这个腹侧通道在霸王龙中更小(简而言之就是霸王龙前额骨与泪骨的接触面积比特暴龙的更小);
🔴特暴龙腭骨上的颧骨-泪骨突背后侧与泪骨最腹侧部分不接触,这在头骨侧视图中可见,而霸王龙这点是不可见的;特暴龙的犁骨前突明显延伸至了前上颌骨的腭面,这种情况在霸王龙中也并不明显;
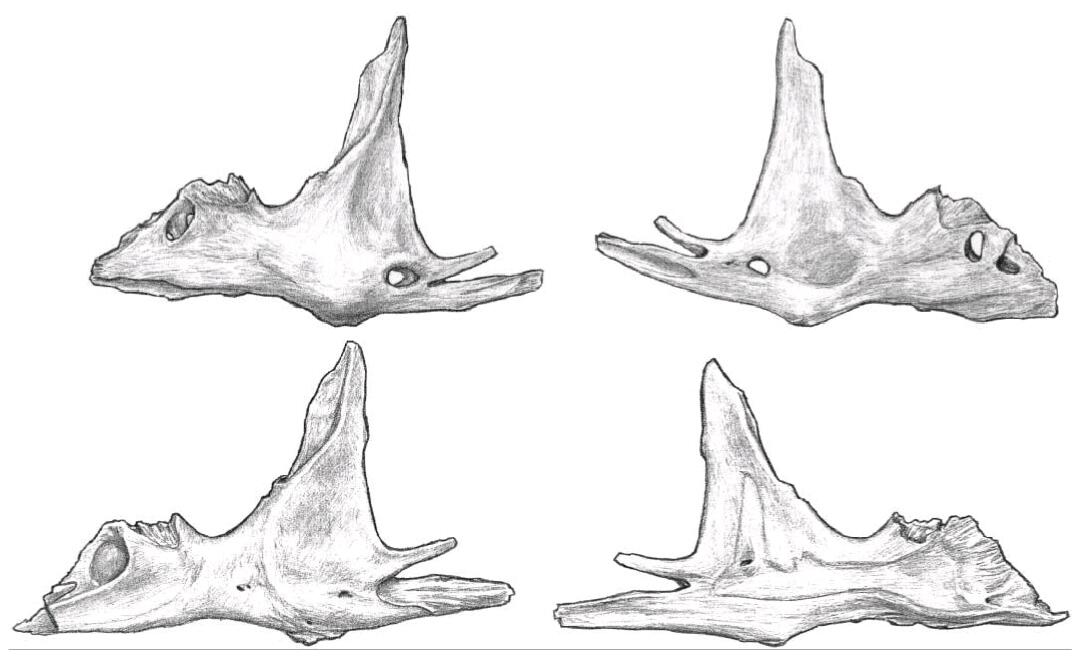
霸王龙BHI3033(上)和特暴龙ZPAL MgD−I/4(下)颧骨外侧(左)和内侧(右)视图
🔴特暴龙和霸王龙颧骨的后支同样地被一个三角形缺口分为两个突,背侧明显小于腹侧突,这两个突包围着方颧骨的前端,方颧骨前端几乎与颧骨后支的整个腹侧突横向重叠,但特暴龙的腹侧突在腹侧最厚并向背侧发展中变薄,而霸王龙的腹侧突更为凸出且厚度变化也更均匀;
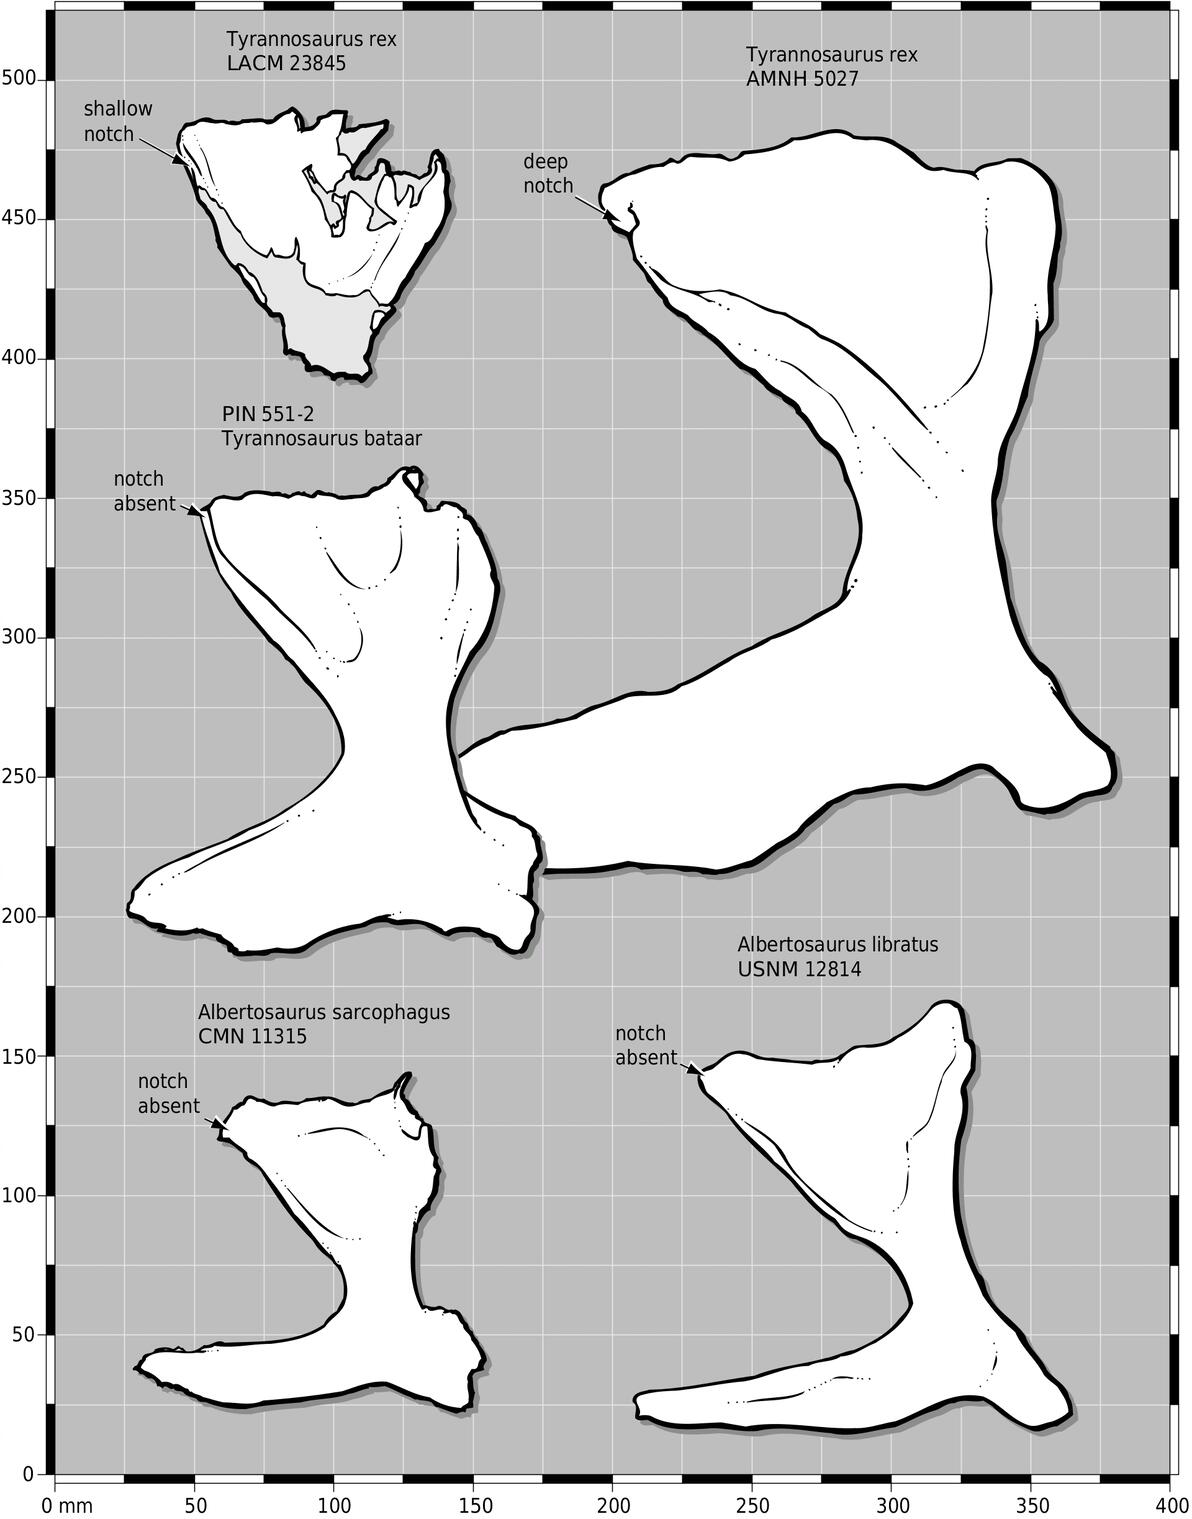
各种暴龙类的方颧骨
🔴特暴龙的方颧骨柄比起霸王龙的要狭窄得多,特暴龙和霸王龙的方颧骨尽管同样连接于颧骨分叉的后支部分并于背侧增厚,但形状不同,特暴龙的方颧骨几乎是笔直的除了最前端有轻微的横向弯曲,而霸王龙的方颧骨中部极其内凹并横向覆盖了颧骨后支的很大一部分;特暴龙额骨与前额骨缝合所形成的两条脊将泪骨后部的沟槽分割,而霸王龙的这条沟槽又深又光滑,这些差异也反映在泪骨后顶点形态上(见泪骨描述);
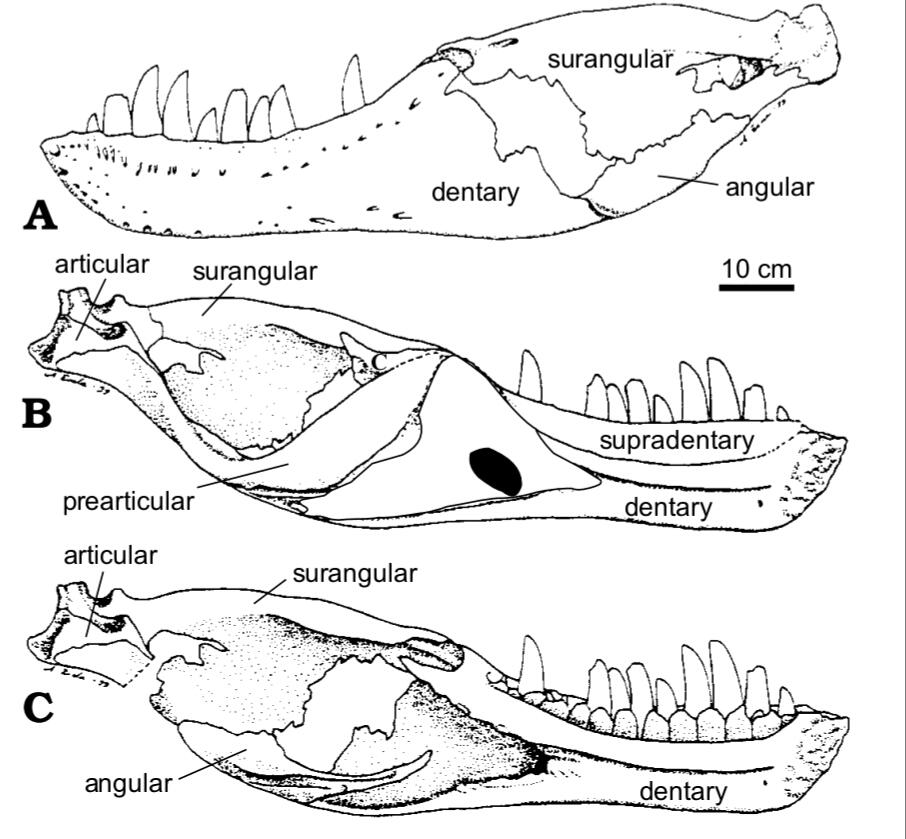
特暴龙ZPALMgD−I/4的下颌骨,A.外侧视图,B.内侧视图,C.移除前关节和夹板骨内侧视图,基于Hurum和Currie(2000),除了新重建的夹板骨
🔴特暴龙齿骨腹后侧有一个突起的方形末端,并在与隅骨衔接的横截面处向内凹陷,齿骨后末端关节和隅骨外侧表面上完美匹配的垂直脊衔接,而在霸王龙隅骨中则是光滑且没有相邻脊的凹槽与隅骨的腹后侧末端衔接;
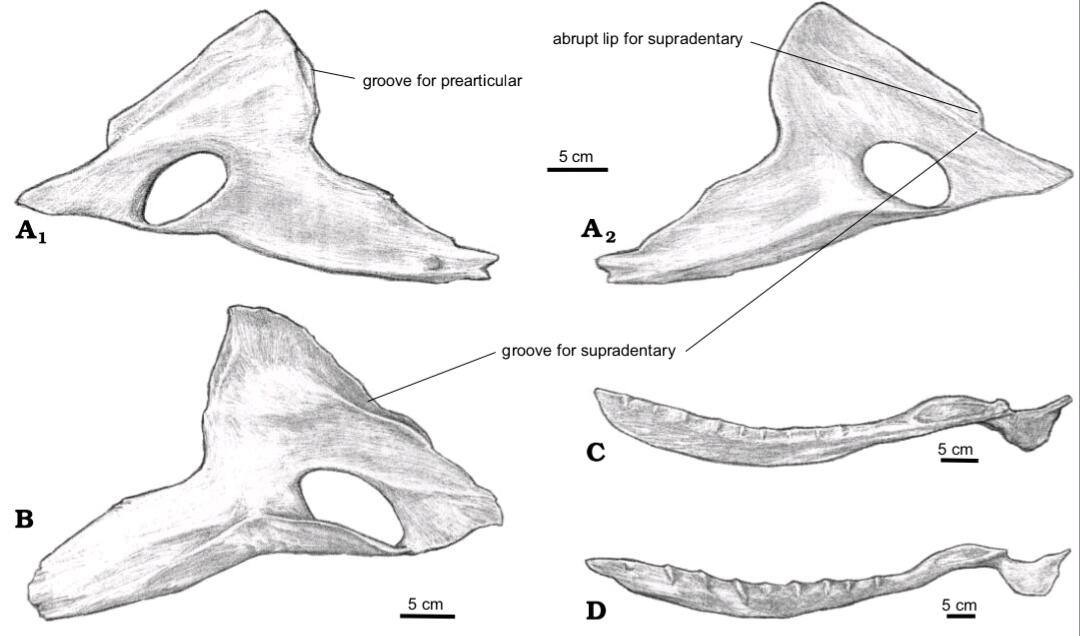
A.重建的特暴龙夹板骨(基于ZPALMgD−I/34和MgD−I/4)内侧(唇侧)(A1)和外侧(A2)视图,B.霸王龙BHI3033左夹板骨侧视图,C.特暴龙ZPALMgD−I/4上齿骨内侧视图,D.霸王龙BHI3033上齿骨内侧视图.(比例尺5cm)
🔴霸王龙的夹板骨腹缘相比特暴龙更为倾斜并且前端顶部的位置更高;
🔴特暴龙和霸王龙的齿列存在一定差异:特暴龙上颌骨牙齿数为12~13颗,齿骨为14~15颗(霸王龙上颌骨牙齿数则为11~12颗,齿骨12~14颗)。
简单而言,特暴龙外观上的差异在于:鼻骨没有霸王龙宽,因此头骨相对于霸王龙而言会狭窄一些,正脸没有霸王龙那么宽厚,上颌骨和齿骨的牙齿数目相较于霸王龙略多,眼眶相较于霸王龙更大,泪骨最后端没有霸王龙膨大,因此泪骨角质可能不如霸王龙发达,这也是为什么史前行星特暴龙头部没有霸王龙那么醒目角质的原因(给史前行星剧组严谨性点赞👍),此外,特暴龙的前肢比例在霸王龙科内几乎是最小的。
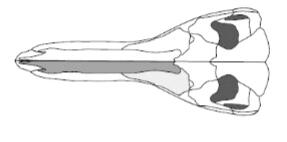
03年文章线稿,万恶之源了属于是……猜猜这嘴能戳死几只棘龙?(误)
(当然特暴龙嘴窄只是相对而言,2003年文章特暴龙头骨俯视线稿图存在问题,大致宽度可参照标本GIN 107/1,下图)
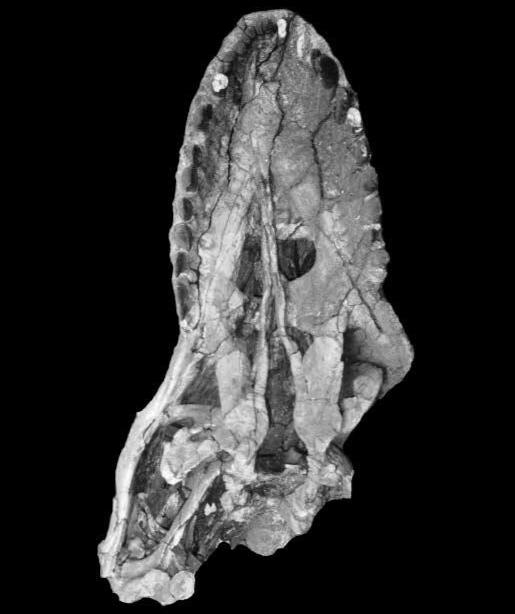
03年同文的GIN 107/1腹侧视图,保留了变形程度较小的头骨(前颌骨有受挤压,谨慎镜像翻转),可见特暴龙大致头骨形态
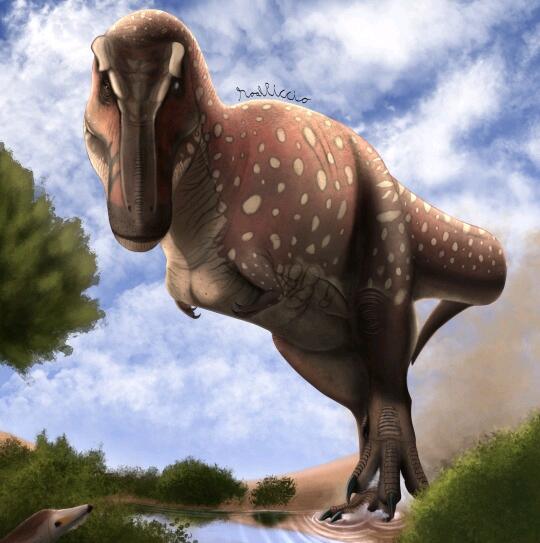
史前行星特暴龙的绘画图(来源Tumpik)
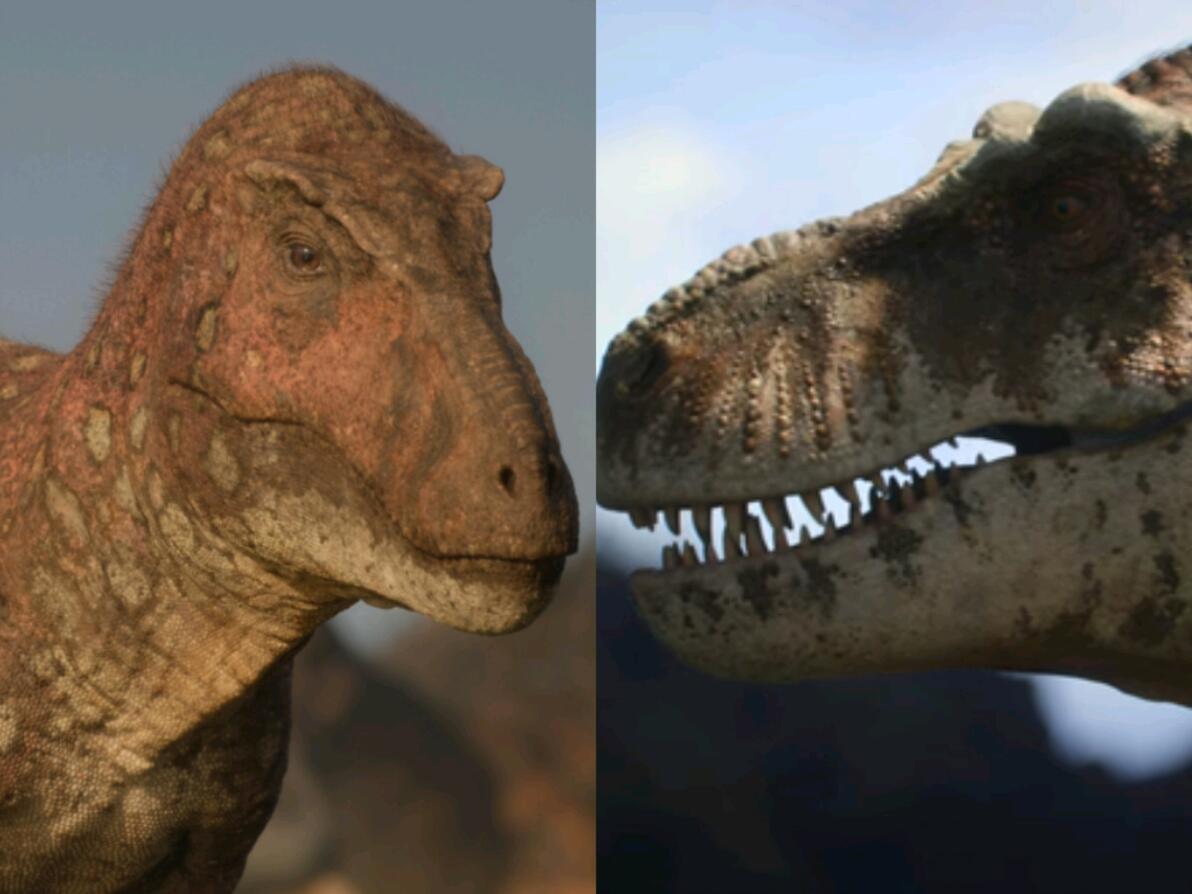
情头get(误)
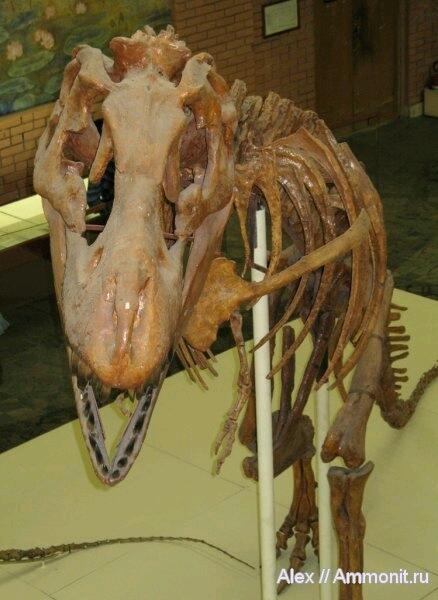
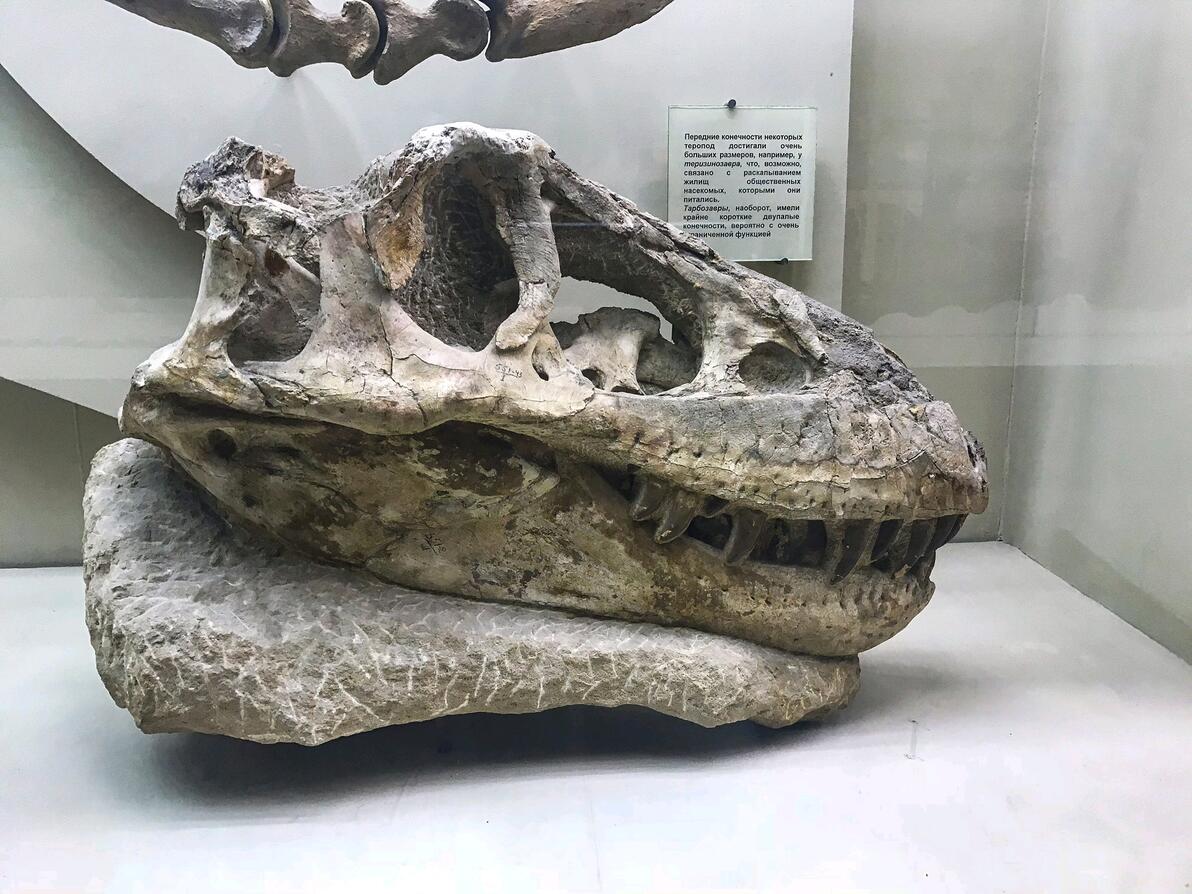
俄罗斯科学中心的特暴龙装架,可见特暴龙的嘴相对霸王龙更“尖”
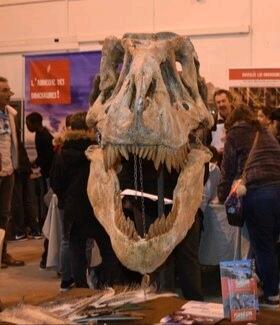
特暴龙头骨正视图
综上所述,特暴龙和霸王龙是具有相当多细致骨学差异的两属动物,目前理应保留特暴龙属有效性,目前的系统发育仍然支撑特暴龙属独立。
“蒙古可汗”的食谱和成长之路
在距今约7000万年前(晚白垩世马斯特里赫特期)的耐梅盖特,特暴龙并不是当地唯一的食肉动物,还有与其同科的分支龙属(遥远种5~6米,阿尔泰种5米)、驰龙科的恶灵龙属(较大的标本MPC D100/21估测达到了3.5米)和可能归属于快盗龙属的材料?、伤齿龙科的无聊龙属(~2米)、扎纳巴扎尔龙属(2.5米)和鸵鸟龙属(~2米),物种构成与北美的地狱溪地层(Hell creek formation)大致相仿。
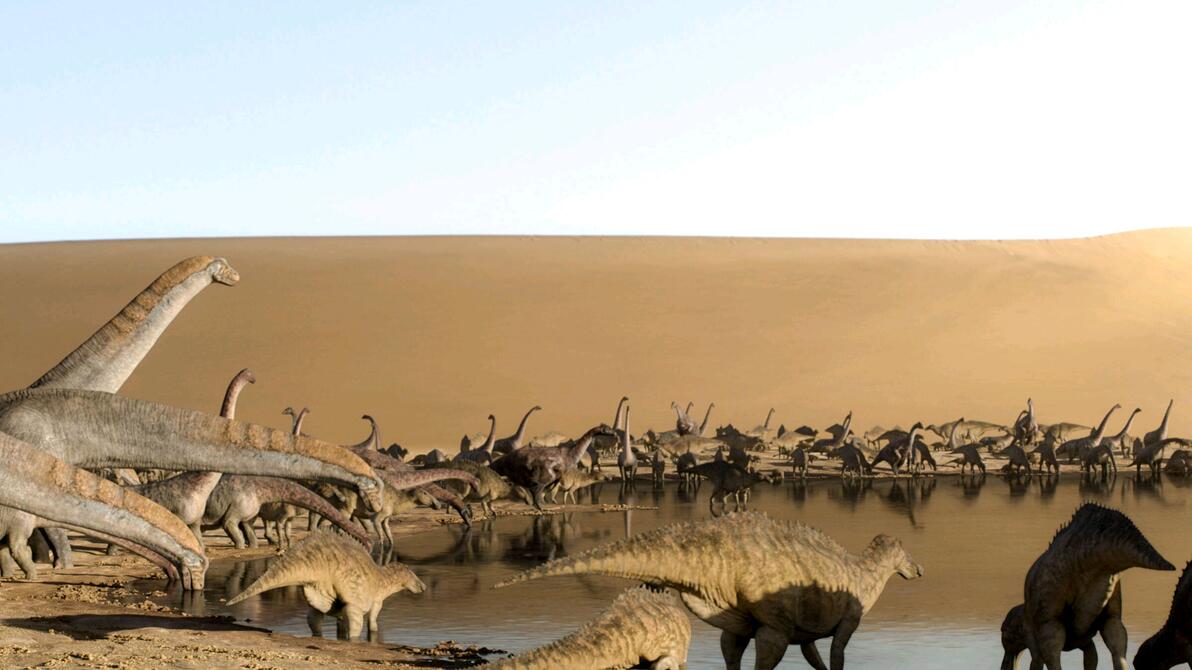
史前行星描绘旱季的纳摩盖吐
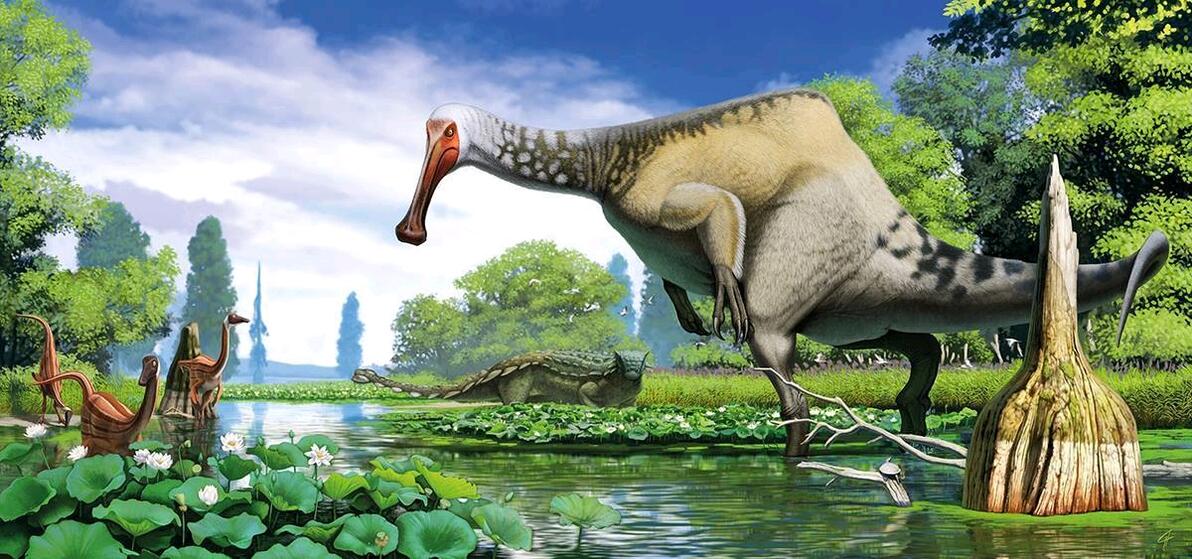
漫步在水潭的恐手龙和似鸡龙,远处一只美甲龙路过(作者:Andrey Atuchin)
当时的蒙古较今天要更为湿润,存在小溪、河道、泥滩和浅湖,可能还有一定面积的森林覆盖,足以供养多种大型素食恐龙生存:包括来自鸭嘴龙科的栉龙属(最大标本可达12米10吨以上)和巴斯钵氏龙属(正模标本可能有11米)、甲龙科的多智龙属(最大的标本MgD I-113估测可达6.5米4吨重)和美甲龙属(5米2吨)、镰刀龙科的大哥大镰刀龙属(10米6吨)、最大的似鸟龙下目恐手龙科的科长蒙古“三奇葩”之首恐手龙属(11米9吨)、泰坦龙类的纳摩盖吐属和后凹尾龙属(12米5吨),此外还有数个不同属的窃蛋龙下目(诸如窃螺龙属、拟鸟龙属、戈壁盗龙属)、肿头龙科的平头龙属和倾头龙属、同为似鸟龙下目但属于似鸟龙科的似鸡龙属和似鹅龙属、阿瓦拉兹龙类的单爪龙属和纳摩盖吐爪龙属、多种龟鳖类、多种介形亚纲、多种鱼类、多种鸟类、鳄目的副短吻鳄属、未定种的巨型神龙翼龙科、一些哺乳动物和一种两栖动物。纳摩盖吐丰富的物种构成也允许多种掠食者可以形成不同的生态位划分。
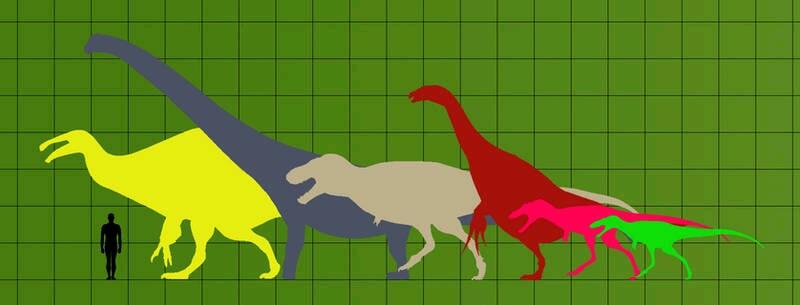
纳摩盖吐地层部分物种比例,从左至右:恐手龙,纳摩盖吐龙,特暴龙,镰刀龙,分支龙(红色遥远种,绿色阿尔泰种)
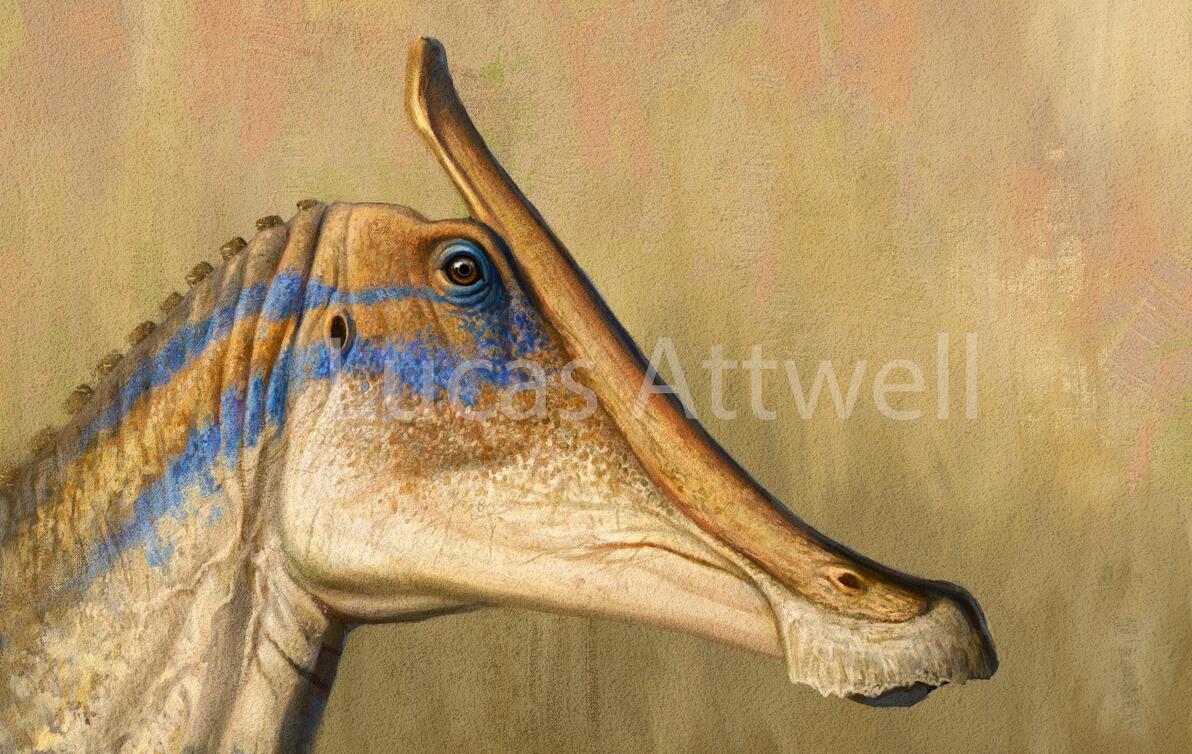
栉龙面部复原图(作者:Lucas Attwell )
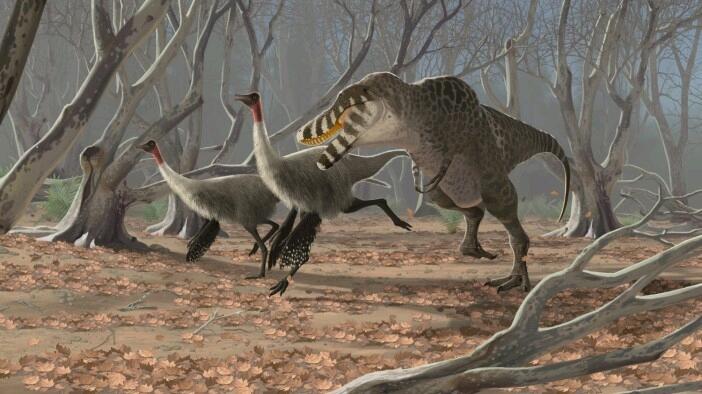
年少的特暴龙追逐似鸡龙群(作者:John Conway)
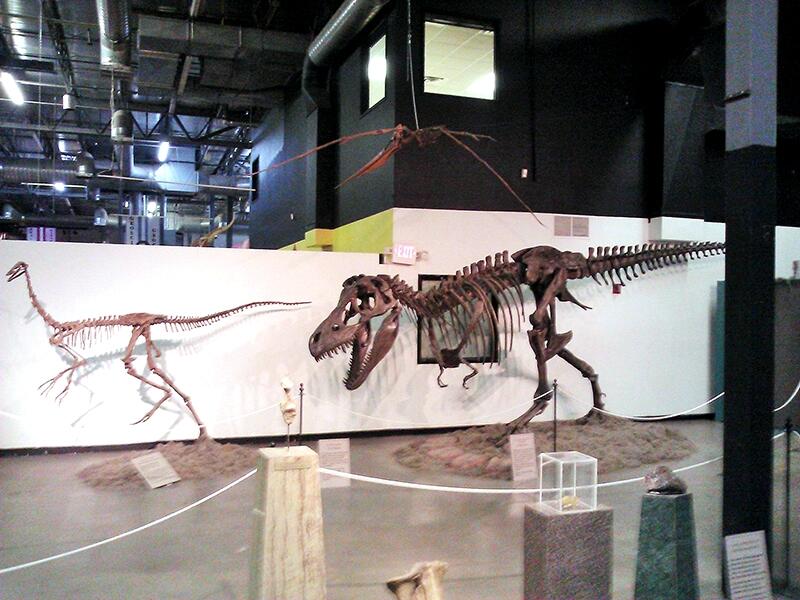
特暴龙追逐似鸡龙的装架
2019年一项根据5颗来自纳摩盖吐的特暴龙牙齿碳素研究表明,特暴龙的首选猎物是当地的蜥脚类和大型鸭嘴龙类,而为了狩猎这些猎物,特暴龙演化出了与霸王龙截然不同的咬合方式:特暴龙的泪骨背侧前末端比北美的近亲更加向腹侧弯曲并连接于上颌骨巨大的后端升突鞘中,而霸王龙的泪骨的背侧后末端由前额骨和额骨的一个脊和沟槽系统支撑并将泪骨更彻底地锁在颅基,前额骨对泪骨提供了更多内腹侧关节面,并有一个长的腹侧定突吻合至泪骨的内侧,霸王龙上颌骨的升突背侧后末端更薄并横向压缩,前额骨也更小,特暴龙上颌骨和泪骨间的牢固关节以及鼻骨缺乏的泪骨突在分支龙属中也可见。
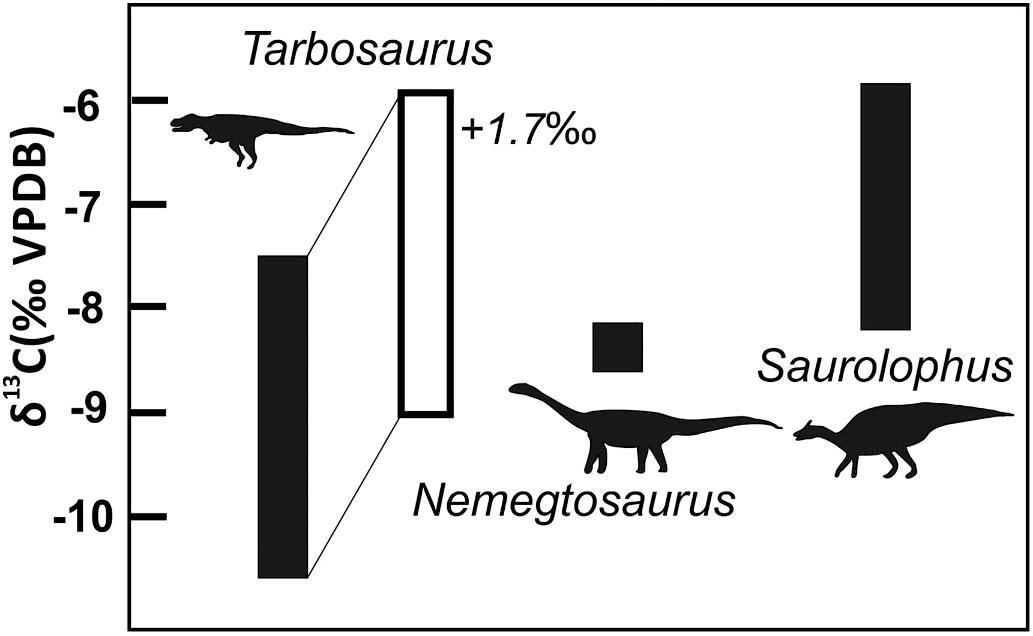
跟据碳素分析表明特暴龙的食物倾向
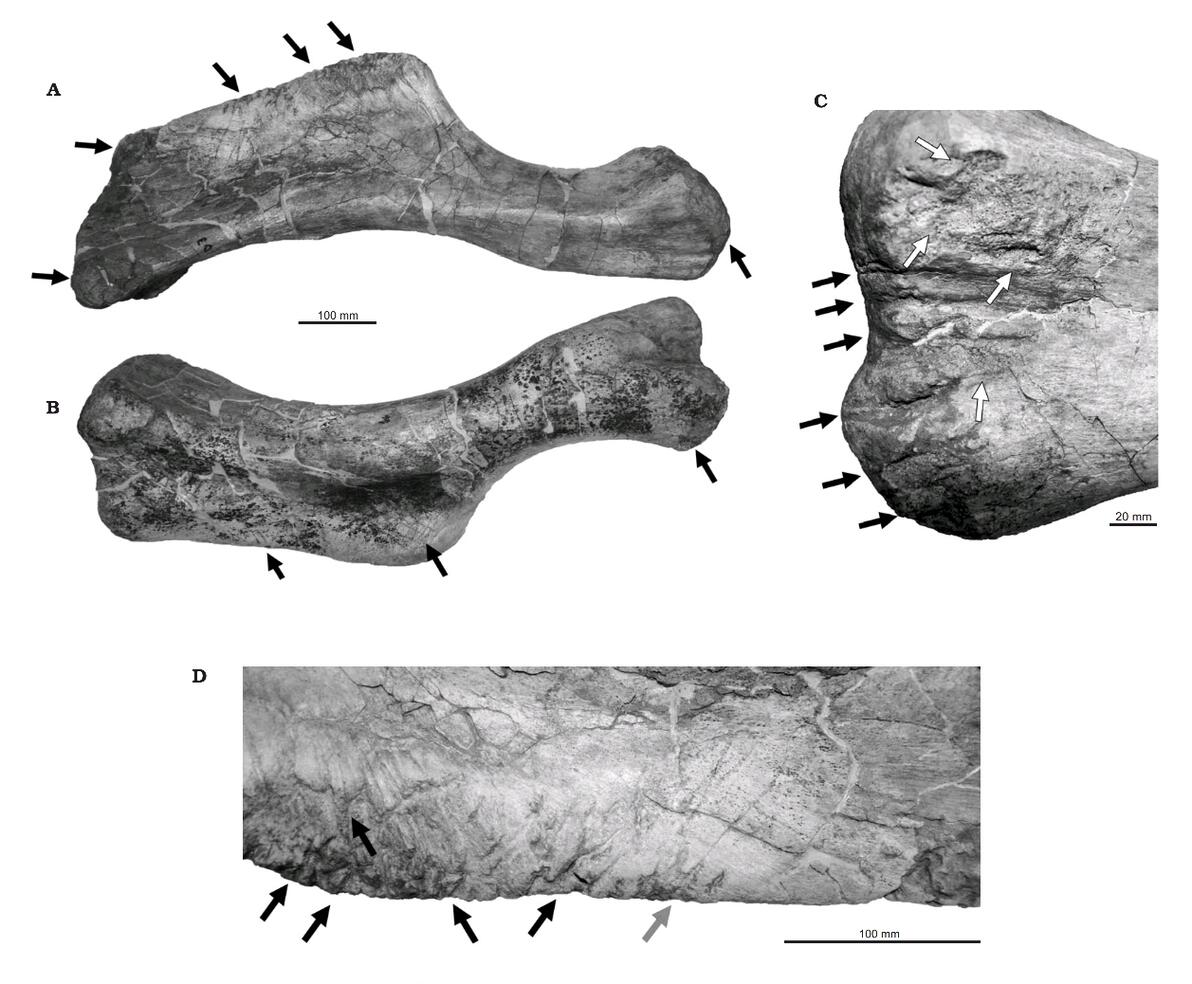
栉龙肱骨MPC-D 100 764 上留下了来自特暴龙的咬痕
此外,霸王龙在咬合时受力通过鼻骨横向脊和沟槽的固定关节从上颌骨传导至鼻骨主体再传导至泪骨,最后传导至前额骨/额骨,而在特暴龙中应力则是通过上颌骨直接传导至泪骨再传导至额骨/前额骨,特暴龙的下颌骨相比霸王龙的也要刚性得多,这与异龙类的咬合方式趋同。
特暴龙保存了从幼年到成年不同发育阶段的样本,使得人们对特暴龙的生长发育能有较为清晰的认知:通过对来自布金塔斯维(Bugin Tsav)的一具特暴龙标本MPC-D 107/7左腓骨和胫骨的生长环(LAGs)研究得知该标本为2~3岁的幼年个体,菲利普•库里认为暴龙类任何个体的头骨长度和股骨长度是等距增长,且这两个长度是几乎相等,MPC-D 107/7头骨长度(前上颌骨到方颧骨)测量显示为290mm,股骨长度为303mm,仅比头骨稍长,库里的分析得到了验证。
幼年特暴龙与成年个体相比有许多不同:
🔴幼年特暴龙的前上颌骨在中侧面相对狭窄得多,在侧试图中背内侧仅略深于长长的吻尾侧,成年个体前上颌骨的背内侧则远大于吻尾侧长度;
🔴幼体前上颌骨的背外侧方位仅仅浅浅地凹陷于鼻部组织的底部,而成体的这种凹陷(鼻孔窝)更为明显;
🔴幼年特暴龙的上颌骨背内侧较成体低矮得多,牙槽边缘较成体也没有那么凸起,到第四牙槽后几乎直向末端;幼年特暴龙的眶前窝在眶前孔下方向末端延伸至颧骨上,这与成体不同;
🔴幼年特暴龙的眶前孔长略大于高(MPC-D 107/7眶前孔长67mm,高64mm),成体则与之相反;
🔴幼年特暴龙的上颌骨升突逐渐向末端变细,不像成体的上颌骨升突那般特别巨大;
🔴幼年特暴龙愈合的鼻骨背侧面仍然相当光滑,缺乏突出的隆起或乳状突,不像成体鼻骨那么隆起,并沿着侧缘具有突出的神经血管孔;
🔴在侧视图中,幼年特暴龙的泪骨尾(方颧骨)支向腹支后方延伸并呈“T”形,成年特暴龙的泪骨尾(方颧骨)支则膨大并呈“7”或者倒转的“L”形,且幼体泪骨喙(上颌骨)支和尾(方颧骨)支的背缘缺乏成体那样的明显褶皱;
🔴成年特暴龙齿骨背内侧较幼年特暴龙的更厚,幼年特暴龙的齿骨相对更细长;
🔴幼年特暴龙的上隅骨孔更小,且关节骨与上隅骨分离且未保存,表明这两块骨头是未愈合的,这与成体不同。
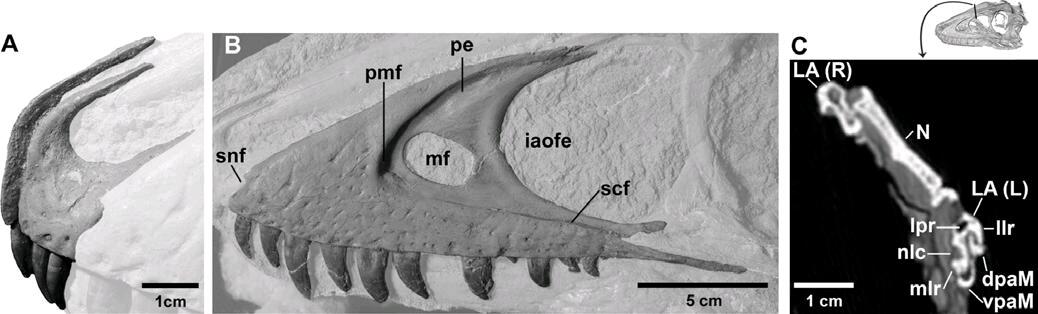
幼年特暴龙MPC-D 107/7的前上颌骨和上颌骨,A.左前上颌骨左侧视图以及右上颌骨愈合处内侧视图,B.左上颌骨侧视图,C.基于CT数据显示了上颌骨升突和泪骨喙(上颌骨)支之间的关节模式.(A,C比例尺1cm,B比例尺5cm)
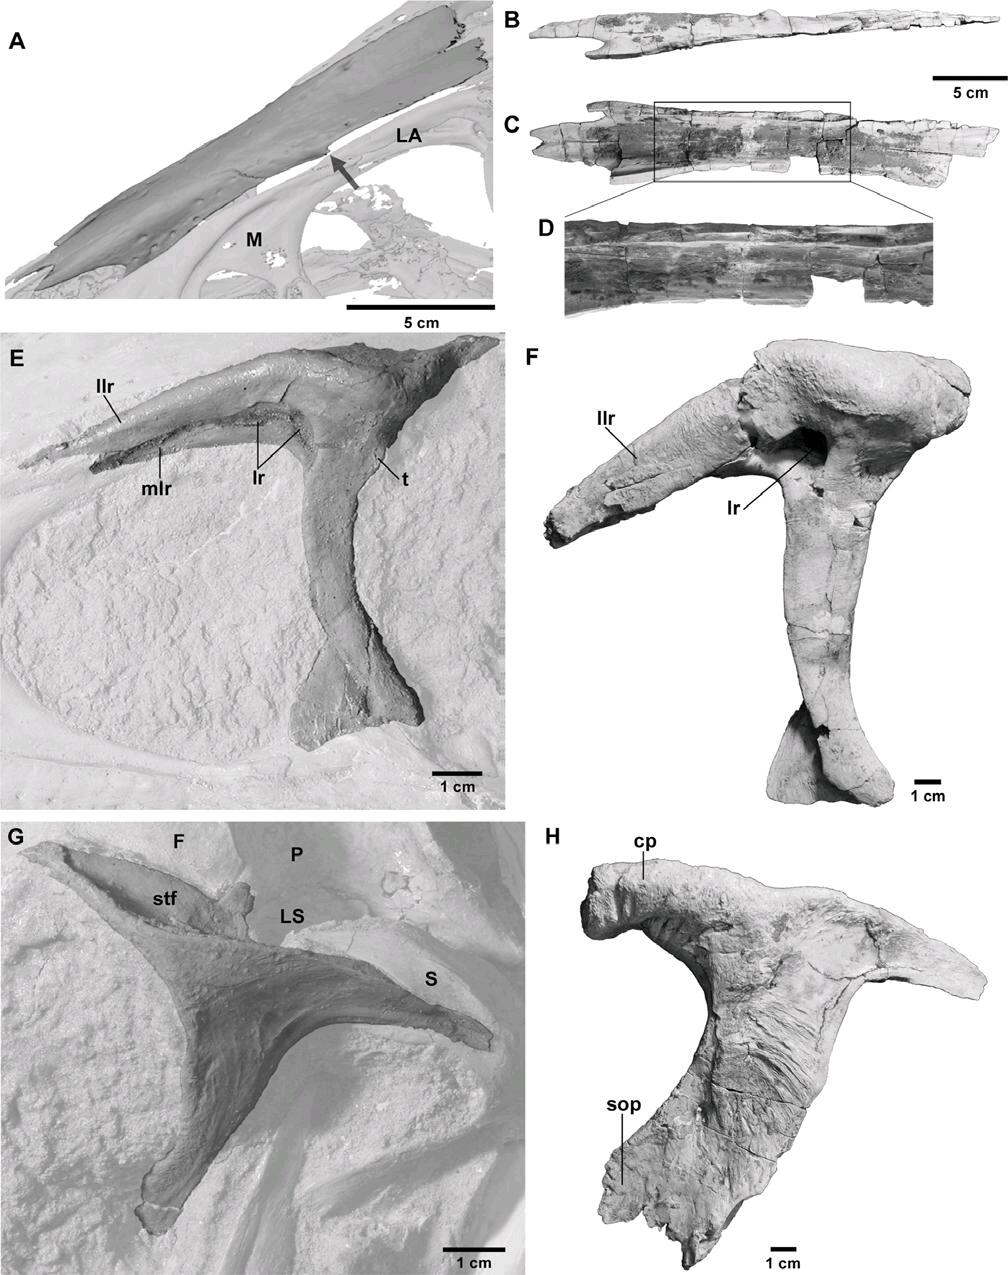
特暴龙的鼻骨(A-D)、泪骨(E,F)和眶后骨(G,H),幼年个体(MPC-D 107/7)和较大个体(MPC-D 107/14)比较。A、 基于左背外侧视图中CT扫描中MPC-D 107/7的鼻骨表面渲染图像,显示存鼻骨上的小泪骨突(箭头),在较大的个体中会丢失;B–D,MPC-D 107/14(反向)的鼻骨右侧(B)腹侧(C) 和腹外侧(D)视图。如图D所示,MPC-D 107/14中的上颌接触仍然由纵向凹槽组成,缺少在成年个体中观察到的横向脊和凹槽。E、 MPC-D 107/7的左泪骨侧视图;F、 MPC-D 107/14右泪骨(反向)侧视图。注意,眶内窝在E中侧面完全暴露在泪骨的喙(上颌骨)支上,而在F中被泪骨外侧的这条支所掩盖;G,MPC-D 107/7的左眶后骨侧视图, G.MPC-D 107/14的右眶后骨侧视图(反向)
MPC-D 107/7的发现表明幼年特暴龙的头骨缺乏高度摄食力的形态特征:
🔴鼻骨背侧表面光滑并且眶后骨缺乏角突,与成体的头骨相比幼年特暴龙头骨中侧面的部分(如上颌骨)相对更薄表明幼体在相同受力情况下骨骼抵抗形变能力较成体弱;
🔴由于扭转和弯曲强度的增强使得幼年特暴龙鼻骨隆起远不如成体明显;
🔴幼年特暴龙鼻骨和上颌骨的愈合线由一条纵向的凹槽组成并缺乏在成体中加强鼻骨上颌骨愈合的交叉横向脊和沟槽;
🔴此外,相比成年个体,幼年特暴龙的侧齿很少比唇侧齿薄,表明相对成体唇侧齿弯曲强度更小。
根据上述特征,特暴龙在个体发育过程中也许会逐渐改变饮食生态位和食物倾向,正如暴龙类发育一般而言的那样。
随着年龄的增长,幼年个体的前上颌骨和上颌骨前端逐渐抬升,鼻骨越来越隆起变得粗糙,泪骨后端逐渐膨大,眼眶比例逐渐变小,齿骨逐步增厚,牙齿也越来越粗壮发育至成年形态,最终,它成长为一名骁勇善战、独当一面的“可汗”!
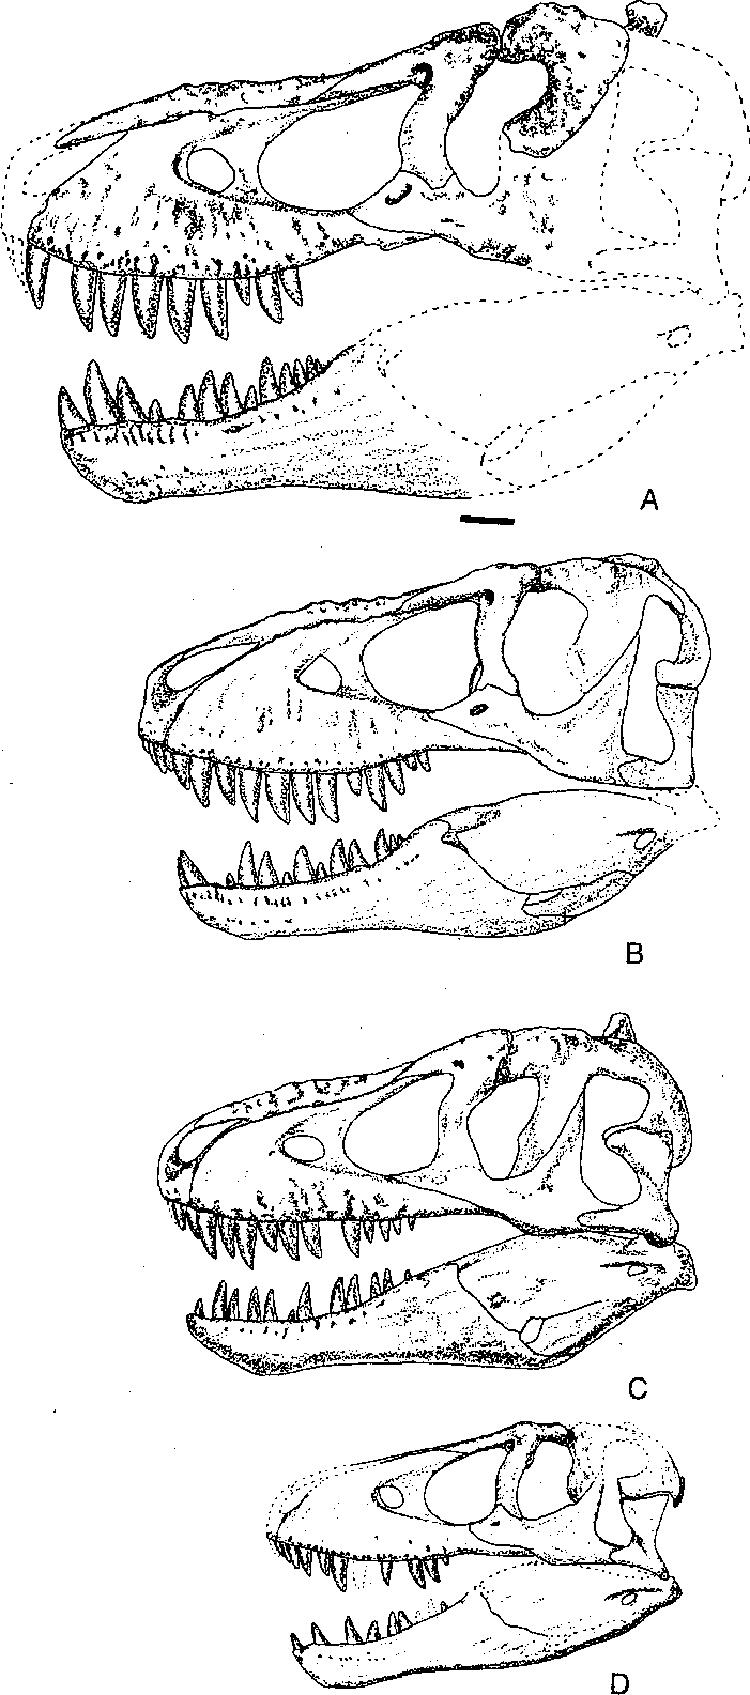
特暴龙大致发育序列:A.PIN 551-1,缺失部分基于PIN 551-3和GI SPS 100/59 (来自照片,Maleev, 1974,and Barsbold 1980),B.PIN 551-3(“勇士霸王龙”正模)(来自照片和Maleev, 1974;鳞状骨和方颧骨的后缘明显不完整或发生弯曲,与其它个体骨骼形状不同),C.GI SPS 100/59(修改自Barsbold, 1980),D.PIN 552-2(修改自Maleev, 1974).(所有头骨按对应尺寸比例,A下方比例尺为10cm)
特暴龙有多大?
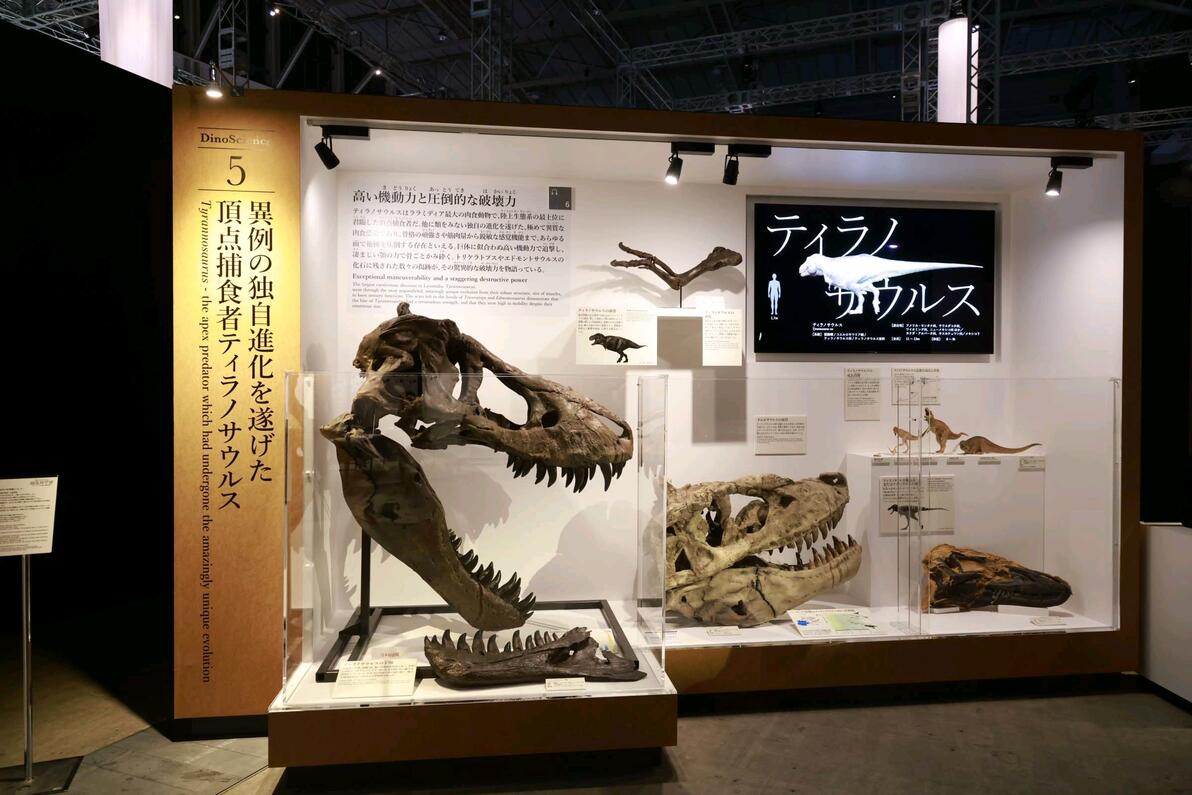
作为霸王龙科的二当家,恐龙文化的明星之一,自然少不了对其体型的讨论,在一些资料网站、新闻媒体、论坛里经常可见特暴龙最大可达12米7.5吨的数据,有人问:“都默认这么久了这个数据还有什么问题?是不是暴龙黑故意找事?!!!”
那么事实真就如此吗?首先,我们得知道:特暴龙的标本并不残缺,相反,特暴龙保有非常完整的样本(如MPC-D 107/2),甚至曾保留了皮肤化石。
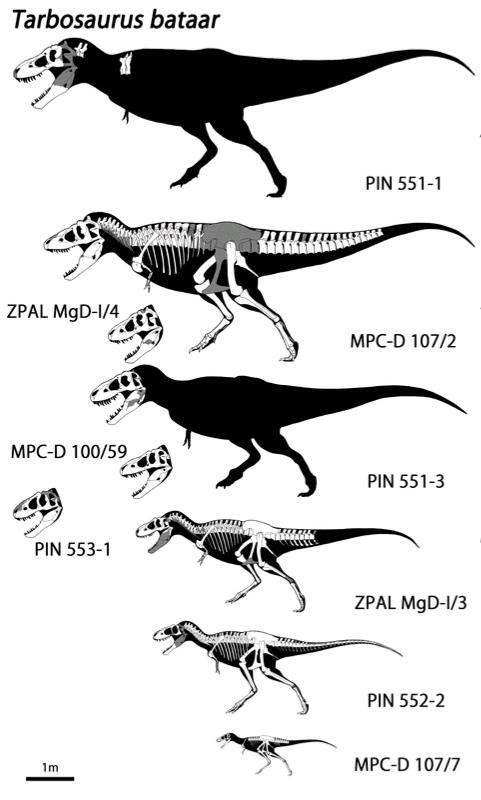
部分特暴龙标本的比例图,作者:Gatawaytrike
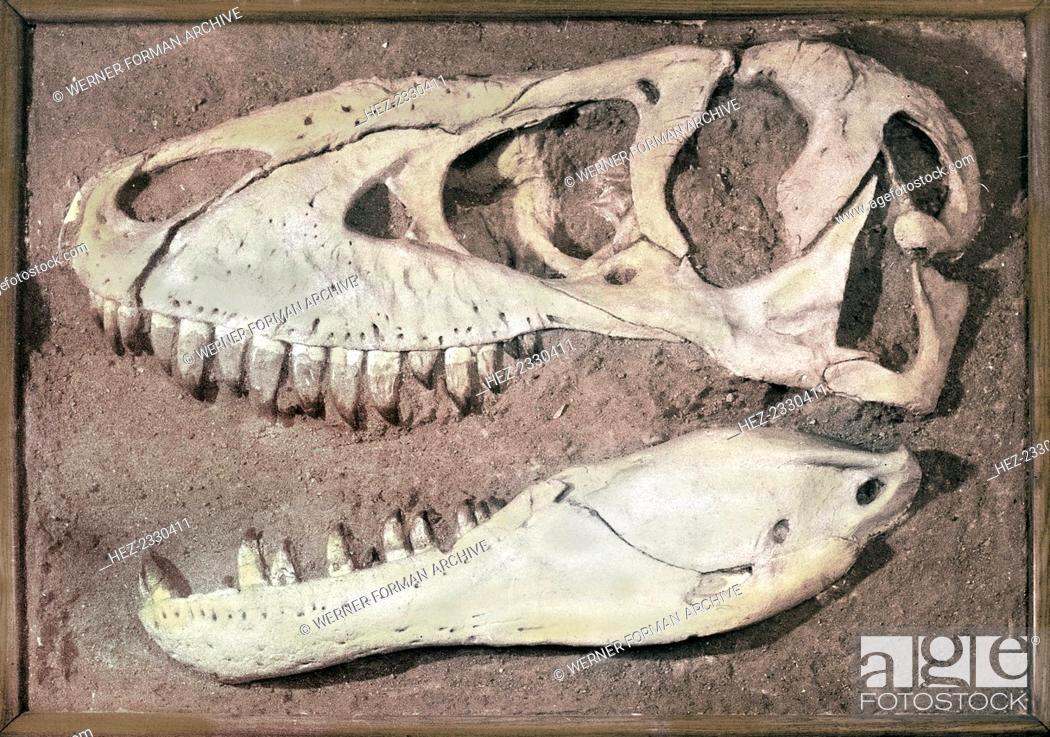
特暴龙PIN 551-3头骨模型
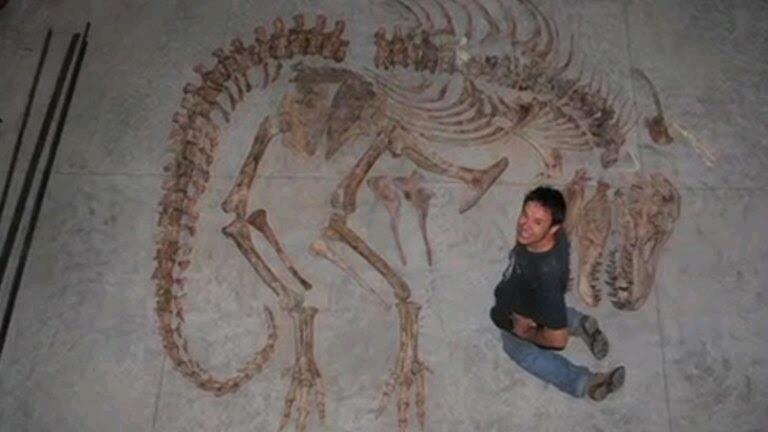
无正式叙述无编号的样本
特暴龙PIN 553-1头骨
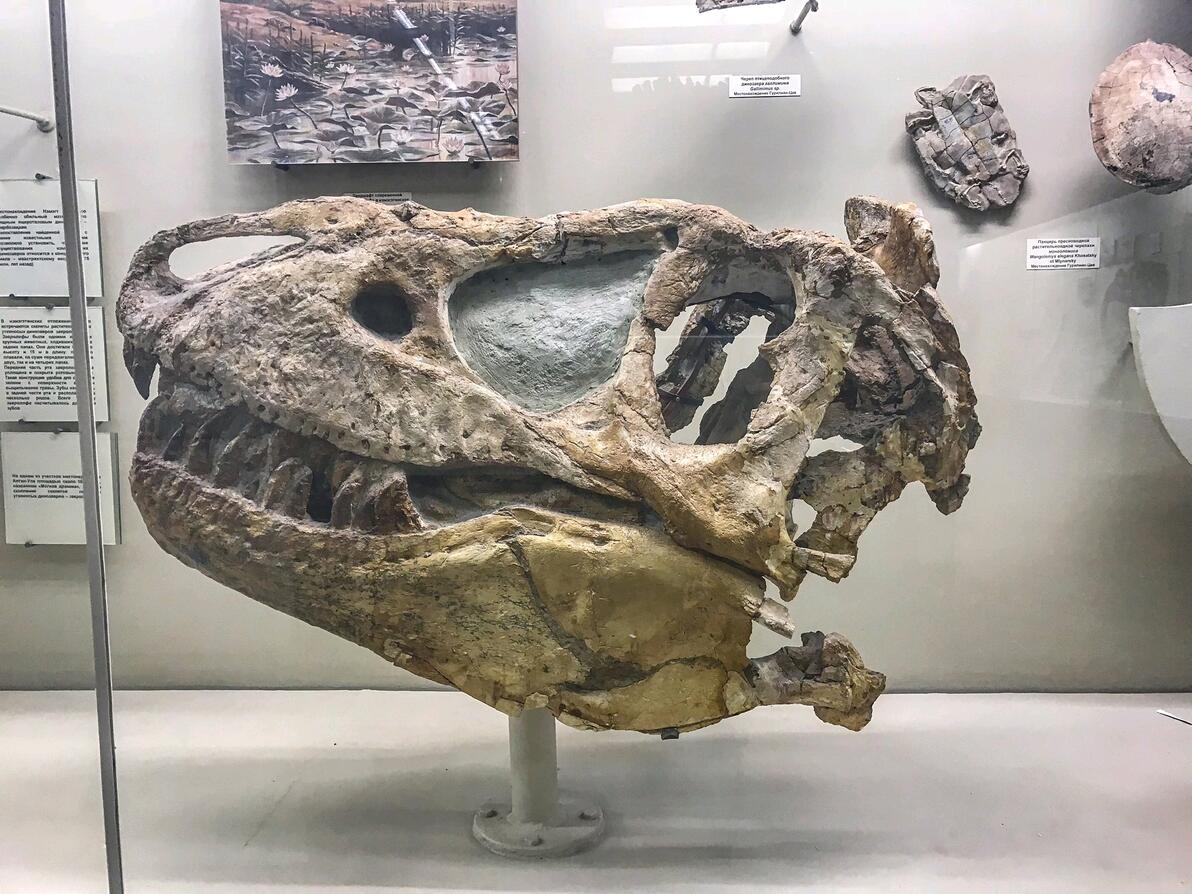
特暴龙PIN 4216/3头骨
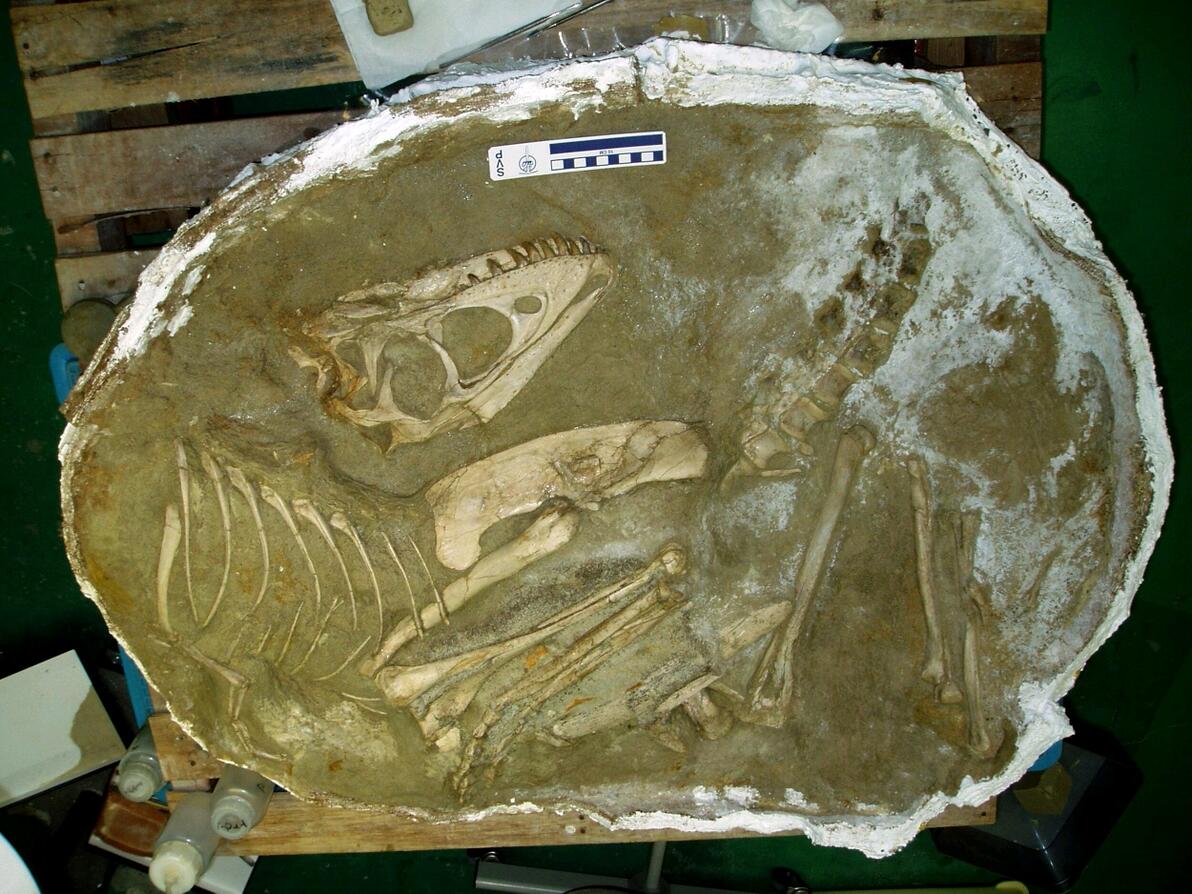
幼年特暴龙MPC-D 107/7
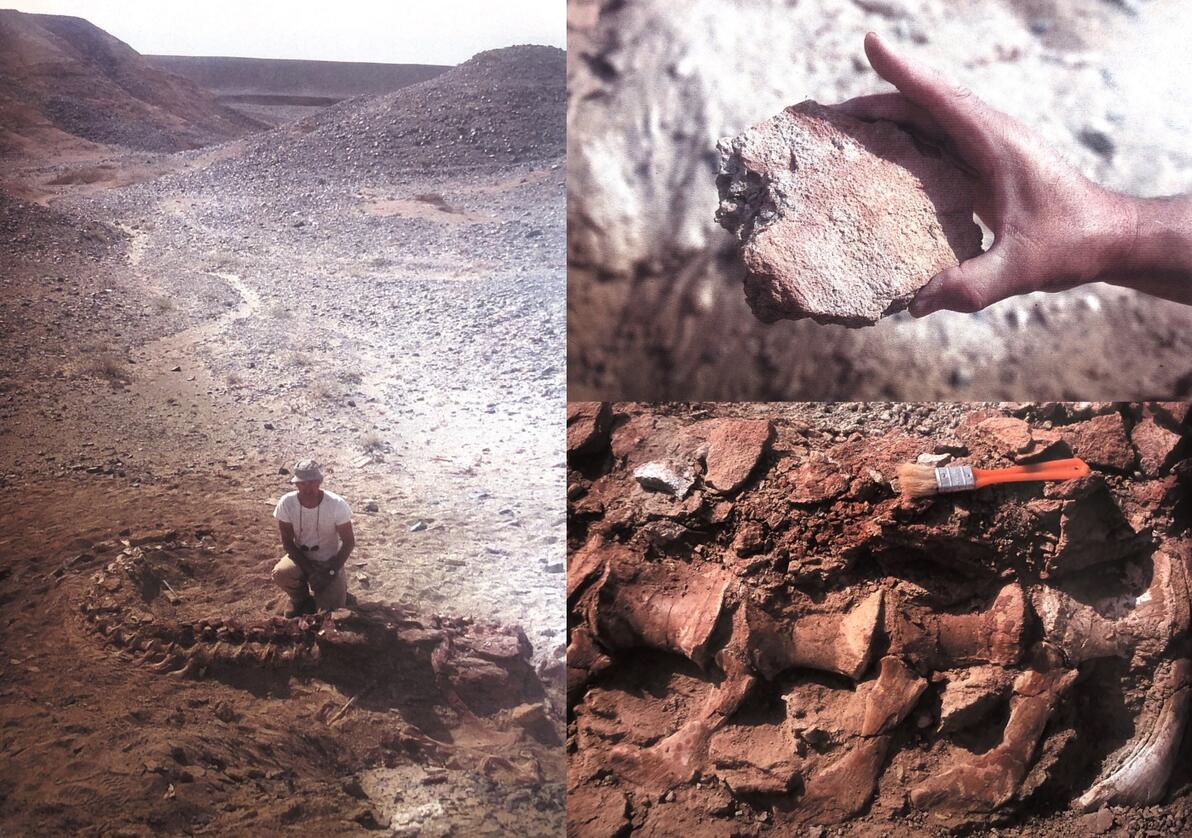
特暴龙完整骨架以及皮肤(可惜已遗失)
12米特暴龙的依据是正模标本PIN 551-1的估值,通过测量数据可知,PIN 551-1上颌骨长度为73cm,和霸王龙AMNH5027(上颌骨长度71cm)接近,比霸王龙“苏”FMNH PR2081的上颌骨(86cm)小得多,特暴龙正模保留了较为完好的头骨(缺失颅后部分和隅骨),参照其它暴龙类标本补充缺失部分重建头骨长度约135cm(前上颌骨到外枕骨),135cm的头骨长已经达到一般霸王龙的水平(例如AMNH5027,头长~135cm),AMNH5027保留有几乎完整的躯干和大量的尾椎,如果参照AMNH5027的比例,骨架顺弯长可以得到和5027持平的数值(11.5米左右),考虑尾巴长一点,那么四舍五入就差不多是12米(当然如果以压扁的苏上颌骨长度79cm,偷懒一下就是略小)……
但特暴龙正模保留的并不只有头骨部分,它还保留了两节颈椎和背椎,第三颈椎长65mm高130mm,第四颈椎长75mm高140mm,第三背椎长80mm,第四背椎105mm(均按测量下椎体部分,颈椎算上神经脊高度则分别是270mm和295mm),对照霸王龙苏图测第三颈椎长约140mm约150mm和第四颈椎约150mm高度约150mm(均测量下椎体,考虑到材料变形和缺失部分,个人大概的估计,算上神经脊高度分别为450mm和430mm),可知特暴龙正模的颈椎形态相对上没有苏的粗壮,尺寸上也小了很多,第三颈椎长度预计约为苏的46%,第四颈椎长度预计约为苏的50%,体型上特暴龙正模体型自然是远不如霸王龙的大型个体(尤其是粗壮型),那么与体型较小的纤细型霸王龙比对呢?这里用AMNH 5027的颈椎图测参考,第三颈椎长100mm高度约180mm,第四颈椎长约120mm高约200mm(均按测量下椎体部分,算上神经脊高度分别约405mm和404mm),特暴龙正模的颈椎相比仍然更小。
由此可知特暴龙的全长理应短于5027,仅头骨部分来代入一些小头长尾霸王龙的比例去估测特暴龙全长是很不合理的,这在其它特暴龙标本上可以印证:例如第二大的成年特暴龙之一MPC-D 107/2,头骨长度已经有125cm(前上颌骨到外枕骨),代入头长占全长比例较小的霸王龙(如AMNH 5027),全长近10.5米+,但股骨实测只有1120mm长,参照其它暴龙类样本,那么对应顺弯长约10米,而特暴龙正模脊椎尺寸与增川玄哉绘制的MPC-D107/2相当,可能同样接近10米,体重可能有5吨以上。
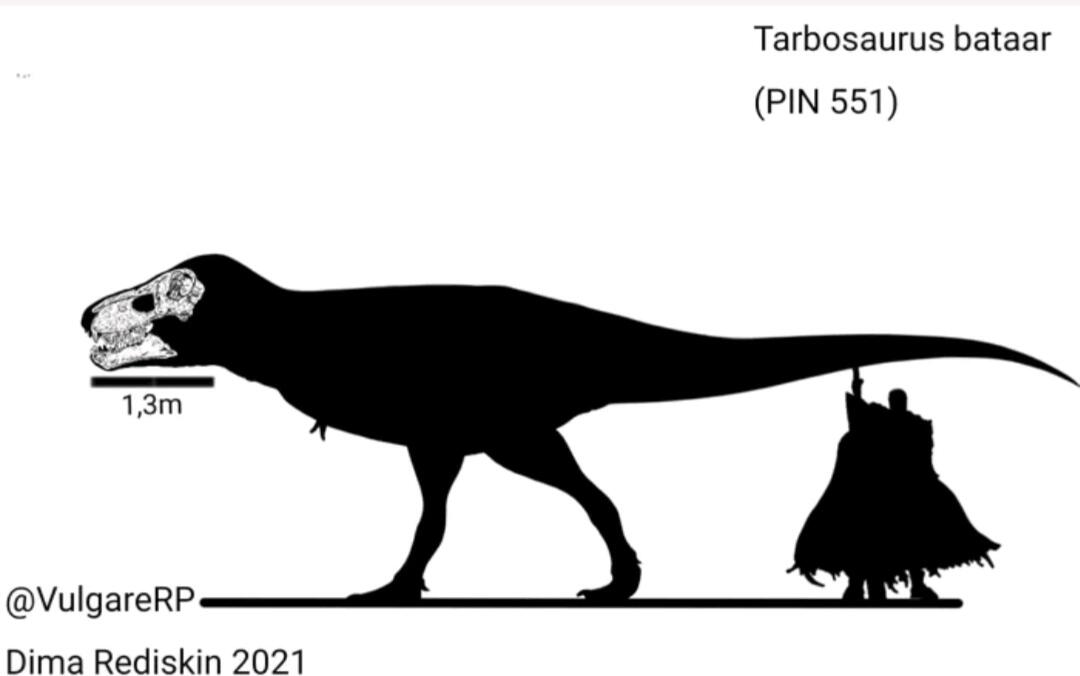
特暴龙正模(作者:Dima Rediskin)
霸王龙UWBM99000头骨和第二大特暴龙之一MPC-D 107/2头骨
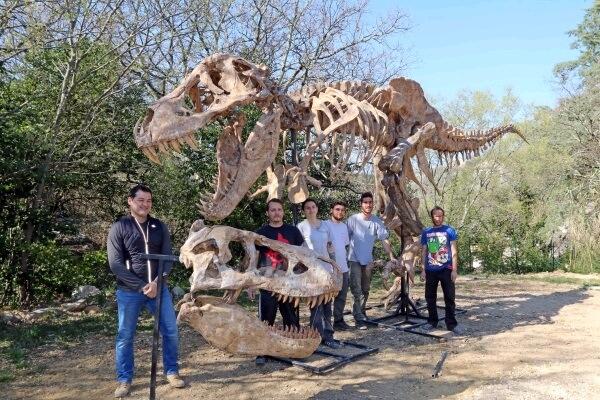
霸王龙斯坦和特暴龙头骨模型
既然特暴龙正模没有12米,是不是有私人收藏的样本会比正模更大?
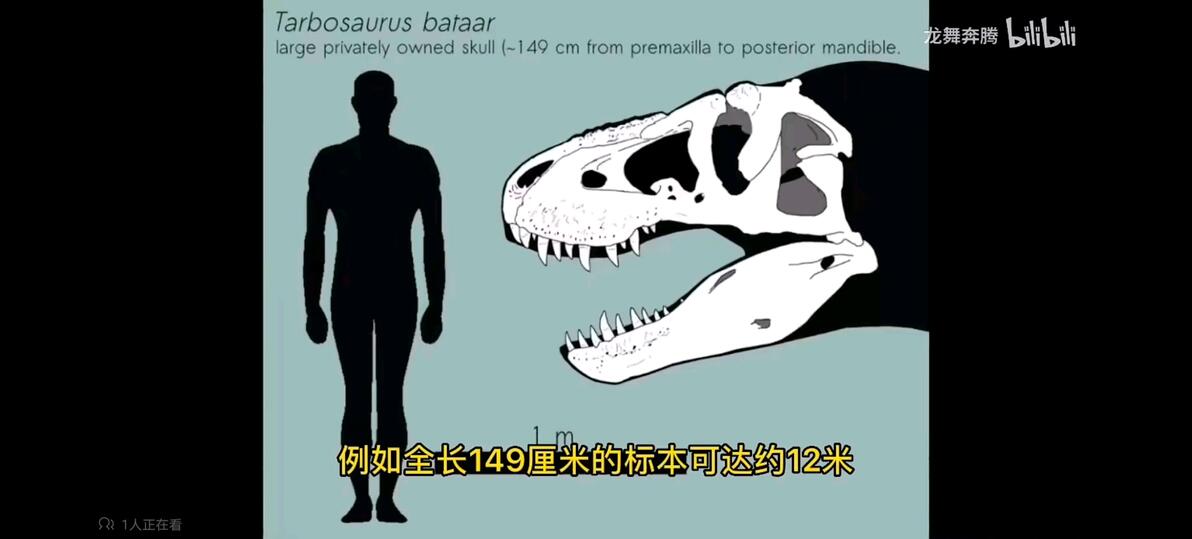
啊对对对
前一段时间,网传149cm的特暴龙头骨闹得沸沸扬扬,一度让特暴龙12米神话复活甚至超越(“特暴龙终于要把废拉的四大鲨皇挤下来了”“特暴龙正模都可以和南巨掰手腕,149头骨吊打南巨”……)……咳咳……先不说特暴龙战力强弱问题,但这个号称149cm的头骨一眼丁……见下图:
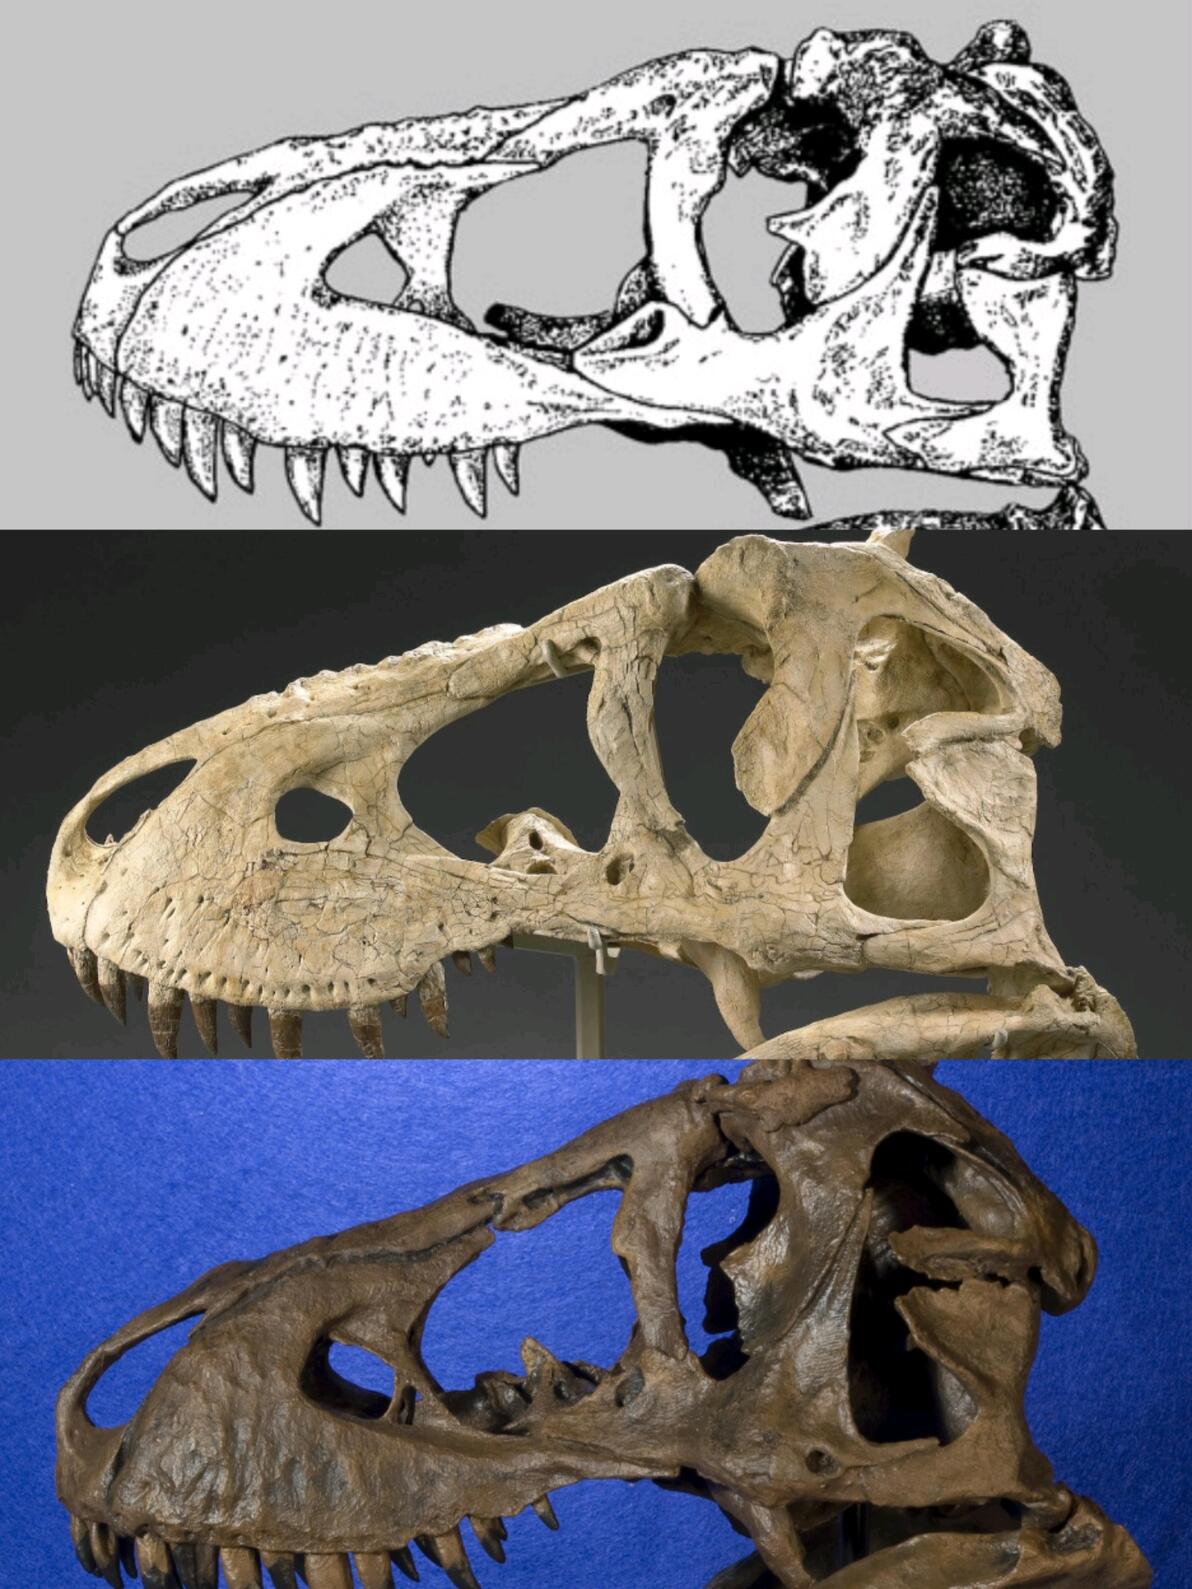
从上至下:特暴龙ZPAL MgD−I/4,号称149cm的特暴龙头骨,霸王龙BHI3033(未按实际尺寸比例)
仔细观察图:你会发现这个149cm的特暴龙头骨其鳞状骨、方颧骨的形态更像霸王龙,方颧骨柄中部和霸王龙的一样非常内凹,与眶后骨衔接的上支和霸王龙一样,比正常特暴龙的更为靠前,其鳞状骨和霸王龙一样的塌陷,相较于特暴龙的方颧骨没有那么笔直和凸出,泪骨上的血管孔比ZPAL MgD−I/4的更靠前,不符合特暴龙已知的头骨材料信息,存在人工制作成分,且该头骨无原始材料照片,无法得知准确的保留情况(无法核对验证尺寸是否有虚报嫌疑?),真实度自然大打折扣,效力几乎为零……
一眼丁真,不想鉴定→_→
😆👉也许有人会用台湾最近公开的特暴龙骨架去说:“特暴龙尾巴很长啊吧啦吧啦,特暴龙正模11米是以前尾巴太短了!!!”对此,我的评价是:保留部位都没公开,急急国王别复读你的急急如律令……而且用尾巴氵上去的长度有啥用,玩起同体长斗兽那不是削弱吗?😂
你有1963~1965年的老文提到约14米的特暴龙啊,然后材料描述也没,连个比例尺都没有,就开局一张图……07年学者Holtz的13米食蜥王龙超过魁纣龙马普龙等表示你弱爆了……
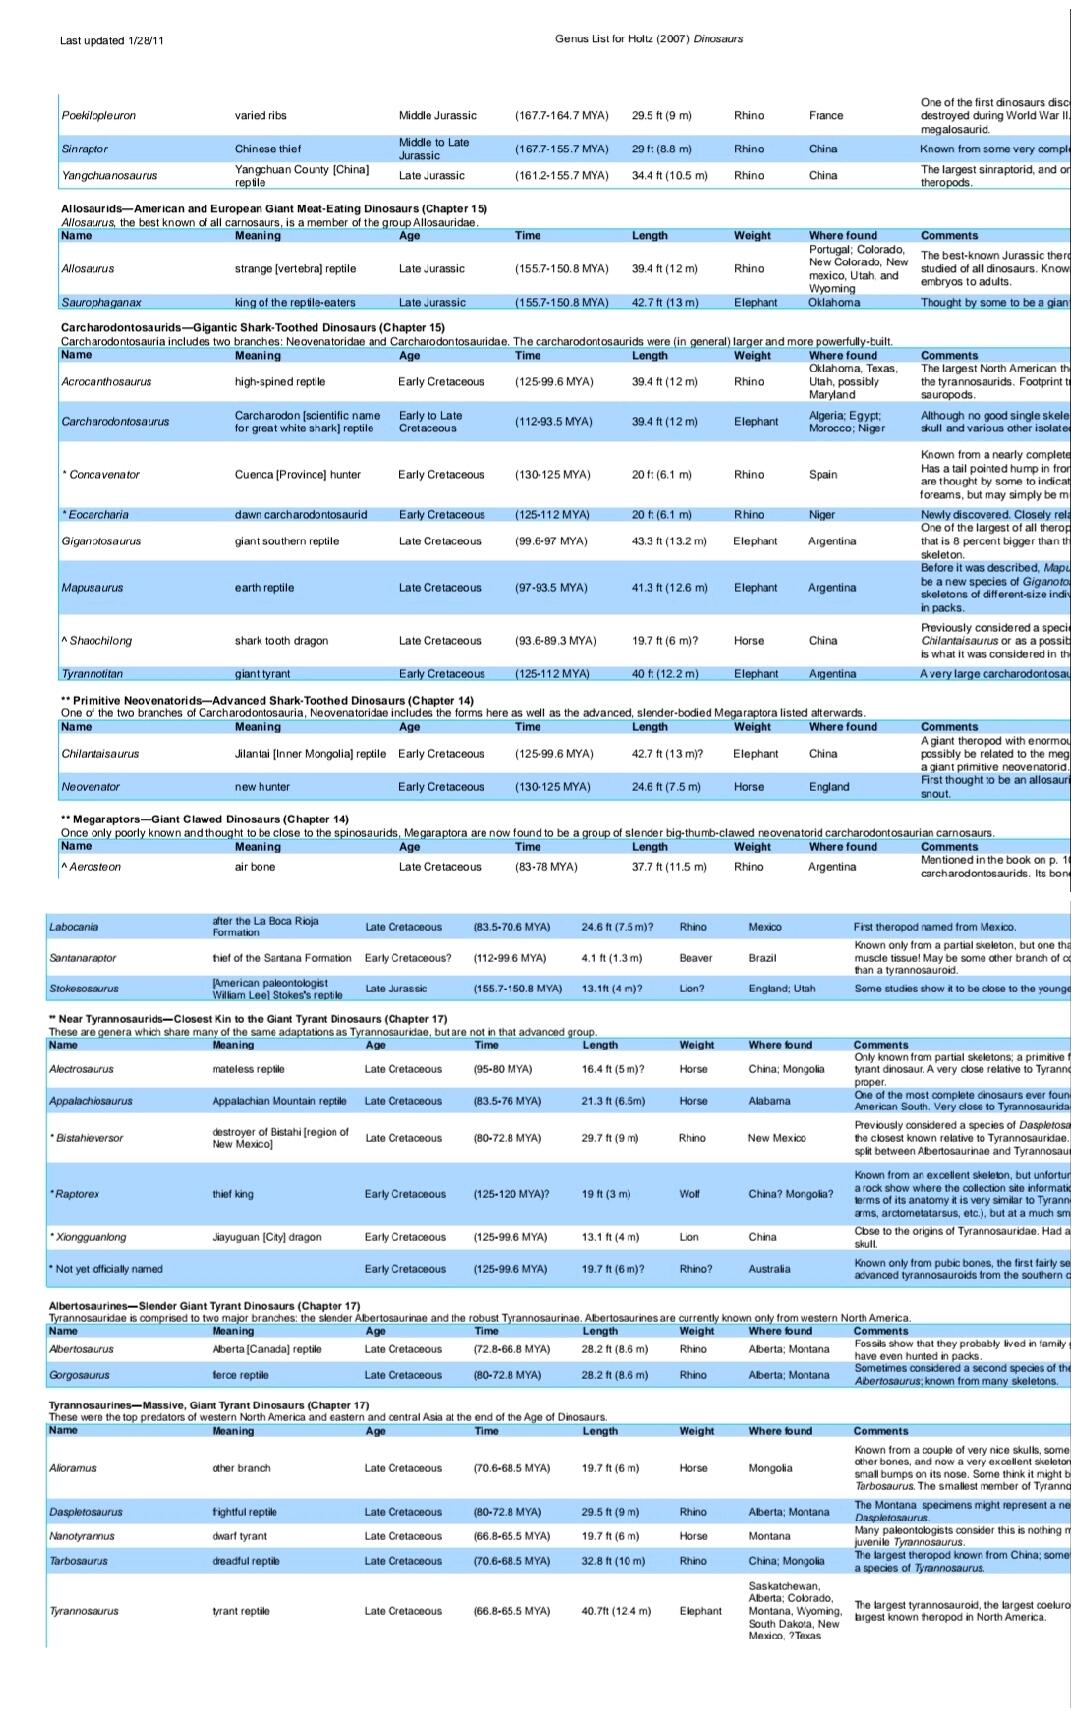
来比跳大神?😂
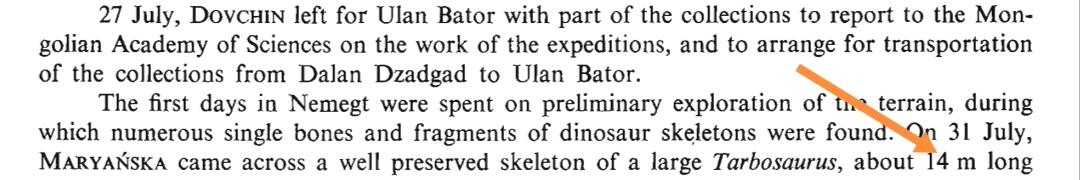
好一记“洛阳铲”
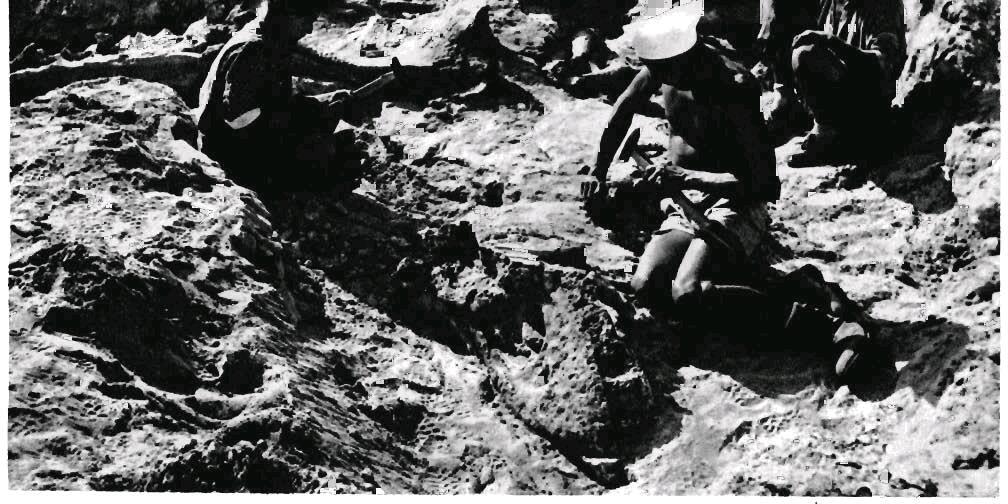
就这?
尽管特暴龙没有12米,它仍然是非常庞大的动物,亚洲最大的食肉恐龙之一,除正模外特暴龙也保留了几个对应股骨1米及以上的大型个体,包括MPC-D107/2、ZPAL MgD-I/64、ZPAL MgD-I/63、台湾无编号特暴龙(基于照片),平均尺寸根据现有标本统计股骨至少在900mm以上,普遍成体可能体长8米以上。
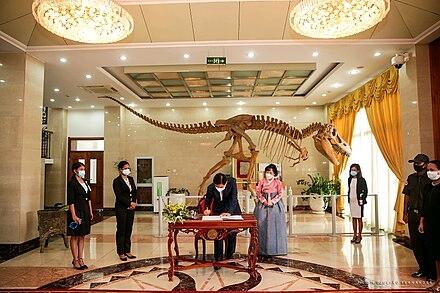
东帝汶的特暴龙装架,可能为PIN551-3主体拼接PIN551-2头骨
特暴龙相比其它大型兽脚类又如何?
这里列举一些股骨数据:
“食蜥王龙”OMNH1708股骨长1135mm周长440mm;
高脊龙NCSM14345股骨长1200mm+周长425mm;
蛇发女怪龙股骨长1040mm周长378mm;
惧龙UA11股骨长1000mm周长415mm;
阿尔伯塔龙ROM807股骨长1020mm周长355mm;
霸王龙BHI3033股骨长1310mm周长505mm,MOR980股骨长1232mm周长483mm,RSM 2523.8股骨长1333mm周长590mm
由于勇士特暴龙正模标本并没有保存腿骨,这里以其它有腿骨保留并有实测数据的标本参考:
MPC-D 107/2股骨长1120mm周长480mm;
PIN 551-2股骨长970mm周长390mm;
MPC-D100/63股骨长960mm周长410mm;
MPC-D PJC2012.48股骨长1050mm周长417mm;
根据股骨周长和股骨长的比值,对比可知成年特暴龙的股骨比大多数食肉恐龙的粗壮,甚至比纤细型霸王龙的股骨更粗,可以与粗壮型惧龙媲美,仅比粗壮型霸王龙的股骨稍差(如“Scotty”)。
当然,论粗壮度,某民间大神1200mm的股骨逆天周长550~560mm,根据比例比苏的股骨粗许多(按通常版苏股骨长1320mm周长580mm)……换算到阿根廷龙股骨长度(2.6米),周长那得和阿根廷龙中段股骨周长(1180mm)还粗了😰,简直是白垩纪的大脚怪越野战车,😆当然论逆天也不如Cope霸王龙BHI6248(长1300mm周长630mm)……
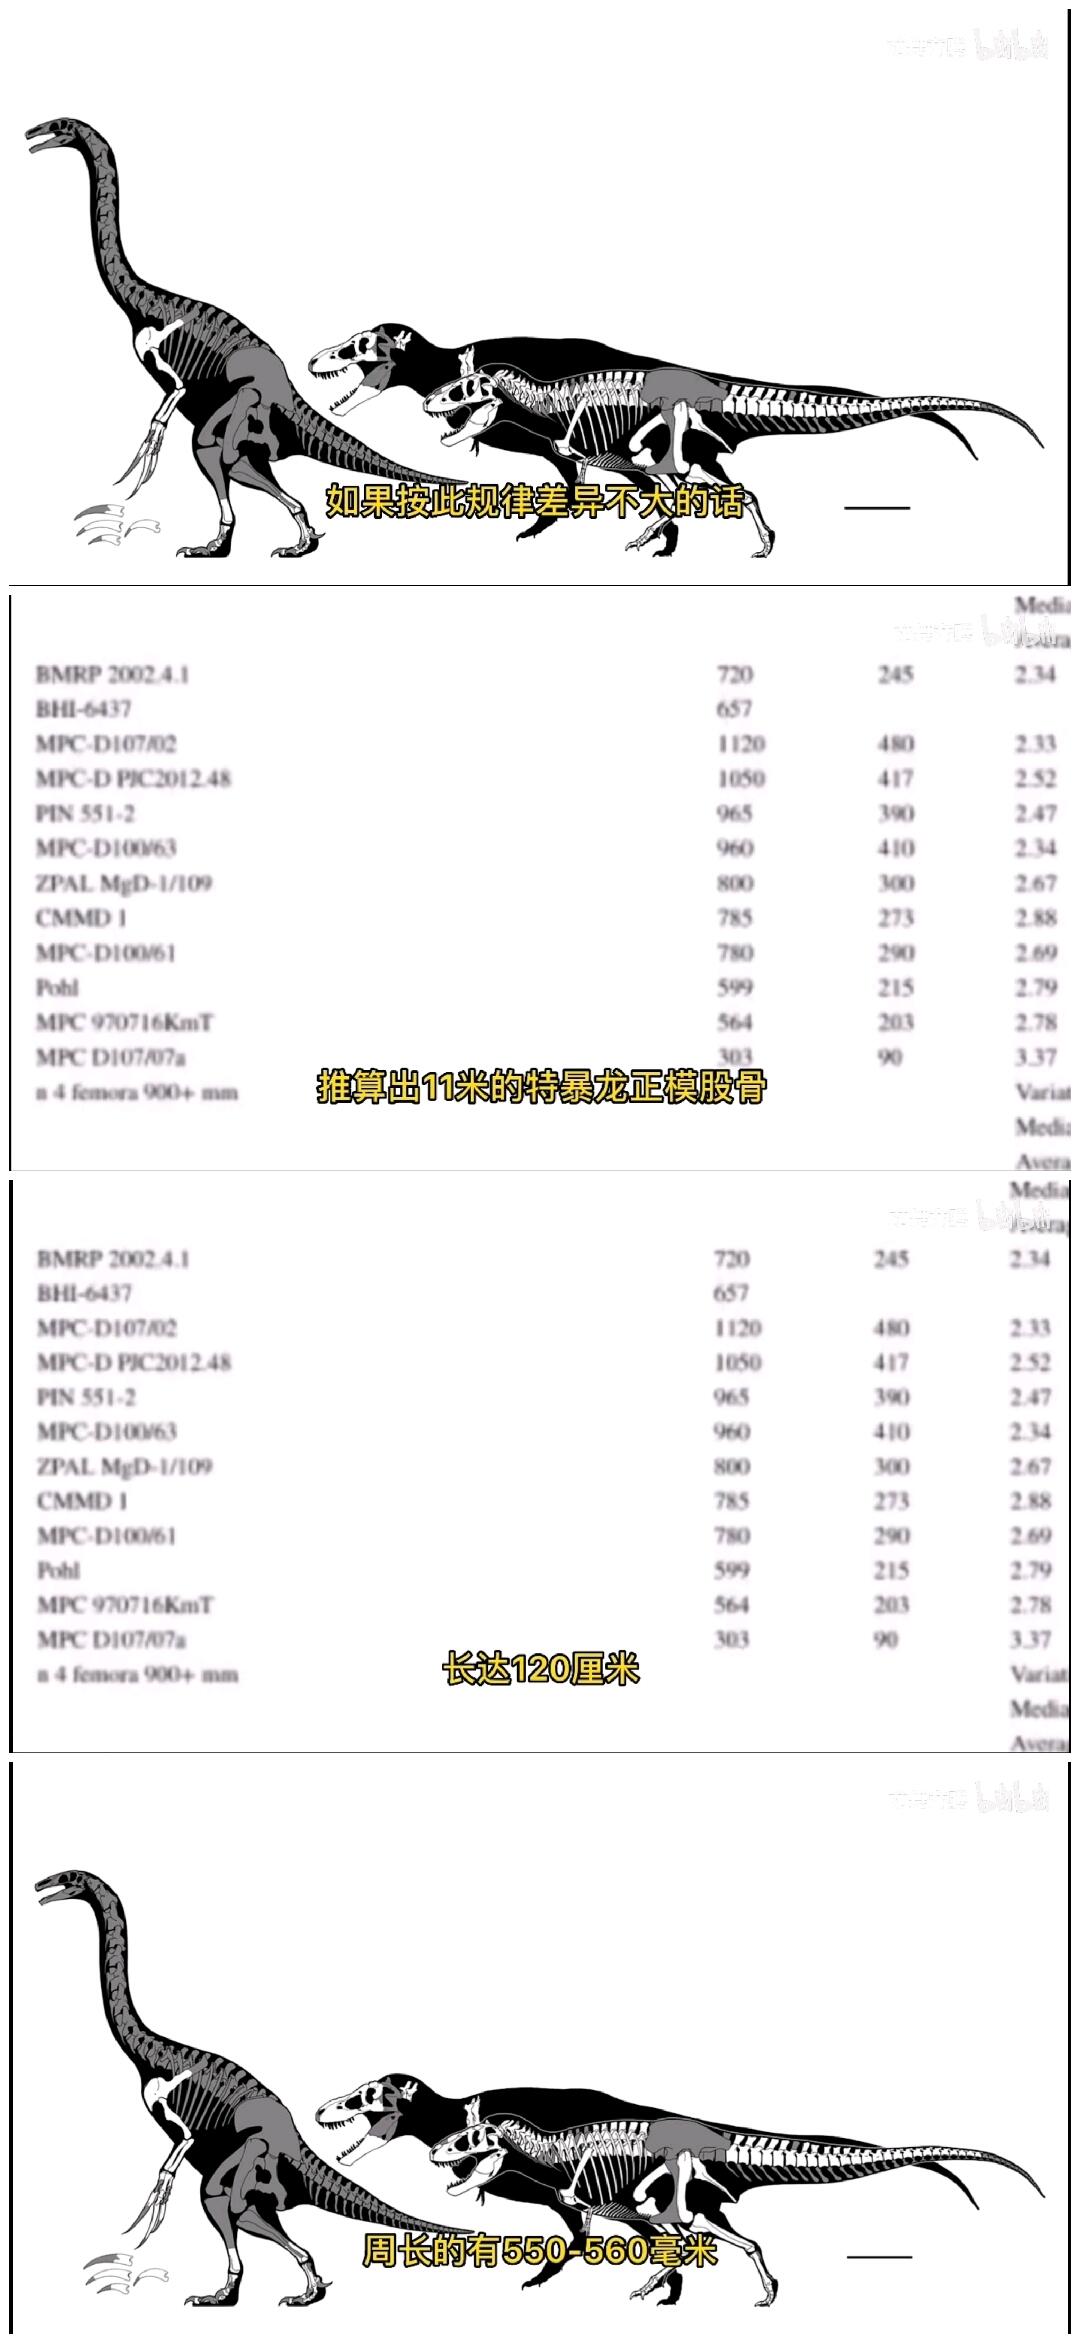
某个“民间特暴龙大神”的估测特暴龙大脚怪越野战车,Cope之下敢称第二
特暴龙此前也被一直谣传躯干比霸王龙狭窄得多,但通过相近位置的背椎实测比较:特暴龙正模PIN551-1第三背椎关节面宽度为145mm,霸王龙AMNH5866第二背椎关节面宽度为180mm,两者背椎长分别为80mm和100mm,根据宽和长的比值,你会发现发现比值上并没有什么差距,特暴龙同样具有非常圆润的胸腔和巨大的骨盆,体长仅8米多的年轻成年特暴龙PIN 551-2髂骨就有1080mm长,从已知信息参考,特暴龙粗壮度至少和纤细型霸王龙相当。
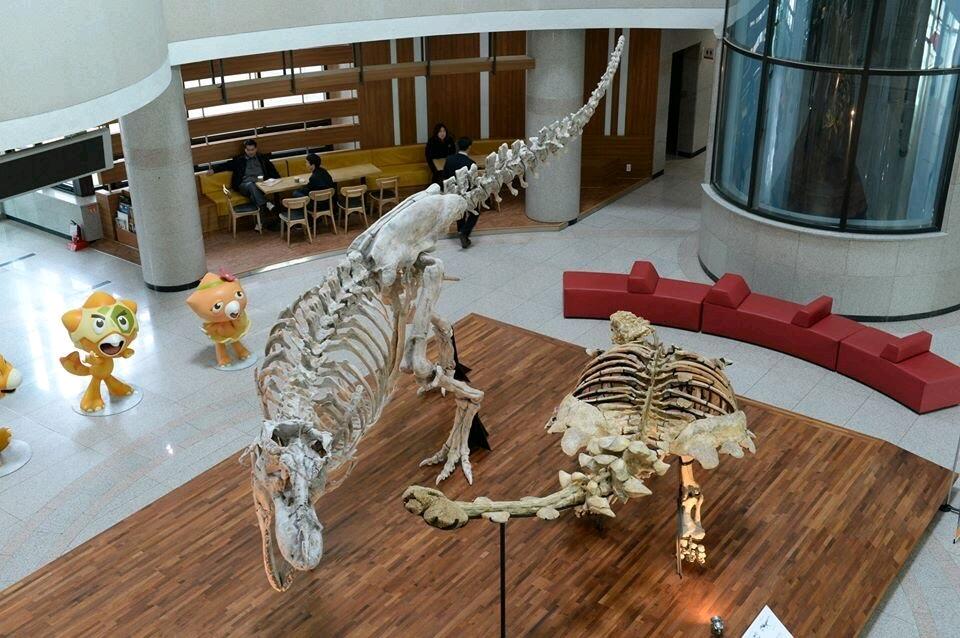
特暴龙(MPC-D 107/2)大战多智龙装架
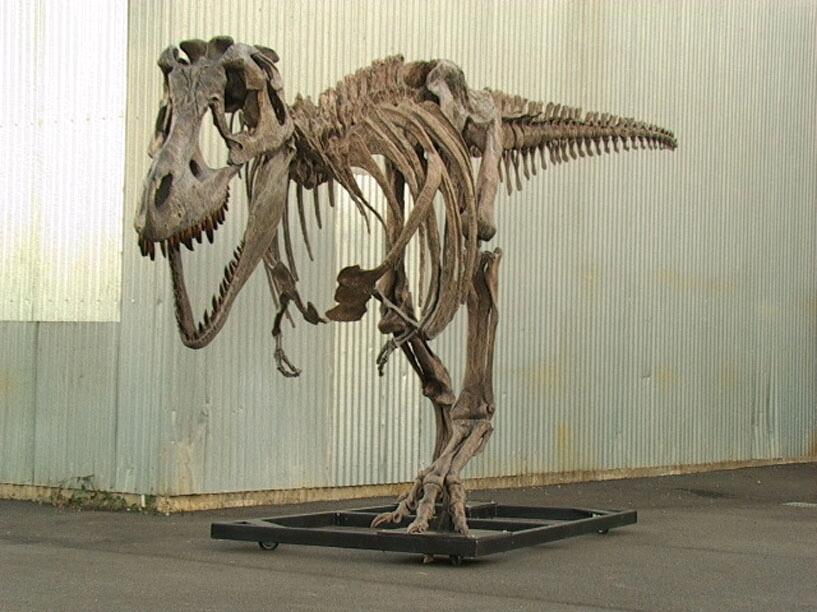
特暴龙装架(无编号个体,装架肩胛骨残缺),大致参考躯干形态
图右侧为“纤细型”霸王龙的代表MOR555
总结:
特暴龙属是被爱好者常常提起又忽略许多本来面目的巨型兽脚类,特暴龙尽管在体型上与北美的近亲霸王龙有着非常大的体型差距,但凭借对环境独特的适应和自身足够庞大的体型,它仍然是当地毋庸置疑的顶级掠食者,来自距今约7000万年前的“史前可汗”!
延伸: 中国有无 “特暴龙”?
在各大论坛上,经常有听见传言中国有特暴龙属的材料,但值得一提的是,这些材料大多非常零碎,无法确定其实际的归属,这些曾被归属的材料包括:
🔴广东兽脚类(?暴龙类)牙齿“兰坪特暴龙”
“兰坪特暴龙”的牙齿基底
🔴河南省秋扒组的5颗大型兽脚类牙齿“栾川特暴龙”,最大的牙齿齿冠长110mm
🔴“吐鲁番特暴龙”(状况不明)
🔴王氏晋北龙(现已独立名)
🔴“火焰山鄯善龙”
🔴“破碎金刚口龙”(肋骨或肩胛骨残片)
而国内目前比较确定归属于特暴龙的只有“火焰山鄯善龙”(幼年特暴龙论文有提及与MPC-D 107/7的相似性支持归属于勇士特暴龙),除此之外,没有归属于特暴龙但存疑的材料有黑龙江与俄罗斯边境出土的大型暴龙类牙齿和掌骨,内蒙还有未知的暴龙类股骨AMNH21552(无任何细致描述,仅提及比独龙大得多),而今年一篇论文表明“克氏盗王龙(Raptorex kriegsteini)”最有可能的产地是蒙古的耐梅盖特。
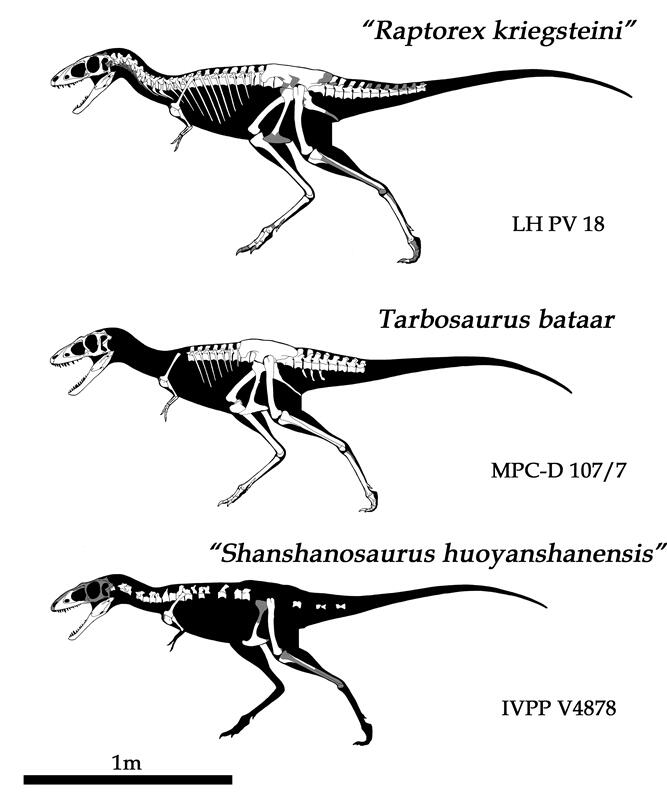
三个“幼年特暴龙”比较
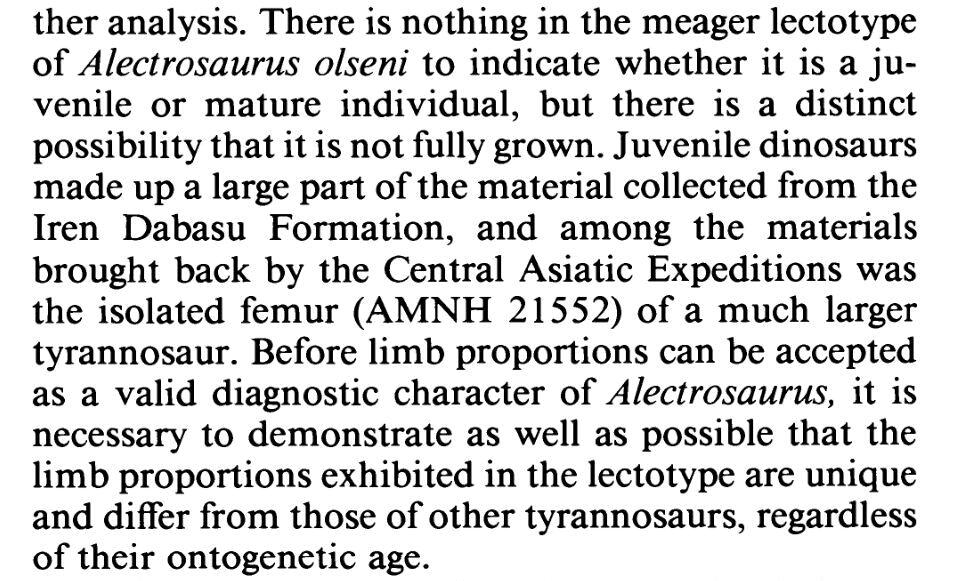
论文提及的内蒙未知大型暴龙类股骨
综上所述,特暴龙最确定的分布范围仅限于蒙古,新疆可能也包含在内,国内在没有更多材料出土可供比对的情况下,将这些归属于特暴龙并不一定是最好的选择,对于国内特暴龙属是否存在以及分布范围应持怀疑态度,对特暴龙生存年代和与国内另一属大型暴龙类“诸城暴龙属”潜在的互动更有待进一步验证。
参考文献:
Giant theropod dinosaurs from Asia and North America:Skulls of Tarbosaurus bataar and Tyrannosaurus rex compared
GIANT CARNOSAURS OF THE
FAMILY TYRANNOSAURIDAE
This version represents a combination of separate translations by(1) Catherine Siskron and S. P. Welles and (2) Jisuo Jin edited together by Matthew Carrano original page numbers noted thus: {}{132} EDITOR’S NOTE
Diet preferences and climate inferred from oxygen and carbon isotopes of tooth enamel of Tarbosaurus bataar (Nemegt Formation, Upper Cretaceous,Mongolia)
CRANIAL OSTEOLOGY OF A JUVENILE SPECIMEN OF TARBOSAURUS BATAAR(THEROPODA, TYRANNOSAURIDAE) FROM THE NEMEGT FORMATION (UPPERCRETACEOUS) OF BUGIN TSAV, MONGOLIA
Christopher A. Brochu, 2003, Osteology of Tyrannosaurus rex: insights from a nearly complete skeleton and high-resolution computed tomographic analysis of the skull, Journal of Vertebrate Paleontology 22, pp. 1-138 : 6-130
Carpenter, Kenneth, 1990, Variation in Tyrannosaurus rex, Dinosaur Systematics: Perspectives and Approaches, Cambridge: Cambridge University Press, pp. 141-145 : 141-144
