
30多亿年前,地球生命起源于原始海洋。(可参考我的上一个文章)。
它们形成了磷脂结构的细胞膜,从此离开了最初的一隅之地,走向了整个世界。他们最初以或以化能合成自养营生,或借“行星之力”(热液口等)存活。生活在充满氨气,硫化氢,氢气等还原性气体且没有氧气的环境里,它门内部是高度还原的。
但是海底热泉毕竟有限,还原物和氧化物的供应也有限,也不是随处都有。生物可以利用的最为稳定可靠的,随处可得能源,还是来源于恒星的电磁辐射(太阳光)。
所以,一些不同的生物在演化中都得到了利用光能的方式。比如有一些细菌和古菌用视紫红质利用光能构建跨膜氢离子梯度。而真正的产氧光合,是在蓝细菌中出现的。
产氧光合作用的进化导致了地球第一次大氧化事件,驱动表层地球系统发生革命性变化,这一关键的代谢创新是地球和生命演化历史上重要的里程碑事件,然而,产氧光合作用如何起源、何时起源仍是未解之谜。但,科学家的研究已经找到了蓝细菌的可能起源。
产氧光合作用的核心过程是在光系统II中分解H2O以提取电子,既能形成跨膜氢离子梯度来合成ATP,又能利用借此无机物合成有机物,是利用光能的物质和能量的生产者。蓝细菌把氢原子变为氢离子,释放到细胞膜外。失去了氢离子的氧原子互相结合,以氧气形式放出细胞外。这就是产氧光合的基本形式。
但H2O本身是稳定的化合物,蓝细菌祖先较难从其中获取电子。目前普遍认为,在蓝细菌祖先获得分解H2O能力之前,曾利用过渡的电子给体来进行光合作用。
有人提出假设:在不产氧的光合反应中心和含锰过氧化氢酶组成的原始系统中,H2O2作为过渡电子给体在双电子反应中释放O2。蓝细菌因此可以适应氧化效果。
并且科学家们做过一项研究,选取沉积物中丰度最高的矿物——石英作为研究对象,通过在模拟的太古代大气环境中开展石英机械磨蚀和石英-水界面反应的实验,发现在无氧条件下石英表面可以产生充足的H2O2和O2。这种矿物机械化学反应产生H2O2的速率远高于大气光化学的H2O2通量,足够形成和维持太古代的局部氧化环境。并且相对于深海在典型的动荡水体环境中(如,河流、河口、三角洲和浅海),矿物-水界面反应可产生更充足的H2O2和O2
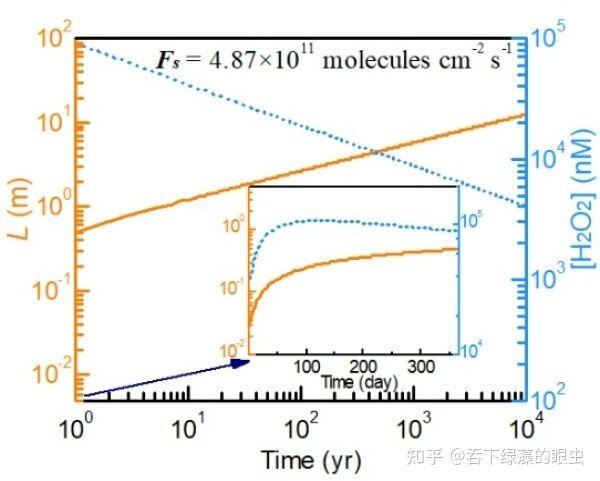
这局部的特殊环境,不仅对微生物席内生长的早期厌氧光自养生物有害,而且对O2最终会扩展到水柱中,并很容易地消除浮游群落厌氧光合作用所需的还原剂。而很可能,蓝细菌祖先就是在这局部特殊环境的一员。蓝细菌的祖先,由于局部氧化环境造成的演化压力,留下了对ROS活性氧抗性越来越强的类群。正如从南非Moodies群沉积岩(32亿年)中观察到的那样,在与沙质层夹杂的微生物席中的蓝细菌可能已经在弱氧环境中开始利用过氧化氢进行产氧光合。此外,蓝细菌所处的弱氧化环境也有利于早期生物进行有氧合成和矿化(如,蓝细菌合成叶绿素、趋磁细菌矿化合成磁小体Fe3O4)。
在长期的自然选择中,可能以过氧化氢为原料的蓝细菌祖先抗氧化的能力不断增强,获得活性氧解毒酶和氧利用酶。并且他们中的一些能劈开无处不在的水分子,利用它作为产氧光合的原料。“狠菌”蓝细菌“异菌突起“,大量繁殖,开始为地球供氧气。他们产生的氧气,即将引发地球的第一次“大氧化事件“让地球的生态系统发生翻天覆地的变化。
直到今天,蓝细菌仍然是地球生态系统中的重要生产者。它也演化出了多细胞形式,其中的念珠藻和真枝藻还有了细胞的分化。其中有专门负责光合的营养细胞,存储营养的厚壁孢子和负责固氮的异形细胞。现在我们看到的发菜就是一种多细胞念珠藻目蓝细菌。
引用
Blankenship, R. E. & Hartman, H. The origin and evolution of oxygenic photosynthesis.Trends Biochem. Sci.23, 94–97 (1998).
Raymond, J. & Blankenship, R. The origin of the oxygen-evolving complex.Coord. Chem. Rev.252, 377–383 (2008).
Harrington, A. D., Tsirka, S. E. & Schoonen, M. A. Quantification of particle-induced inflammatory stress response: a novel approach for toxicity testing of earth materials.Geochem. Trans.13, 4 (2012
