
自然存在、精神存在与社会存在的统一哲学原理
卷三 社会哲学的生存性状耦合原理

第一百二十一章 人的存在
哲学必须落实到人的存在上来才成其为哲学。
【一般认为,人的存在是一切人文社会学课题得以讨论的起始点,这实在是大错特错了。因为“人的存在”本身还牵涉到保罗·高更在他的一幅名作画题里所发出的如下疑问:“我们从哪里来?我们到哪里去?我们是谁?”也就是说,如果人的存在本身还是一个疑问,那么,人的存在状态就更是一个基于疑惑之上的疑问。所以,举凡在人或人的行为基础上建立起来的社会学,无疑都是空中楼阁。须知人是自然分化流程的派生产物(卷一所论),人的行为能力是物演属性代偿的丰化形态(卷二所论),于是,社会就是自然结构进化的后衍载体和物演属性耦合的集成实现(卷三所论),也就是说,人、人性及其人类社会都是宇宙衍存流脉的逐步承传和客观表达,由此构筑起整个生物社会大厦的上升阶梯和楼台层级。而在此前的社会学说里,人总是不言自明的主体,人的能动性亦是超然物外的天赋,于是人当然就成为社会组织独一无二的缔造者,结果导致有关主体自身及其社会处境的渊源、趋向和本质均不免陷入上述所谓的“高更疑义”之中。】
而人又必须落实到社会存在之中才成其为人。即是说,社会存在是人的物质存在方式,或者更确切地说,是生命这种自然存在物的自然存在质态。所以,“人”一开始就不可能以单纯“自然人”的身份存在,而是非得以“社会络合物”或“社会构造体”来成就世界和自身不可。
换言之,人的社会态就是人的自然本态,亦即自然人的自然质态就在于其社会存态。可见,如果自然人——“人是一种自然产物”之谓——这一概念成立,则它就成立在自然社会这个概念基础上。
上述论断乃是基于这样一个普遍的事实:一切生物均以某种群化状态实现其衍存,而且这种群化状态本身一直经历着某种近似直线上升的结构化演动倾向。问题是,我们如何才能在这个“群的序列”中找到主宰它们的统一法则或曰“社会规定”?【早在19世纪甚至19世纪以前,生物学家们就已经发现了低等生物的社会组合现象,只是到了20世纪60年代之后,个别专业人士才敢于将广泛存在的动物群化状态与人类社会结构贯通起来研究——“社会生物学”就是在这种情况下于70年代中期诞生的。不过,鉴于社会达尔文主义曾经过于莽撞地涉入“人类社会”这一学术险境的覆辙,社会生物学家目前还只是站在边缘地带缩头缩脑地进行着某种极谨慎极局限的试探和影射。即便如此,如果以它现时的理论基调为凭,似乎仍然无望成就“自然社会通论”的伟业。(具体评述请阅本卷第一百四十三章。)】
然而,无论如何,有一点是可以肯定的,那就是,人类社会不可能是一种超自然的存在。既然人类的体质存在无可置疑地起源于生物进化的自然进程,那么,人类的社会存在又有什么理由能够游离于自然规范之外呢?须知所谓“社会”就是以生物为其基质的一种自然衍生实体,正如所谓“生物”就是以理化物料为其基质的一种自然衍生实体一样。
显然,问题不在于人的行为怎样铸成了社会,而在于自然的规定怎样铸成了人的社会行为。
故,社会哲学的第一质疑或社会学前的潜在疑问应该是:作为自然产物的自然人为何必须以社会人的质态存在?
第一百二十二章 人类社会基础
上述问题在未答之前业已提示:
A.社会系统在人类尚未问世以前就已经客观地存在着,且必以某种演化发展的方式存在着;
B.非但不是人类缔造了社会存在,反倒是人类以先的生物社会或社会生物缔造了人类及其社会基础。
总之,既往那些以人的行为——无论是文化行为抑或是经济行为——为前提的社会哲理其实都不过是某种人类中心主义的、短视而封闭的孤芳自赏罢了。【汤因比曾经敏锐地意识到关于社会先于人类而存在的必然性,故有斯言:“人类如果不生活在社会环境里就没有可能变成人。从半人变成人,这个变化是在原始社会的环境里进行的,关于这个情况,我们并无记录可查。但是我们可以说这个变化是比在文明社会的环境里所发生的任何一次变化都更为深刻的一次变化,是一次更大的增长。”(引自《历史研究》)不过,限于他的人文学视野,他到底无法跨越“人类活动”的域界。实际上,这个进程断不是人类史前的“一次变化”使然,而是自然史上的“一系列变化”使然;当然也不是“无记录可查”,而是“有记录未查”;问题在于,对“半人社会”或“非人社会”,你应该以什么东西作为“可查的记录”。倘若我们仍以“人类”或/和“人类的行为背景”为基本素材来看待那个远远超出人类范畴的“社会”,那么,不待说,我们的社会学眼光自与一个部落人详知其村野的沟沟坎坎,就以为大地是托在龟背上的情形没有多少区别了。这大抵就是整个人文社会学至今尚处在类似于哥白尼以前的自然博物学水平的原因,难怪罗歇·卡伊互不太客气地挖苦道:“人文科学”毫无科学的内容可言,只有那种想使其成为科学的意图例外。】
第一百二十三章 社会存在
19世纪中叶,“社会学”(sociology)一词被孔德第一次作为一个可与天文学、物理学、化学、生物学相提并论的学科概念提出。仅从这个排列顺序上,我们就可以明白孔德的开创性初衷:即在他看来,社会存在同样是一种自然实存和实证对象;而且,在这个与人类的认识进程相一致的顺序中,可能存在着某种由简单到复杂的发生学联系。
即使是对于这样一个浅显的看法,当初亦不能为学界所接受,故而争议鹊起,多亏斯宾塞坚守不退,并sociology在的名下大做文章,才使这一“客体性称谓”得以沿用下来。【然而,无论是孔德抑或斯宾塞,他们实际上仍然被阻挡在“人类-社会”这条陈旧的观念防线面前,其艰难的努力至多不过是企图借助于人的生物性来诠释“人性”,而后再用某种人性化了的兽性来诠释“社会”,社会达尔文主义就是此种努力的产物。到头来,我们所看到的依然是那个以人为介质的“人类-社会”的古老模式,而为孔德所首倡的“物理存在-化学存在-生物存在-社会存在”的社会学架构终于照例被人的自大和自蔽浪潮淹没的无影无踪。】
可见,在此之前,甚至直至今天,社会存在其实历来未被当作一种自然存在加以对待,尽管早在文明化以前,人类就始终关注着这个以自身为载体却又反过来桎梏着自身的自存境遇——但是无一例外地都把社会当作“人的产物”加以对待(此处的“产物”一词通常只具有“产影”或“伴影”的含义,即仅限于指谓“人的关系之总和”而已,所以人们迄今仍未觉悟“社会”也是一种“物”,而且是指与“花岗岩”或“金钱豹”等实体物态没有本质区别的那种“物”)。【首先,这里存在着一个可以谅解的自然障眼法:人的社会存在的确是人的行为产物(或人的行为关系),因为人的存在早在人的前体物种之中就已转化为自为的存在——即“通过某种作为或行为达成对自身存在的自我负责”之谓。显然,问题不在于人的行为产生了什么,而在于自然的自为属性怎样规定了人的存在和人的行为,以及,由于此种规定必然使处于不同自为阶段的自为者升华到何种代偿境界之中。其次,这里还存在着一个亦可谅解的人为障眼法:在一般语义上,“物”被泛指为存在于人的精神范畴以外的东西,而“社会”实在像是人的意识主导的交往关系,怎样看它也不似一个自然实物,殊不知意识或精神本身就是一种物的属性,而任何后衍物其实都是某种前体存在物的属性集合或前体存在物的属性代偿,且借此罗致前体存在物于自身之中。】
结果造成人类思想史上一系列无休无止的困惑和烦恼。【孔子最早呼号“大道之行也,天下为公”,可是在这条“社会公道”上奔走的“活物”们却恰恰是一群十分缺乏公心的宵小之徒,况且孔子本人所谓的“公”绝不是“公平的公”,而是由君臣等级和礼义伦序所建构的“不平的公”;柏拉图以远比后来的乌托邦主义者诚实的方式表达出“社会理想”的心理暗流:每一个社会成员其实都首先关注着如何使自身获得更优越的社会定位和社会承认,乌托邦之所以注定会流于空想,乃是由于它的反结构意念一开始就不符合人与物共通的自然本性,不过,柏拉图的“理想国”实在只能算是一个出自于贵族立场且充斥着个性偏见的纯粹的杜撰,他那“哲学王”的美梦非但未能自我实现,还最终在身为罗马皇帝的斯多葛主义哲学家马尔库斯·奥勒留那里,以内忧外患、国无宁日的悲凉结局而宣告彻底破灭;于是,卢梭不能不发出如此慨叹:“人是生而自由的,但却无往不在枷锁之中。自以为是其他一切的主人的人,反而比其他一切更是奴隶。”由此出发,卢梭引出了“天赋人权”和“社会契约”的闳论,然而,即使我们不必过于看重罗素那句苛刻的评语:“希特勒是卢梭的一个结果”(见其《西方哲学史》卷三第十九章),至少可以认定,卢梭的社会学说实在既没有解决上述嘉言警句所提出的哲学问题,也未能为处于如此生存困境中的人类指出真正管用的实践方略;实际上,这种对自己之所谈从根本上毫无所知的社会盲目状况可以囊括此前的所有思想家,无论是康德的“实践理性”、黑格尔的“法哲学”、孔德的“实证社会学”、抑或是马克思的“历史唯物主义”概莫能外,即便是当今的专业社会学者,如果他着实想要究诘社会的本原,仍然不免立刻生出这样的疑问:“社会怎么可能呢?”(格奥尔格·齐美尔语)——换一个问法:一个个活生生的万物之灵,何以竟会在不知不觉之间就将自身完全置于无影无形的社会刀俎之下呢?】
第一百二十四章 “存境”或“属境”
很明显,上述问题的根源性解答不可能蕴含于人的后向衍存机制之中,而是必定潜藏在人之所以成为人,甚至生物之所以成为生物的自然物演机制之中。这就好比你要弄清分子化合的道理,你总不能沉溺于分子自身或分子后衍的物质形态里面,而是必须着力研究分子的前向物态譬如原子的构成原理,才是唯一可行的出路。
换言之,以生物为其基本构成要素的社会实体,必是一种对生物存在予以代偿的上位递演产物。只要我们首先澄清了生命物质的存在性质,社会之本质自会水落石出。【而要澄清生命物质的存在性质,你又必须首先探询整个存在的衍存原理,因此,读者万不可越过卷一,急切地直登本卷所开启的社会殿堂,须知任何学问均有一个明示的或默认的哲学理念在先,一切学术成败及其思想价值其实正取决于这个哲学理念的定位与标高——此所以可将卷一视为全书的“总论”,而将卷二有关精神存在的讨论和卷三有关社会存在的讨论统统视为卷一意旨的展开。】
反过来看,只有通过对任一物相(处于特定衍存位相上的物)之代偿层次予以回溯性透视,你才能明鉴该下位物类的存在状态或存在质态。也就是说,代偿层次所表达的正是被代偿层次的存在性的全面焕发。【具体到社会存在上来,即是说,社会现象正是包括人类在内的一切生物的自然衍存质态本身,亦即社会性正是生物性的组成部分,就像分子存态的达成正是基于原子本身的固有物性或固有属性一样。而且,只有通过社会这面透镜,你才能更清晰地窥见生物性以及人性的全貌,一如通过研究分子化合关系,你才能更深刻地获悉有关原子的物理性质一样。】
说到底,所谓物演层位的代偿跃迁及其逐级派生的上位层次,其实就是任一实体存在因其存在本身所引发的,且因其存在效价之衰变所不得不直面的日益麻烦的出世自况或出世境况,简称“存境”。换言之,任何一种存在实体,对于它的后衍性存在者来说都只是一个隔膜的存在物,而对于它的前位性存在者来说却像是一个纯属自身作为(即“自为”)的主观氛围或自身活动的时空环境,是谓“存境”。【譬如,原子处于分子“存境”中、人处于社会“存境”中皆然——即在分子“看”来,原子实实在在是一种存在物,可在原子“看”来,分子只不过是它表现自身固有属性的自建舞台和运动场所而已——人类就是抱着这样一种褊狭的眼光看待自己的社会存在的。】
可见,存境就是存在物本身,或者说就是新一层存在实体代偿性衍生和结构化凝聚的温床。它之呈现为以“境”代“物”的前瞻性样态,一方面是出于由存在性所导演的万物一系的自然规定,另一方面是由于代偿衍存的进程总得借助于各层存在变体的自发属性方能实现。因此,所谓“存境”其实就是任一物相之自身属性的前瞻性集合与盲存式编织,亦即是任一物类之自身属性的外延性表达与元在式兑现,故亦可称作“属境”。【注意:“存境”或“属境”与环境是全然不同的概念,前者是指由本物自有属性所开创的主观派生境遇(如人类面临的“社会存在”),后者是指由他物原有属性所形成的客观派生境遇(如人类面临的“自然存在”)。(我在后面的文字中有时也将“物体”称作“主体”,同样是基于它们都有自为属性这一事实,其实任何属性都是出于自为的需要,或者说都是出于以自为方式进行自然代偿的规定,故任何作为属性载体的存在物都是潜在的(或不自觉的)主体,更详细的义理请参阅卷二第八十七章。)】
于是,可以这样说:所谓“属境”或“存境”,系指一切集自为主观性和盲存客观性于一体的前位主体之“(自为性)属性境况”(指“自性状态”或“属性实现”)及其由此开创的“(自在性)存在境界”(指“衍存层次”或“结构实现”)。也就是说,任何既成的自然实体或自然结构,原本一概需要经历一个既是主观的又是客观的演化形成过程,即它必须通过前位物相的主观性——或曰“物性”亦即“物之属性”,来达成后续存在的客观性——或曰“物态”亦即“物之结构”。进一步讲,任何主观性(即“自为性”、“主动性”或“机能”、“属性”)其实都不过是自然客观性的阶段性代偿形态及其阶段性现象形态,而任何客观性(即“自在性”、“盲存性”或“实体”、“结构”)都必须借助各级存在物的主观属性或自身物性来实现。因此,即使存在着某种自在性趋于递减而自为性代偿递增的主观化倾向或主观能动性的扩张动势,这个动势本身也仍然是一个自然的、自在的、或曰“本质上属于盲存的”进程,亦即恰恰是一个依据自在物的自为意志为转移或自为物的自在本性为指归的客观进程。一切生物乃至人类的社会存在就是这一自然机制的继续贯彻。【我在卷二中对精神现象的论述即可视为对上述“物性”之一种——指“物的感应属性”——的具体剖析。或者可以这样看待:在本书第二卷中,我曾以感应属性为范例阐释了自然属性代偿序列的主观内涵态;而在此第三卷中,我将以社会实存为范例来阐释自然结构代偿序列的客观外延态(请参阅卷一第二十章的文字和图示)。在此处之表述中,“主观”与“客观”二词尽可任意置换,其语义仍将自洽,道理如上。】
由此不难看出,社会存在的根据一定潜藏在它的前体物相——即生物存在——的物性(或属性)之中,因为,所谓“社会”无非是对生物(包括人类)自身之“存境”或“属境”的笼统表述。
而且,在生物乃至人类的“存境”之中,一定有一个可从其前人类以至前生物之物相——亦即前体物演之层层存境——中继承而来的代偿素质或代偿惯力可循或可查。
第一百二十五章 社会形态
对于“社会”这个概念,如果剥去它的“质料”内涵,则它无非是指某一物类或物相的“堆”或“群”。
如卷一所述,物的“质料”差异——亦即一般认为是造成“物类”差异或“物相”区分的内在质地——其实仅仅是物的存在性差异的表观形态,或者说,是同一本原物质在其存在度递减的趋势下达成继续衍存的代偿方式。既然如此,含有任一物演“质料”的衍存“形式”自然同时就是该物之所以能够存在的本质状态,是谓“质态”。
也就是说,存在的“形式”或“形态”与存在的“内质”一样,完全是同一自然存在本原或同一自然存在质素的变态演化产物。
我们假设,宇宙爆发前的“奇点”存在——即物的可感属性尚未发生以前的那种不可言传的存在——是自然界几近无所分化的原始混沌态。无分化则无个别,无个别则无形式,此“刻”(其实连“刻”也谈不上,因为“时间”亦未发生)的“在”囫囵而一“体”(其实连“体”也谈不上,因为“空间”亦未发生),故,“世间”(此词已含有“时空”意味,虽不妥,故妄借用之)实在连一个最简单的“堆”也无以为聚。
我们再假设,宇宙爆发后的“多态”存在——即物的可感属性相继发生从而形成令感应者可以有所感应或有所依存的那种存在——是自然界趋于分化加速的代偿衍存态。分化了,则“一”成为“多”,“囫囵体”成为“残缺体”,于是,“多”则成“堆”,“残”则结“群”,由以兴起了这样一系列“群化结构单元”或“群化结构形态”:残化了的“基本粒子堆”谓之“原子”;残化了的“原子堆”谓之“分子”;残化了的“分子堆”进而结成“生物大分子”乃至“原始单细胞”;残化了的“细胞群”再结合成“多细胞生物”乃至“后生动物”;残化了的“动物”聚集成为“社会”乃至“国家”实体;最后,残化了的“国家”势必消亡于结构致密的“统一社会”;如此等等。(参阅卷一第十七章和第二十章)
显而易见,这是一个演运有序的自然进化流程,或曰“残弱化衍存流程”。沿着这个流程探查,你会发现各“堆”或各“群”的存在度亦即稳定度愈来愈低下,各“堆内”或“群内”组分的残化度亦即依赖度愈来愈升高。而且,每一个上位结构或上位存在形式都是建立在对下位结构或下位存在形式的收揽、蓄纳以及再结构的基础上,亦即使之实现为对结构本身再加以结构化的自然代偿跃迁序列。
结果,结构化的过程势必呈现为“结构度”日趋增高的过程,具体到社会构成或社会形态上,即呈现为“社会度”日趋增高的过程。为了便于理解后文,我们照例可以把这个过程表达在读者业已十分熟悉的如下坐标图示之中(亦可称其为“社会坐标”或“人格坐标”):(参阅卷一第三十四章和卷二第七十章)
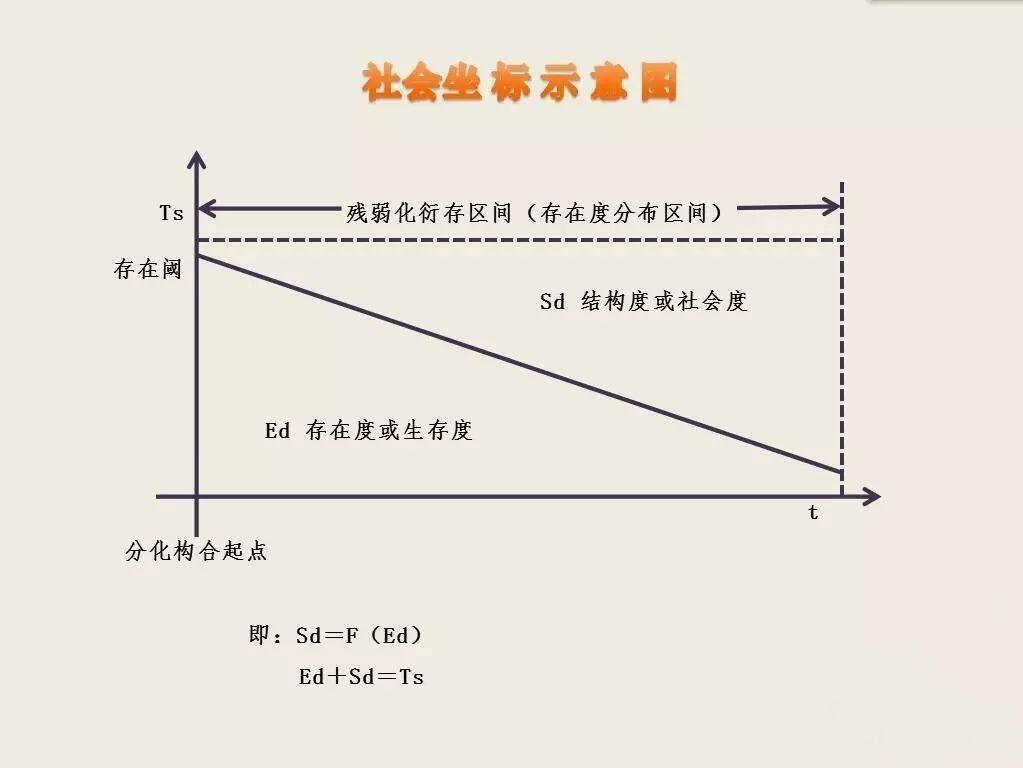
这里提示,所谓“社会”,无非是自然分化构合的晚近存在质态,或者说,是自然结构化进程发展到生物体外存境阶段或生物体外结构化阶段的别称而已。
第一百二十六章 社会本源
于是,正“社会”之本,就必须从清“生命”之源入手——即必须从探讨生命存在究竟是怎样一种物相(或处于怎样一种存在位相)入手。
依据递弱代偿衍存之法则,生命物质不外乎是业已处在自然分化中途——亦即是业已处在自然残化中途或自然弱化中途——的分子物质进一步分化构合或曰演运编码的产物。分子是原子的结构化代偿存态,生物大分子和原始单细胞生物是分子的结构化代偿存态,而多细胞生物又是单细胞的结构化代偿存态,如果不去考究修辞学上的表浅异义的话,也可以说,分子就是原子的“社会化”代偿形态,原始亚细胞及单细胞生物则是分子的“上层社会建构”,尔后的多细胞生物体尽可以被看作是生活单细胞的“社会组织”。总而言之,自然存在之所以需要这种结构整合形式的层层代偿,乃是由于自然分化的过程就是自然物演趋于弱化和趋于残化的同一过程,或者说,宇宙物质之存在度倾向递弱化的过程就是其存在质态趋于分化和趋于残化的同一过程,故此,可以确认,所谓结构化自然进程不外乎是分化物或残化物之间相互依存的基本时空样态。
足见生命存在一开始就是一种(或“一系”)极端残弱化了的存在。换言之,如果不是由于自然残弱化及其相应结构化的演变发展,生物构造原本就没有发生和存在的前提。
尽管如此,生命物质的进化序列照例是一个从圆满到残缺、从强存到弱在的相对嬗变过程。因为生物大分子的有机构合是对分子残弱化的无效代偿,亦即原始生物的临场无非是下一轮残弱化流程得以启动的契机。
而对更趋残弱化的生物存在所能给予的下一轮层次性自然实体代偿就是“社会存在”。
这就表明,社会结构的形成基础同样源自某种类似于实体物态残缺补缀的简单嵌合机制,也就是说,社会的结构化过程一定发轫于生物体质的残化依存机制之中,犹如分子的结构化过程一定发轫于原子形质的残化依存机制一样。(参阅卷一第四十三章至第四十七章)而且,依据自然物演必然倾向于日益残弱化的规律,我们可以预设,生物的体质存在亦必呈现日趋残弱化的倾向,直至自然分化进程发展到实体残化无以为继的地步而不止,由此导致从体质刚性存态到智质可塑存态的精神化代偿,亦由此导致社会演运从亚结构态向低结构态乃至高结构态的自然进化。
实际上,正是这种逐层跃迁的结构组合状态造成了宇宙物类从微观到宏观的级别分布,也正是这种由简到繁的结构化代偿进程造成了人类对至为复杂的社会变构体缺乏统一性的认同。也许,乃至“生物-社会”发展到“人类-社会”阶段之际,由于人类的智质虚存业已导致社会的结构化动因和结构化组态均告虚演化,结果竟使身陷其中的天之骄子无论如何也无法将自身的社会存境与前社会的物质构造以及前人类的社会构造视同一脉。看来,社会认识的断裂带大抵发生在智质虚存与体质实存的代偿过渡之间,俨如自然认识的断裂带恰好发生在精神虚存与物质实存的代偿过渡之间一样。此乃后话,姑且不提,眼下读者只需记住,任何事情发展壮大到足以显形之前,一般都有一个处于潜隐状态的增长过程,犹如生命产生以先必有一个看不见的分子进化过程一样。无视这个进程,生命就属于神明所有,同样,对于社会来说,找不到这个进程,社会学就属于蒙昧所有。
第一百二十七章 社会萌芽
生命的高层位性残弱质态,使其存在本身成为问题。因此,它刚一诞生,死亡的结局就接踵而至。无论如何,它只能以短暂的生存来解决问题,或者说,使生存的问题不成其为问题,然则它必须借助于某种类似接力传递那样的方式,使得短暂也能够永恒。这就是生物遗传增殖机能的初始意义。
显然,遗传和增殖是生物对其残弱本性的一种代偿,它使得生命的残弱不至于从根本上取消了生命的存在,由以达成自然存在流程的接续。
鉴于自身与生俱来的柔弱性质,它的增殖能力(或曰“遗传属性”)必须相应补偿到这样一个保持存续的“阈值”上(或曰“代偿到这样一个存在阈的基准线上”):其增殖效能(表现为繁殖数量)一定得大于或等于自身弱质变数与环境压力变数之和,即它的自我复制机能必须为维持其相对稳定的存在制备出一个基本群体存量——这就是“社会”得以降临于世的起点。
很明显,这是一个有赖于摄取身外异己物质以求复制自身的特殊耗能过程,尽管被我们人类美其名曰“新陈代谢”,却无疑让生物一开始就走上了一条“物欲熏心”的求生之途。【由此播下了后来分化为晚级人类社会系统中“经济子系统”的种子。】
很明显,这也是一个有赖于对诸多身外异己物质细加甄别的识辩选择过程,尽管此刻的物种尚没有感官的分化和智能的发育,却无疑让生物一开始就走上了一条“追逐真理”的认知之途。【由此播下了后来分化为晚级人类社会系统中“文化子系统”的种子。】
很明显,这还是一个有赖于在同类或同胞之间顺序依存的初级体外组织过程,尽管此刻的社群秩序几乎单纯地呈现为性繁殖的阶层状态,却无疑让生物一开始就走上了一条“阶级统治”的宗法之途。【由此播下了后来分化为晚级人类社会系统中“政治子系统”的种子。】
诚然,乍一看来,初诞的生命简直无异于一族扩大了的分子(RNA以及DNA大分子),或者是一堆像沙砾一样面目混沌的原核细胞(尚未分化出细胞核和细胞器的原生质团构体),然而,由它们所开创的这个“群量存在”或“自然群体”却实在是不容轻觑的“社会之胚”。
而表现为性增殖的遗传代偿属性,就此成为生命存在和社会存在的第一拓荒者。【20世纪初叶,弗洛伊德通过精神分析的临床方法发现,无论人类的社会精神现象何其夺目,决定着人的智性行为的基本原因却是最为人类不堪启齿的“性”的潜流,或者还有一点儿对“伟大”的趋求。弗氏的学说很有些幽默,他实际上从一个侧面指明了繁华人性的归宿,使人类回落到原始生物唯求生存的基点上,这个生存的基点恰恰对生命提出了两项要求,即借助“遗传”以对抗残弱——“性”的渴望(“本我”之要素);和借助“变异”以超越残弱——“伟大”的渴望(“超我”之体现)。而这一切均导源于被他称为libido的神秘的“原欲”——其实就是驱策着整个宇宙进程的“存在性”而已。】
第一百二十八章 蓝藻的故事
在此,我们不妨顺便给“代偿的双重效价”(参阅卷一第十八章、第十九章和第三十三章)做一番直观的实证。
为了审慎起见,有必要追溯到生命发生的某一原始阶段,譬如说,从单细胞生物初始发生的起点着眼,因为只有在这个阶段,生物的增殖行为才表现得比较单纯。在这里,既没有两性生殖及其基因重组对繁殖后果产生的“偏差”,也没有来自其他物种的共生相济或异养相食的“干扰”,此时的单细胞生物作为孤独的生命始祖,直接面对着自然界原始条件的生存检验,其情形就像在一座偌大的天然实验室中进行增殖效应观察,整个实验设计及其实验过程仿佛严格依循排除无关因素的单项分析规则那样予以展开。
【单细胞生物以出芽或分裂的方式进行繁殖,它能够在很短的时间内一分为二,按照几何递增方式极快地扩张自身的存在——毫无疑问,这使濒临于自然失存边缘的弱态生物获得了有效的延续,亦即“有效的代偿”。从表面上看,这种追加速度足以补偿初衍生物的弱质而有余,以至于像蓝藻之类最早具有荧光作用的厌氧型单细胞生物,后来遍布于原始海洋之中,居然将地球大气中通过水的光解作用所可能获得的不足0.1%的氧含量提升到1%以上,为大气从还原型向氧化型的过渡以及臭氧层的形成做出了巨大贡献。
那么,依靠单纯数量上的增加是不是就可以改变或消除生命的残弱本性呢?让我们仍以蓝藻细胞为观察对象,来分析它凭借自身的量化优势所可能产生的种种结果。
首先,数量的增减并不能改变蓝藻细胞的内在结构和生物性能,也就是说,生命的弱点随着数量的上升只能相应的膨胀,即使它秉性中的优点也增加了,二者的比例却不会发生丝毫的变易。假如它的这种努力不是徒劳的,而竟然使它原有的性状发生了任何变化,那么,并不是蓝藻这种生物的弱点被克服了,而是蓝藻本身被消灭了,因为被赋予新性状的细胞必定已成为一种新的生命。迄今地球上仍然存在着远较古生代以前少得可怜的蓝藻,它们作为一种化石生物与其古老的祖宗别无二致。往最好的方面说,它们在通过数量的增加所扩展的生存平面上,只不过同时增加了自然界无情施予的更大压迫罢了,其效果比起后来的人类夜行怕鬼就多找几个同伴壮壮胆子都不如。
其次,同类的增加必然加剧达尔文所说的那种给生物造成最大威胁的“种内竞争”。我们假设太古时代的自然界提供给蓝藻细胞的生活物质有一个既定的数量,在它们尚未鼓足自己的繁殖能力以发挥其集团优势以前,它们的物质生活是丰裕富足的,它们的精神生活也可以使每一位公民都表现出温良恭让的美德来,但前辈的消耗和万代子孙的兴旺终于不免使原始海洋显得相对贫乏起来。不用我们多加描绘,此后的蓝藻伙伴们将会怎样的反目成仇和尔虞我诈是可想而知的。于是,这类生命原有的潜在缺点非但没有被纠正,反而还要再加上一些霍布斯称为禽兽和人类才有的史前罪恶,以及由于诸如此类的罪恶所加于蓝藻孱弱一面的新的打击。
尤为可悲的是,蓝藻细胞焕发出来的那种“改造自然”的伟力,实际上只是它们厌氧代谢形式的无可奈何的副产物,不管它对后世的生物建立了怎样卓著的功勋,对于蓝藻细胞说来,它们污染了自己的呼吸环境。氧化型大气层的出现毁坏和抑制了厌氧生物的机体和前程,使它们从此只好寄身于远比“暗无天日”更为窘迫的无氧角落中苟存。
此外,增殖所致的群量扩大还使生物细胞内基因突变的可能性上升,也就是说使蓝藻变为不是蓝藻的机会增大。根据朱克斯(Jukes)和金(King)的研究计算,给氨基酸编码的密码子的置换速率为(3~50)×10^-10置换/密码子/年,亦即每个由核苷酸碱基组成的遗传基因每年发生突变的概率为(3~50)×10^-10。
假定在几乎覆盖了整个地球的原始海洋中,蓝藻有效增殖的活体量使其密码子总数维持在(3~50)×10^10以上(显然达到这个数量级是不难做到的),则每年至少都会有一个基因编码发生突变。蓝藻裂殖的群量愈大,突变发生的次数相应也就愈多,这些突变积累到一定程度,就有可能造成新的物种。卡瓦利-史密斯(Cavalier-Smith)提出,原核细胞的吞噬和胞饮作用在真核细胞的进化中是关键环节,认为所有真核细胞的祖先可能是一种能够进行光合作用的单细胞蓝藻,这种蓝藻丢失了细胞壁,它的质膜就可以施行吞噬和胞饮机能。而真核细胞是后来所有动植物的始祖细胞和组成细胞。在生物发展史上,变异和进化的后果常常是创造出变异者自身的有形生物天敌或无形环境天敌。因此,谁也不敢担保这些突变就一定不会产生出恰恰要以蓝藻为食的恶物来,如果生物界的运作竟是如此之乖戾,那么只有上苍才知道我们的蓝藻细胞对于这场适得其反的奋斗牺牲何其寒心。这个故事曾经真实地发生在距今大约十亿年左右的晚元古代地质时期:“最早的真核生物毫无疑问是单细胞的浮游生物种类。其中某些是光合自养生物,其他是异养生物——以原核生物为食物的草食动物。当蓝绿藻被草食动物收割后,它们密集的纤丝状集丛变稀了,这就为其他物种提供了繁殖的(水域)空间。”(引自《动物学大全》,[美]老克利夫兰·P·希克曼等著,林秀英等译。)】
这个以亿万年为计时单位的自然操作实验至此可以给出如下结论:遗传属性是生命物质得以存续的基本代偿方式,就其维系着存在之脉而言,不能说代偿是不具有功效的。然而,正是遗传增殖本身导致被遗传者的存在态势趋于没落。实际上,“代偿的无效性”(当然不限于遗传代偿)远比以上的叙述更为严重,因为如果站在生物史的晚近一端回顾,你会发现,以蓝绿藻为代表的原核单细胞生物是唯一稳定地独霸地球达15亿年至20亿年以上的物种,此后的生物虽然越来越呈现出张牙舞爪的架势,却实在是外强中干,其“生存效价”或“生存度”(与“存在效价”或“存在度”同义)从此江河日下,终至于衰落到不可收拾的地步。
第一百二十九章 社会聚合样态
生物原始发生及其社会代偿的过程宛若宇宙演运过程的变态重演——当然更是宇宙演运过程的直接继续。
先看宇宙演历:从物理存在(自亚原子粒子到原子质态),弱演至化学存在(自无机化合物到有机大分子质态),再演至生物存在(自生物大分子到人类质态),其间环环相扣,层层代偿,且表达着一脉相承的衍存动因和衰变动势。【不仅在实体交接形式上是如此,在能量传递形式上亦复如此,譬如,以整个生物界获能基础(即作为生物食物链之第一环)的光合作用为例:光能(物理现象)转化(同时能量有所损失)➡化学能(化学现象)贮存在生物体内(动辄能量继续递失)➡生物能(生物现象)。】
再看原始生物演历:
——最先“活化”的原始生物,是一族由多种有机大分子组成的生物大分子,它们的存态颇像是由基本粒子构合成亚原子核子那一幕的再现。【20世纪70年代,在美国工作的瑞士学者迪纳(Diener)首次发现了第一种类病毒——马铃薯纺锤体结节病原体,此后,更多的类病毒相继被发现。类病毒是纯粹的核酸生物,没有蛋白质外壳,分子量很小,只有1.1~1.3×10^5道尔顿,以共价闭合成环状或线状的单链RNA分子的形式存在,而且,它和病毒一样,一旦脱离宿主细胞,即不再进行代谢活动,它们仿佛非生命物质一样静止地存在着,但它们是“活”的生命,只要侵入宿主细胞就可以借其代谢程序进行活跃的自我复制。这些类病毒的存在方式横跨在生物界与非生物界之间,把分子物质与生命物质的人为分割一笔勾销了。】
——不过,这些依赖于借体复制的大分子生物就像亚原子核子一样尚不是一个自成一系的独立存在者,它们必须通过某种方式制备或联络各种蛋白质、多肽及脂类、糖类等物质,由以形成相对圆满的自为型生存者,即原核单细胞生物。此刻的生命样态简直就是氢原子的改头换面,由它们起始,后来演化出种类繁多的真核细胞,就像由氢原子起始逐步演化出名目各异的后续元素一样。不同点在于,它们业已弱化到必须凭借不停顿复制自身方能存在的地步,由此开辟出名曰“社会代偿”的又一层世态炎凉之天地。【原核细胞的形成是在核酸分子与其他有机原生物质外面包裹了一层磷脂双分子流体镶嵌膜,这种生物膜的特点之一就在于它可以根据离子以及分子结构的差异来识别和交流膜外的物质与信息,原始细胞与人体细胞在质膜上的同构状态已成为人类起源于低等生物的证据之一。从此生命有了自己的“面目”——一个用以“面对”外在对象的特定感应介质。】
——真核细胞的问世,同时就是生物越发不能自稳的新的开端,所以,仅仅经过了数亿年的时间,即距今八亿年的震旦纪前后,细胞集聚现象或细胞集聚生物(如団藻)即开始出现,起初,这种聚散自如的细胞运动令你不能区分它到底是“多细胞的社会组合”还是“多细胞的生物体质”,然而它无疑是单细胞内部分化导致以细胞为存在单元的存在者趋于残弱化,并迫切要求新的代偿格局的明证,俨如元素递衍所造成的残弱化形势迫切要求以分子化合态来实现其代偿一样。【一般认为真核细胞的生存力度较原核细胞为高,其实不然,因为真核细胞正是原核细胞不可遏止地趋向分化递弱的产物,事实上,它的主流很快就消失在多细胞、高分化的后生物种之中,即消失在自身的上位代偿存态之中,并经由此种体质分化,为最原始的无分化社会步入结构化社会奠定了基础。】
此后的生物进化就像分子物质一样鲜明凸出,千姿百态,致令新一层自然代偿序列——即“社会存在”跃然于宏观。
可见,社会滥觞于原始的微观生物之中,一如万物滥觞于原始的微观粒子之中一样。
为了便于阐释,我们把上述以原始单细胞生物为主体——即包括亚细胞生物、原核细胞生物以及真核单细胞生物在内——的无结构或亚结构群化存态称为“初级社会”或“初级隐性社会”。【此刻的社会聚合样态,略如形质基本划一、数量极为庞大,即表达为同质非整合形式的基本粒子群态。再者,同样地,其存在时效亦显得格外之高:从三十五亿年前生命初诞的太古宙地质时期计起——➡至五亿七千万年前多细胞高分化后生动物成为生物界主流的寒武纪显生时代。历时约三十亿年以上。】
相应地,我们把由真核细胞进一步分化衍运而成的前智人多细胞动物为主体——即由体内多细胞分化构造而致其体外生存性状趋于残化的所有动物,包括旧石器阶段以前的类人猿和直立人在内——的低度结构化群体存态称为“中级社会”或“中级潜在社会”。【此刻的社会聚合样态,略如形质业已分化、内组单元稀疏,即呈现为异质整合形式的原子内构状态。然其存在时效已呈递减之势:从寒武纪地质时期计起——➡至数十万年前的新生代第四纪晚近时代。历时约五亿年以上。】
最后,我们把以智人为主体——即在多细胞动物继续弱化演进,以至于不得不借助于智质分化代偿来接续体质分化代偿的晚近生存形式——的高度结构化群体存态称为“晚级社会”或“晚级显性社会”。【此刻的社会聚合样态,略如形质急剧残化、内组单元繁杂,即显现为构型特别致密的分子叠构状态。其存在时效更是一衰三竭:从数十万或数万年前计起——➡至今——➡乃至不远的未来。预计历时大约不超过几百万年甚或几十万年。】
【有必要予以声明:上述有关“变态重演”的种种类比,只是为了让读者能够形象地理解生物衍运及其社会存在的“自然代偿跃迁进程”,此外别无意义。不要忘记,简单的类比常常是无解或误解的表征,孔德的社会学(sociology)研究就曾比照生物学家毕夏(Bichat)于18世纪末对人体组织的粗浅描绘而发,结果他贸然提出社会是高于人体的另一级有机体之说,却终究未能给出社会何以会存在的基础论证。】
第一百二十九章 社会聚合样态
如果说社会存在层次的代偿性发生是由于生物存在层次的递弱化态势使然,那么,相对于更趋弱化的高等生物而言,由于原始低等生物的存在度或生存度偏高,故其“社会层面”不免显得分外菲薄。
再者,如果说自然结构层次的代偿性致密是由于自然底物层次的递残化态势使然,那么,依据“弱化➡分化➡残化”或“弱化=分化=残化”的宇宙律令,由于原始低等生物的分化度或残化度偏低,故其“社会结构”不免显得分外荒疏。
总之,初级社会的失构无形必定与初级生物的对应素质有关。
问题在于,我们首先得能证明原始生物的相对高生存度。
问题还在于,我们同时得能够证明原始生物的相对低残化度。
【最早把“残化”基态与“社会构成”联系起来加以考量的当数斯宾塞,他没有用“残化”一词,而是用“异质”之说作为社会结构化的基础,他不无见地地指出,人类的社会发展是一个从无凝聚力的同质性态转化为异质整合形态的动进过程。然而,“异质”与“残化”在概念上有很大的不同,因为“异质”仅仅表示异质者之间有所差异,却不能表达出异质者自身残缺不全故无可独立或自立的意蕴;而且,异质化的过程也实在不能只从人类算起,须知人类的异质状态不过是前人类的一切存在者的异质化进程的结果罢了;更重要的是,在斯宾塞的异质概念中,丝毫看不出异质化进程与存在态势的内在关系,即看不出异质存在者处于亟待寻求某种代偿的危在位相上,从而令社会发展成为多余的举措和非必要的累赘。
换言之,所谓“异质”应该是“弱质”的同义词。即存在度的弱化动势一定是自然物演的本质,而相应的分化或残化动势纯属宇宙递弱衍存进程的现象形态。或者,如果把分化和残化一并归在异质化的词项之下,则异质化与弱质化之间无非是互为表里的自然质态而已。
不过,这样讲仍有问题,因为任何直观上的同质状态照例是自然弱化和分化进程的产物,而且可能是某种阶段性残化的极致。譬如,同类碳原子之间无疑可被视为一种同质的状态,然而它们作为化学元素的残化程度却是无以复加的了,因此,一旦它们自相联络,反而会建立起最为致密的钻石结晶体或布基球结构体。也就是说,所谓“异质”与“同质”的区别到底还是一种浅层表象上的辩证陈述,它并不能真正深刻地反映出自然残弱动势的核心规定和总体质态。
虽然如此,我们不妨借机给结构演化运动划出一个局限的区域:假设在其左端是集聚成员的相对圆满态,如惰性氖原子之间的互斥型非化合存态或球体的集合,此乃极度分散的无构态基础;假设在其右端是集聚成员的相对残缺态,如纯粹四价碳元素的钻石结晶体或方砖的砌合,此乃极度密切的构态基础;这两个极端之间的过渡区段即为一般意义上的异质整合态。从左到右,其结构度呈现为由极小值至极大值的分布趋势。即是说,结构度与构合成员的总体残缺度成正比,与构合成员的总体圆满度成反比。据此可以这样表述社会存在的基础和社会演进的形势:个体残化度偏低的物种,其社会构态倾向左移;个体残化度偏高的物种,其社会构态倾向右移;反过来讲也一样,即社会构态左倾的物种,其总体自然生存度偏高;社会构态右倾的物种,其总体自然生存度偏低;而且,倘若社会构态由左向右发生位移,提示生物种系演化亦即“生物进化”本质上存在着生物个体生存性状趋于残化和生物总体生存力度趋于弱化的倾向。
当然,我这样讲,乃是为了给结构关系以一个最简明的抽象,任何自然结构的实际情形都要比上述图解复杂得多,但从这种抽象演绎中可以看出,一切聚合体的结构疏密状态均与其构合组分的性状分化程度有关;再者,如果把这个自发的连贯过程人为地裁减出某一片断(或孤立地聚焦于某一层级),则会发生由于视野限制所导致的如下变形:结构化运动的同质整合效应似乎可以在两个极端上表达,而结构化运动的异质整合效应只能在程度不等的中间残化区段上表达。这进一步表明,处于左右两个端点上的同质聚合物态均有可能是不同层级的异质分化效应之极致,亦即同质聚合形态一般恰恰是前期残化进程的严峻后果。
鉴于既往的社会理论常常局限在某个极其狭窄的片断区域内讨论问题,领会此处之所谈对于理解后文将是有益的。】
第一百三十一章 原始高生存度
单细胞生物的原始高生存度仅仅相对于其他后衍物种而言才是有效的。因为,从非生命物质的“存在”到生命物质的“生存”,这一概念内涵的转化所能引出的唯一区别,就在于由“存在效价”到“生存效价”之间的“度”的跌落。【以及,由此引发的代偿效价的相应上扬,或代偿招数的花样翻新。通常人们只被这代偿的花样所迷惑,殊不知一切代偿既是存在度下倾的函项,又是存在度下倾的载体。(参阅第三十四章和第四十章)】
即是说,生存度是存在度的继续下滑,所谓“高生存度”不过是重新界定一个下滑的起点而已。
【以这个“起点”作为着眼点,则原始单细胞生物不同凡响的生存力度,早已成为大、中学生自然教程里的基本常识了:
——三十多亿年前太古时代的地球,是一个既没有氧气也没有遮挡太阳紫外光的臭氧层,更没有一星半点绿色的生机为原始生存者提供庇护的地地道道的地狱,除了赤地千里的荒漠和漫无涯际的死海而外,就只剩下岩浆横流的煎熬、冰封雪覆的冷酷和飞沙走石的暴虐了。为这个星球造化着生存条件的那些原核单细胞生物,当时只能潜隐于海平面十米以下的高压暗区生活,以免遭到宇宙辐射、强紫外光或其他自然险象的斫杀,它们像沙砾一样“同质化”或“缺乏个性分化”地存在着,岂不是恰恰证明了它们格外强韧的生存力度。
——考古生物学证明,自大量物种暴发性显生的寒武纪时代以降,不知有多少高度发展了的生物种群已遭灭绝。据辛普森(Simpson)估计,曾在地球上发生过的物种数量约有五千万种到四十亿种,而格兰特(Grant)则估计有十六亿到一百六十亿种,现存的物种数目,一般估计为一百五十万种到四百万种之间。赵寿元先生在普通生物学教科书中据此做过如下计算:“倘若我们假定曾经出现过的物种数目是二十亿种,现有物种的数目是二百万种,那就是说,原有物种中99.9%都已灭绝了,保留到今天的只不过1%(不足)。”而且,从整体上看,愈晚近的生物门类,趋于灭绝的速率愈高。这里显然发生了一个人们长期视而不见的问题,即自然选择进程究竟是在选拔具有适应性的强存者还是在滤留具有弱质性的适应者?(回顾卷一第二十二章)
——以下,我将继续援引普通生物学教科书中关于微生物一章的论述,因为凡能进入教科书中的内容通常已是争议不多的学科定论。周德庆先生在该章节中对于微生物五大特征的扼要概括完全适用于“初级社会”中原始单细胞成员的生存情状,因此,恕我直接引用他的部分原文并同时表示我的敬谢之意:
1.体积小,面积大
任何物体,若把它分割得愈细,则其单位体积所占有的表面积值就愈大,如果以人体的“面积/体积”值为一,则大肠杆菌就达三十万左右。这样一个小体积、大面积系统必然特别有利于与外界进行物质和能量交换。这就是微生物区别于一切其他生物的最本质的属性,也是引起以下四个其他共性的原因。
2.吸收多,转化强
据报道,一个积极活动着的大肠杆菌细胞,每小时可消耗其自重两千倍的乳糖。吸收多的结果,就为物质转化快、菌体合成多提供了可靠的物质基础。
3.生长旺,繁殖快
微生物有着极高的繁殖速度。如果以二等分裂方式繁殖的细菌为例,它们每分裂一次,快的只要二十分钟,因此每小时就可分裂三次。这样,只要处于合适的条件下,它们在短时间内就会得到大量繁殖。有人曾经作过计算,一个大肠杆菌重约2×10-12克,如果每半小时分裂一次而且全都存活,那么71小时后大肠杆菌的总重量就会等于地球的重量。幸好,自然界不可能提供这样的生存条件。
4.适应广,易变异
由于微生物具有个体小、繁殖快、数量多和接触外界环境的直接性等原因,使其发生变异、淘汰或适应的频率特别高。因此,它们在抗热、抗寒、抗干旱、抗酸碱、抗缺氧、抗辐射和抗毒物等一系列抵抗恶劣环境的能力方面,都登上了生物界的“冠军”宝座。
5.分布广,种类多
微生物在自然界的分布真可谓无微不至、无孔不入、无远弗届了。人迹所到之处肯定会有大量的微生物,人迹无法到达之处也会有大量的微生物生存着。在地球上除了活火山区以外,从生物圈、土壤圈、水圈直到大气圈和岩石圈,到处都有微生物家族的踪迹。例如,在89℃~90℃的温泉中,在含盐量高达23%~25%的“死海”里,在难以测出水分的撒哈拉沙漠中,在酸度极高的矿水中,在两千米深的地层下……到处都可以找到一定类型的微生物。在微生物中可找到比高等动、植物的代谢特征更为丰富的独特代谢类型,例如细菌光合作用,化能合成作用,生物固氮作用,厌气性生物氧化,烃代谢,合成多种次生代谢产物,能分解复杂化合物(纤维素、木质素、角蛋白、塑料等)和极毒物质(酚、氰、甲醛、多氯联苯等),各种抗逆性,以及奇特的“生命的第三形态”(甲烷菌)、“第四形态”(病毒)和“第五形态”(类病毒)等。
至此,关于原始单细胞生物的高生存度问题姑告证明完毕。尽管这种证明方式着实缺乏哲学韵味,然而,对于讨论直观的社会基础或生物属境而言,这却无疑是最简捷有效的方法之一。】
第一百三十二章 原始低残化度
单细胞生物的高生存度与其低残化度(即低分化度)原属同一回事。
【从生物发生史上看,分化程度最低的物种无疑是蓝绿藻之类的原核单细胞生物。所谓“原核细胞”,是指在细胞形态上尚未发生细胞核及细胞器等结构分化的原始细胞,胞内浑然一体,各类活性物质以“原生质”的泛化方式进行增殖和代谢活动。这类生命颇似庄子在其《内篇·应帝王》一节中所说的中央之帝“混沌”,虽无五官七窍,却是生物史上最坚强耐久的活物,后世那些“凿开了混沌”的真核细胞——所谓“真核细胞”,是指胞内遗传物质聚为核体,且于胞浆即“原生质”中分化出与代谢和繁衍有关的一系列专能细胞器——以及由真核细胞“复凿”而成的亿万种多细胞、高分化生物,虽俱分器之官能,却失混沌之厚重,从此来去匆匆,“悠忽”而逝,由以应验了“日凿一窍,七日而亡”的道家寓言。
原核细胞的体积只有1~10微米,大致相当于真核细胞平均体积(10~100)微米的十分之一。它们没有复杂的细胞核和细胞器体系,乃是为了用最简单的生存方式及最轻便的体质负荷以策应原始地球上最苛酷的生存条件;它们没有雌雄异化的性系统,无须配子结合及有丝分裂的麻烦程序而以直接出芽和裂殖的简约方式实现复制,尽管这简直无异于让自己及其后代赤身裸体、一无披挂地踏上了最凶险的战场;它们采取低效的无氧代谢;自主运动功能几近付诸阙如;甚至它们体内决定着遗传再生的DNA亦不能与执行编码过程必需的蛋白质直接结合,从而有可能因为遗传信息传递障碍或失准而造成某些子嗣的灭顶之灾……所有这些“缺陷”——其实正是相对“圆满”或“低残化度”的表征——既是它们暂且得以保持“高生存度”的前提,也是它们终于不得保持“低残化度”的原因。
真核单细胞虽较原核单细胞生物的生存力度为弱——其证据之一是,它们的主流大约只经历了十亿年左右的时间就将自身消融于多细胞的新生物种之中——然而,如果向后比较的话,它们仍然属于特别稳定的原始生命。须知它们毕竟是一切多细胞动植物的原发始祖和组成单位,试想一下,倘若真核细胞比它们的“上层建筑”(即多细胞有机体)更形虚弱,有机体如何成立?(类推下去,倘若分子的存在度不及生物、原子的存在度不及分子、基本粒子的存在度又不及原子,如此以至无穷,那么,整个物质世界又如何成立?)】
事实上,真核细胞的胞内形态分化正是随后发生的胞外结构分化的基础,即正是细胞内部结构的分化导致单细胞生存度的倾跌,从而促使多胞体式的细胞聚合和聚后再分化的代偿成为必须,且进而导致机体分化即个体残化,由以造成体外依存性整合——即社会结构化代偿的相应发生和发展。尽管如此,较之多细胞有机体,真核单细胞生物仍不失为亚结构初级社会的坚定属员,因为它毕竟还可以依靠自身的先天圆满性而相对自足地生存,也就是说,它的圆融自满存态尚令体外社会的结构发育成为多余,或者说成为无本之木。
从单纯生物学的角度看,眼下的细胞分化以及后来的机体分化自有其更繁复和更切近的“多因素”在发挥作用,然而,这繁复而切近的“因果序列”所表达的正是那简一而深远的“存在性”之规定。实际上,这个看似荒诞的“凿窍”过程早在宇宙勃发之初就已开始,从基本粒子➡亚原子核子➡原子➡分子➡单细胞➡多细胞机体➡乃至社会结构,无不如此,只不过“凿窍的进程”越来越加快,“凿窍的工程”越来越庞杂罢了。很明显,生物的“凿窍”过程无非就是前生物之“分化构合”过程的自然延续,也就是宇宙物演的实体单元从微观到宏观进行结构化建设的自然步骤。【因此,当我不得不沿着生物进化史的演动轨迹展开论述时,请读者务必注意不要被生物学的符号表象所迷惑;而在我,亦应尽量避免或减少使用生物学(或其他科学学科)的专业术语,尽管这样一来,无论是哲学家抑或科学家反而可能都会感到有些别扭,也只好在所不顾了。】
简而言之,任一衍存者的分化程度与其存在效价呈反比。
于是,还是还原为这样一条相关律:低残化度正是高生存度的自然质态,亦即高生存度正是低残化度的同一质素。【至此,关于原始单细胞生物的低残化度问题亦告证明完毕。实际上,这类证明早在卷一中就已完成,这里只不过是将它处理成生物阶段的直观表象或社会层级的具体序列而已。】
